3.1 主要门类演化脉络
3.1 主要门类演化脉络
本节摘要:门类的演化脉络并非"先来后到"的排队史,而是一张由发育限制、基因调控逻辑与胚层拓扑共同织出的因果之网。本节沿三条主干推进:基干门类把守动物性的底线(发育原语),原口动物内部爆发发育程序的语法分家,后口动物则把胚层之间的对话协议整个换版——最终要回答的是:三十余套门级构型如何在数亿年间被反复试错并定型。
本节地图
阅读完本节,你应当能够:
- 甩掉"海绵→水母→蠕虫→昆虫→脊椎动物"这条想象中的升级台阶;
- 讲出海绵领细胞与领鞭毛虫之间的演化含义;
- 辨别蜕皮动物与螺旋卵裂动物在发育语法上的分野;
- 指出后口动物的真正变革所在——中胚层的来源方式;
- 解释棘皮动物的五辐对称为何属于"被折叠进新体系的两侧对称";
- 说出脊索动物三项定义特征各自的发育遗传根基。
一、破题:脉络不是进步史
人们很容易把动物演化想成一条由简入繁的独木桥。这个画面诱惑力不小,坏处却大:它遮蔽了真实的运作方式。今天站在我们面前的每个门,都是其谱系在某个特定历史机遇期成功固化某种发育可塑性边界的成品——它们不是没画完的草稿,而是淬炼了亿万年的稳定解,好比水流在岩层裂缝里各自冲刷出的定型河槽,而不是百条溪流争抢同一个河口。
所以本节要回答的不是"谁更高级",而是三道题:哪些发育模块在哪个时间点首次上线?哪些基因调控网络完成了不可逆的层级定型?哪些胚层关系成了此后一切形态创新的拓扑地基?解题需要三把钥匙同时上手:古生物学的断代标尺、比较胚胎学的形态透镜、演化发育生物学的基因电路图。
二、基干之锚:海绵与刺胞动物的最底层代码
打量海绵与刺胞动物时,切莫用"活化石"或演化余料的眼光。它们身上保存的,是多细胞生活最初落笔时写下的最底层代码——后来叠上去的复杂调控层没有覆盖到那里,于是发育原语得以直接暴露在表型上。
海绵的领细胞与领鞭毛虫的相似并非巧合:纤毛摆动驱动水流,微绒毛圈拦截细菌,一个细胞就自带摄食、获氧与排废的完整功能。更要紧的是骨针的生物矿化由硅蛋白、碳酸酐酶等专职分泌蛋白精准调度——在神经与肌肉尚未问世的年代,动物已经练就组织层面的生化分工。骨针形态的五花八门(单轴、三轴、四轴),正是早期基因调控网络微调结果在物理世界的显影。
刺胞动物交出的答卷是网状神经与刺细胞的联动系统。刺丝囊相当于纳米级的发射器,触发条件是膜电位翻转与钙离子瞬变——没有中枢,也没有带极性的突触,一套基于电化学信号的行为回路已然运转。其神经元网状互联、不辨方向,是神经系统最原始拓扑的实证:它不回答"在哪里"或"在何时",只回答"有无刺激"。这套配置在水母的节律泳动里高效服役六亿多年——不是因为它简陋,而是对浮游滤食者来说,它已经是足够好的解。
这段认识纠正了老叙事的一个偏差:多细胞体制的成功,首先靠细胞间的功能协同与生化分工,而不是靠神经或运动系统的出现。基干门类是动物演化主干上最牢靠的锚,把整棵大树钉在寒武纪之前的地质基座上。
三、原口辐射:发育程序的语法分家
原口动物的爆发,堪称一场围绕发育程序语法的大实验——演化没有发明新零件,而是改写了零件的装配指令。
蜕皮动物(线虫、节肢动物等)与螺旋卵裂动物(软体、环节、扁形动物等)同属原口阵营,发育语法却各行其道。分野最明显处在胚胎早期细胞命运的敲定方式:蜕皮动物多用定型卵裂,第三次卵裂之后各卵裂球的命运即被锁死(线虫是经典样本——体细胞恒定 959 个);螺旋卵裂动物则上演典型的不对称分裂,子细胞按特定角度层层错开,排出一张可预知的细胞谱系图,也给细胞间信号微调命运留了余地。
更深一层的推手是 Hox 基因簇空间表达域的挪动。在果蝇(蜕皮方代表)体内,Hox 基因沿头尾轴严格按共线性排布,边界像刀切般齐整;在蜗牛(螺旋方代表)体内,Hox 基因同样在场,表达域却明显"漂移"——Hox3 在腹足类仍兼管躯干模式化且辖域更宽,Post2 的表达甚至一路延到足部,正对着软体动物"足-内脏团-外套膜"的三段式体构。同一批基因在不同谱系被接进不同的上游开关与下游执行器,产出外形悬殊却职能相通的结构。这也印证了演化发育生物学的信条:创新多半出自调控序列的改动,而非编码序列的换血;门类之别,归根结底是基因调控网络拓扑的重构。
原口辐射由此成了一场发育程序的方言分化:蜕皮方押注时间优先的确定性语法——便于快速发育与体型微缩;螺旋方保留空间优先的可塑性语法——支撑复杂体腔与分节器官的渐次搭建。两条路难分高下,而把它们拴在同一原口主干上的,是一句被保守至今的古老约定:口由原肠胚的胚孔发育而来。
四、后口革新:胚层对话协议的换版
视线转到后口动物,演化翻开了最激进的一页:胚层之间的发育对话协议被整体改写,身体的中轴架构随之重新定义。
老教科书强调"后口"意指口不来自胚孔,但这只是表层。真正的变革藏在中胚层的来源方式里:原口动物的中胚层多由特定卵裂球(如 4d 细胞)单独分出;后口动物的中胚层则普遍出自原肠胚内陷时内外胚层交界处的细胞集体迁徙与重排。这一机制转换赋予中胚层前所未有的位置弹性与信号响应面——它不再是功能预置的硬编码模块,而是一块可任由 BMP、Wnt、Nodal 多重梯度雕琢的发育画布。
棘皮动物成体的五辐对称,正是这块画布被推到极致的产物。它的幼虫仍是左右对称,变态时左体腔囊异常膨大,牵动身体绕口部大幅旋转重组,水管系统、步带沟等原本成对的结构最终排成辐射状。整个过程依赖 Nodal 通路在左侧的选择性开启——而 Nodal 恰是后口动物建立左右不对称的核心开关。换句话说,五辐对称不是退化版的两侧对称,而是两侧对称的发育程序被高度特化地"折进"了一套新对称体系。
脊索动物的三项定义特征——脊索、背神经管、咽鳃裂——共同指向中胚层与外胚层关系的范式更替。脊索由头部中胚层衍生的一群特殊细胞构成,分泌 Shh 信号,充任整条背腹轴的组织中枢;背神经管的形成,则是外胚层在脊索信号梯度下经历神经诱导与神经褶闭合的精巧工程;咽鳃裂来自内胚层咽囊与外胚层鳃沟在颈部的准确对接,受 Pax1/9、Tbx1 等基因管辖——同一批基因在海胆(后口基干)体内已在消化道开口的模式化中上岗。
所以,棘皮动物与脊索动物的"同源"不在静止的形态,而在动态的发育逻辑:都靠 Nodal 立起左右不对称;都让中胚层充当信号中枢远程调度外胚层与内胚层;咽部构造都出自内外胚层界面的保守互作。胚层同源的实质,不是细胞出处一致,而是发育过程中的职能与调控逻辑高度守恒。后口动物没有添置新胚层,却让旧胚层之间萌生出一门全新的对话语言。
动物之树三大主干的发育协议对照
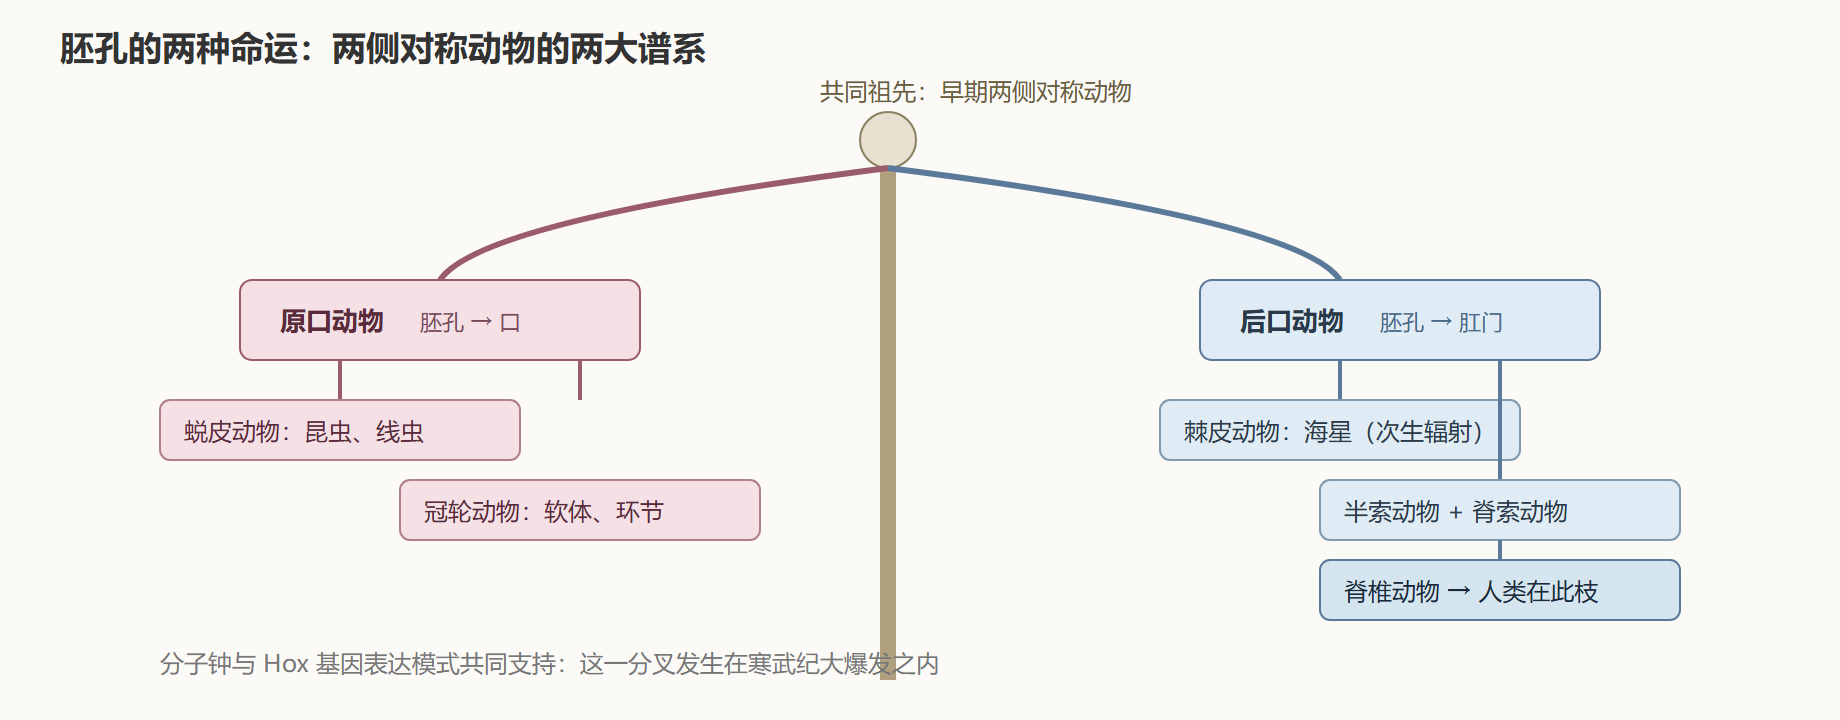
⚠️ 常见坑:环节动物与节肢动物的分节曾长期被当作同源的证据,直到 Hox 表达模式研究揭穿二者发育遗传根基完全两样——这是趋同演化污染形态证据的教科书案例,任何依靠形态搭建的早期动物系统发育模型都必须自带趋同校正。
💡 关键直觉:研究一个门,就是在研究一种被历史封存的发育逻辑。在实验室里看到小鼠 Hoxb4 突变引发颈椎同源转化,或在海胆胚胎中阻断了 Nodal 信号从而破坏左右不对称——我们触到的不是孤立现象,而是横贯六亿年、串联三十个门类的深层演化逻辑在今天的回声。
五、脉络即框架:本节的枢纽位置
三条主干的梳理收束于一条方法论结论:门不再是含糊的分类标签,而是一组具有清晰发育同源边界的演化模块单元。时间维度上,寒武纪大爆发被拆解成一串可追溯的发育创新事件——骨针矿化、网状神经联动、Hox 簇共线性定型、中胚层信号中枢上位——每一件都能在分子钟与化石记录的双向核对里定位;机制维度上,它给此后一切微观研究(从单基因敲除表型到细胞谱系追踪)提供了绕不开的解释框架。离开门级脉络谈基因功能,就像离开语法谈词义。
要点串联
- 要点一:现存门类是发育可塑性边界被历史冻结后的稳定解,不是升级台阶上的踏板;
- 要点二:海绵与刺胞动物保存的是未被覆盖的底层代码——组织级生化分工与分布式电化学回路;
- 要点三:原口内部的分家是发育语法之争:蜕皮方时间优先定型,螺旋方空间优先可塑;
- 要点四:后口真正的变革在中胚层改由内陷迁移产生,由此获得充当信号中枢的资格;
- 要点五:棘皮动物的五辐对称,是两侧对称程序经 Nodal 通路折进新体系的结果;
- 要点六:胚层同源的实质是调控逻辑守恒,而非细胞出处相同。
下一节潜入最深的时间层:这些门级构型为何挤在寒武纪集中亮相?宏演化的引擎由哪些齿轮互相咬合?
门类速查表
| 门 | 代表动物 | 标志性创新 | 生境 |
|---|---|---|---|
| 刺胞动物门 | 水母、珊瑚 | 刺细胞、两胚层 | 水生 |
| 环节动物门 | 蚯蚓、沙蚕 | 分节、真体腔 | 水陆 |
| 节肢动物门 | 昆虫、虾蟹 | 几丁质外骨骼、分节附肢 | 全生境 |
| 软体动物门 | 蛤、章鱼 | 外套膜、齿舌 | 多水生 |
| 棘皮动物门 | 海星、海胆 | 水管系统、五辐对称 | 海洋 |
| 脊索动物门 | 鱼、鸟、兽 | 脊索、咽鳃裂、肛后尾 | 全生境 |
谱系骨架图
图:六大门类的亲缘关系示意
图:原口与后口两大谱系的分野
谱系数据档案:门级分化时间与规模
门级演化脉络可用两个数据截面锚定:分化的时间坐标与现存规模。
门,首现化石/分子钟估计(Ma),现存物种数(约),幼体发育模式,基干特征 多孔动物门,埃迪卡拉纪约600,9000,两囊幼虫,领细胞滤食、无神经 刺胞动物门,寒武纪早期约540,11000,浮浪幼虫,刺细胞、网状神经 环节动物门,寒武纪约518,22000,担轮幼虫,裂体腔真体腔、同律分节 节肢动物门,寒武纪约521,1200000,原节幼虫等多种,几丁质外骨骼+蜕皮 软体动物门,寒武纪约540,85000,担轮幼虫(间接发育),齿舌、外套膜 棘皮动物门,寒武纪约520,7000,左右对称幼虫,五辐对称成体、水管系统 脊索动物门,寒武纪约518,65000,尾索/头索/脊椎三亚门,脊索、背神经管、咽鳃裂
寒武纪门类爆发的时间密度可以用一个简单的速率对比呈现。
# 门级起源速率:寒武纪 vs 其余约 5 亿年 cambrian_mys, phyla_cambrian = 25, 20 # 约 541-516 Ma 间约 20 个门首现 phyla_rest, rest_mys = 12, 484 # 此后仅零星新增(半索、苔藓等存疑) rate_c = phyla_cambrian / cambrian_mys rate_r = phyla_rest / rest_mys print(f"寒武纪速率: {rate_c:.2f} 门/百万年") print(f"其后速率: {rate_r:.4f} 门/百万年") print(f"倍差: {rate_c/rate_r:.0f} 倍") # 分子系统学补充:许多门的"分子分化时间"早于首现化石 50-100 Ma, # 埃迪卡拉纪的指纹状化石(如 Kimberella)提示软体门类的隐匿历史, # 门级体制的分子起源与形态显形之间存在漫长的"潜伏期"。
表的最后一列连向下一节的问题:体制既已就位,是什么动力学让某些谱系狂飙(昆虫超百万种)而另一些门(栉水母)至今仅两百余种?