3.2 宏演化机制
3.2 宏演化机制
本节摘要:宏演化机制不能靠把微观演化按时间拉长来推演,它是选择压力、发育限制、生态空档、遗传弹性与地质灾变在百万年尺度上非线性纠缠后涌现的动力学。本节三块拼图:把化石记录当作原生数据流来读、用三重整合标尺审视关键性状、沿由描述迈向因果建模的理论脉络——借此回答寒武纪为何只用两千万年就凑齐全部门级构型、创新为何总在生命之树上成簇引爆。
上手前先明确
阅读完本节,你应当能够:
- 论证化石记录是宏演化动力学的直接读数,而非需要补考的残卷;
- 复述寒武纪大爆发"氧与 Hox 双扳机"假说及其证据链;
- 用三条标尺(发育能落地、功能能拼合、生态能外扩)衡量关键创新;
- 说明鸟类起飞为何必须三套子系统咬合、而非只靠羽毛一件装备;
- 讲清 UCP1 与内源化逆转录病毒分别在恒温、胎生演化里的戏份;
- 描述宏演化速率统一标度怎样把有效种群规模与谱系寿命挂钩。
一、开局之问:跨越为何扎堆出现
有三件事长期让生物学家睡不安稳:其一,寒武纪短短两千万年——不足显生宙的 0.5%——现生动物的几乎全部门级身体构型悉数登场;其二,哺乳动物在恐龙的阴影里潜伏了一亿两千万年,白垩纪一结束便迅速接管陆地;其三,鸟类起飞、鲸类重返海洋、蝙蝠的声呐,在系统发育树上总是成簇炸开,而不是匀速摊平。答案既不在孟德尔的豌豆地里,也不在双螺旋内部——它们埋在地层褶皱与基因组拓扑的交叉处。
宏演化自带涌现属性:当几重限制条件碰巧同时松开,系统就可能越过临界阈值,引爆不可逆的形态创新或谱系辐射。这跟气候系统的临界点是一个道理——升温从 1.5 摄氏度到 2.5 摄氏度之间,冰盖消融的速度并非线性爬坡,而是存在陡峭的相变拐点。渐变攒到某个节点,发育网络的一点小扰动就足以掀翻整条体轴规划。
二、时间之尺:把化石当原生数据流来读
很长一段时间里,古生物学家总在替化石记录的"残缺"赔不是,好像那是一份等着分子钟来补考的答卷。这种姿态恰恰挡住了化石最值钱的用处:每一块保存完好的布尔吉斯页岩节肢动物、每一枚澄江生物群奇虾的口器,都定格着某个时空坐标上形态空间的一个采样点——它们是演化轨迹在相空间里的真实投影。
用这个眼光回看寒武纪大爆发,"生命忽然发明了身体"属于误读。分子钟与早期胚胎化石已经确认,后生动物冠群的起源远在 5.4 亿年之前——埃迪卡拉纪的软躯体生物(如迪金逊水母)保存状态上乘,却不见任何门级分化的征兆;而寒武纪初布尔吉斯页岩的沉积条件与前代并无实质差别,形态多样性却陡然井喷。真正爆发的,是构型创新的速度与幅度。
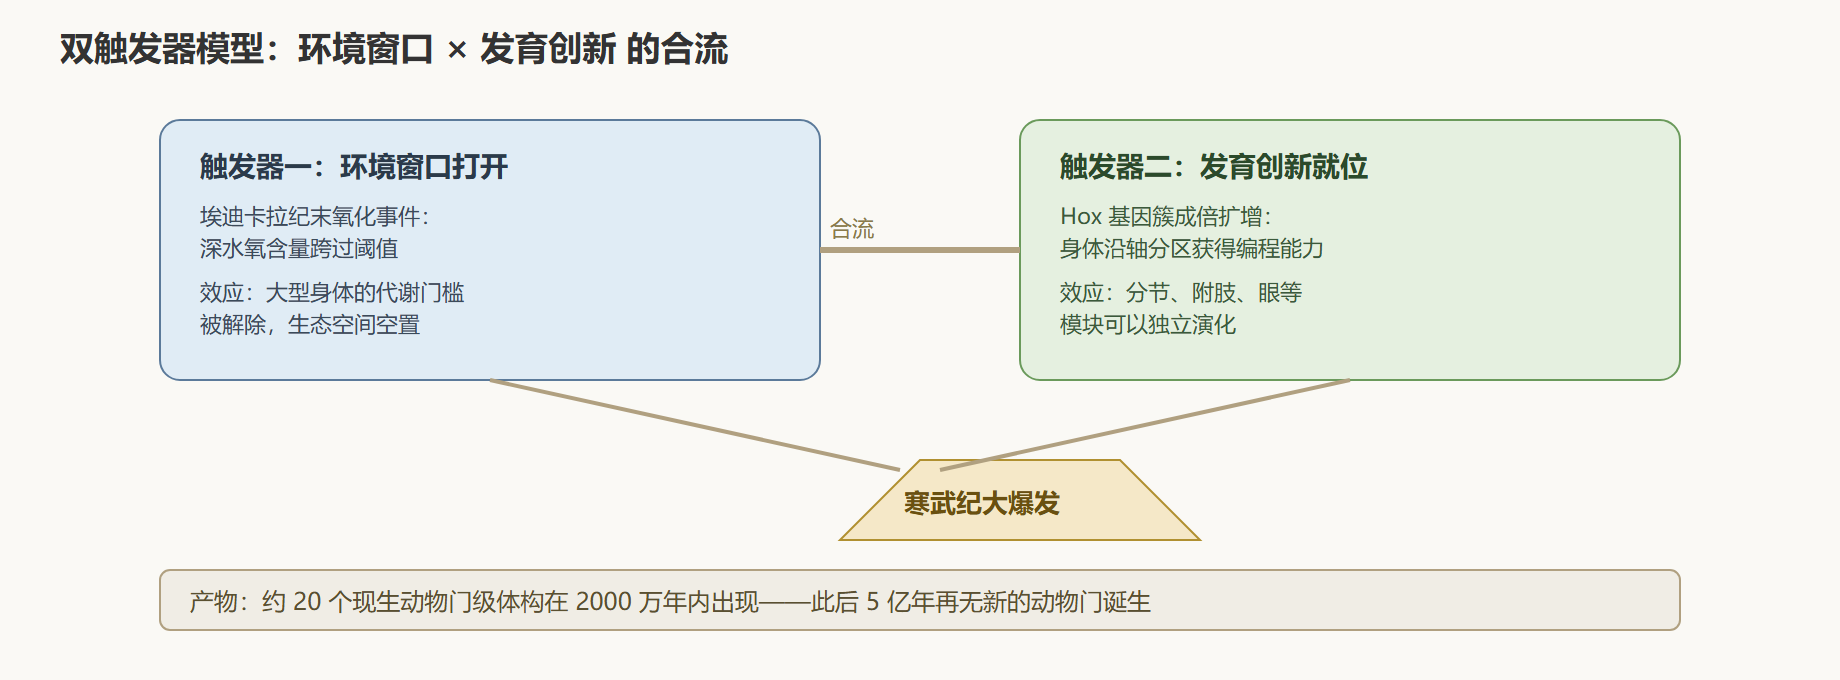
近年整合地球化学、发育生物学与系统发育模型的研究把矛头指向双扳机。头一个,海洋表层含氧量在约 5.2 亿年前发生临界跃升:海水碳同位素正偏与钼、铀同位素比值一致表明表层氧化程度冲破阈值(估算约为现代的 40%)——氧不只是代谢原料,还直接管着 HIF 通路等发育信号分子,大型、高耗能动物由此领到能量通行证。第二个,两侧对称动物祖先的 Hox 基因簇在寒武纪前夜至少经历两轮大规模串联重复,从原始的 7-8 个扩充到 13-14 个,给体节特化、附肢分工、头部分区备好了模块化的遗传工具箱。氧是燃料,Hox 是图纸,两者在时间上撞了个正着。生态反馈随即接力放大:生态位被迅速填满、捕食压力步步升级,反过来又筛选出装甲化、矿化外壳与视觉系统这类防御创新。
这幅图景也改写了间断平衡的含义:所谓"平衡"并非原地踏步,而是发育与生态达成的稳态——旧构型把形态空间占得满满当当,小打小闹的变异翻不过适应峰;所谓"间断",也不是随机突变的决堤,而是多重限制同时松绑后释放出的形态探索余地。
寒武纪大爆发的双触发与级联放大
三、创新引擎:用三重标尺审视关键性状
飞行、恒温、胎生常被教科书打包叫作"适应性状",这个归类太扁平。够格的宏演化关键创新得同时过三关:发育上能落地(出自既有模块的重组或调控改动)、功能上能拼合(须多系统协同改造,单件性状独木难支)、生态上能外扩(开辟全新资源维度,点燃谱系辐射)。
以鸟类飞行为例,只盯羽毛是危险的偷懒。始祖鸟的羽毛虽已具备非对称飞羽的构造,可它胸骨的龙骨突微弱、肩关节摆幅有限、呼吸系统仍是爬行类配置——光有羽毛上不了天。真正的跨越在三套子系统的精密咬合:翼的结构上,前肢骨拉长、腕骨愈合、指骨精简成刚性翼梁,羽小枝的钩状互锁拼出连续气动面;呼吸上,九个气囊搭配刚性肺实现单向气流,吸与呼两个阶段都在换气,供氧效率达到哺乳类的 2-3 倍;代谢上,高代谢率撑起持续飞行,羽毛则一物两用,既是气动面又是隔热层。CT 扫描给出旁证:驰龙类的 Microraptor 已有气囊痕迹与非对称飞羽却缺一副结实的胸骨,始祖鸟胸骨孱弱、气囊系统却相当发达——这意味着气囊与羽毛可能早作为"预适应模块"在场,原本服务于体温管理或求偶展示,后来在特定生态压力下才被征调入飞行编制。宏演化的创新,多半是旧零件换了个装法,而不是从零造新件。
恒温的来路更有启发性。流行说法把它归给"毛发加高代谢率",可那只是描述结果。深层机制是能量分配策略的整盘重编:哺乳类与鸟类各自独立练成恒温,却握着同一个核心开关——UCP1(解偶联蛋白 1)在褐色脂肪组织中的特异性表达,这种蛋白让线粒体质子梯度不拿去合成 ATP,而是直接变成热。基因组比对显示,两类的 UCP1 启动子区都经历了趋同改造,转录因子结合位点成片富集。恒温不是海量微效基因的堆叠,而是少数主控调控元件的趋同翻修——"少即是多"的样板。
胎生的终极形态——真兽类绒毛膜尿囊胎盘——则是发育整合的顶配。它远远不止"把蛋揣在肚子里",而是母体子宫内膜与胚胎绒毛膜、尿囊膜三方分子谈判的精密工程:胚胎一方分泌分子遥控母体的黄体维持与血管新生,母体一方则大批表达免疫耐受分子,压下对半同种胚胎的排异。基因组研究发现,胎盘相关基因(如 PEG10、SYNCYTIN)竟出自古老逆转录病毒的内源化——病毒的包膜基因被收编为细胞融合蛋白,砌成了合胞体滋养层。宏演化在此露出惊人的"盗火"手段:最激进的新发明,常常来自对外来遗传元件的驯服。
| 创新类型 | 发育根基 | 功能拼合 | 生态外扩 |
|---|---|---|---|
| 鸟类飞行 | 预适应模块征调 | 翼-气囊-代谢三咬合 | 空中生态位敞开 |
| 恒温 | UCP1 启动子趋同翻修 | 产热-绝缘-代谢联动 | 昼夜与高纬地带 |
| 胎生胎盘 | 逆转录病毒基因内源化 | 免疫耐受-内分泌-营养输送 | 亲代投入加码 |
四、理论骨架:从描述现象到建立因果
要跳出对"爆发""辐射""停滞"的定性复述,宏演化正在三个方向上搭建形式化框架。
其一,给发育限制定量。形态空间这个概念已延伸为发育可能性空间:比较各类群的形态变异系数与系统发育距离,即可估算边界。举例来说,龟鳖类因为肋骨愈合成背甲,脊柱形态的变异幅度只有蜥蜴的五分之一——这不是选择压出来的,而是发育路径被锁进了低维子空间。数学上,发育可能性空间可以建成高维参数空间里的一张流形,自然选择在其上施加梯度场,宏演化跨越则对应流形拓扑的改写。
其二,动态评估生态空档。空档不是静态的空座,而是资源维度与竞争强度的函数。大灭绝一旦清空某个维度(K-Pg 事件抹掉非鸟恐龙,腾出大型陆生肉食的位子),幸存类群在该维度上的形态分散度便指数级上扬——新生代哺乳动物的体型从鼩鼱一路铺到巨犀,根源在此。近年关于鸟类喙形的多尺度研究同样证实:喙形多样性的爆发并非突变率飙升所致,而是岛屿拓殖这类生态空档放松了性状演化的适应约束——真正扣动宏演化扳机的是机会,不是本事。
其三,宏演化速率的统一标度。2022 年刊于《Nature Ecology & Evolution》的研究提出,物种形成率、灭绝率与形态演化率共用一个底层速率标度,与有效种群大小、基因组突变率、种群分裂所需时间三者的乘积成正比。这套标度成功给出预测:热带类群凭借大有效种群与漫长的分化时间,宏观演化速率普遍压过极地;岛屿物种种群小,形态演化虽快(漂变当主角),谱系却命短。微观参数与宏观模式之间,第一座像样的数学桥就此落成。
⚠️ 常见坑:把实验室思路硬搬到地质尺度的因果推断上。生命的录像带没法倒带重放——白垩纪晚期有蹄类体型缩水,可能是恐龙灭绝腾出的生态空间所致,可能是全球降温触发的生理应答,也可能是两者反馈环的合力。传统相关分析在此失灵,前沿做法(祖先状态重建叠加古环境代理指标建模)也仍受化石碎片化的掣肘。
💡 关键直觉:灭绝不是随机抽签,它明显偏袒古老、分布狭窄、演化速率迟缓的支系——而这恰是生命应对剧变时最金贵的"演化备份"。加勒比海圣赫勒钠蠼螋 2014 年谢幕时,走掉的不止一个物种,还有一条独立演化了三亿年的独苗谱系。
五、收束:读懂节律
宏演化机制是生命在时间深渊里记录自己的那套语法。它不许诺线性进步,却以冷静的因果律提醒我们:每一次振翅、每一次胎动,都不是奇迹的灵光一闪,而是氧浓度、基因重复、病毒馈赠、生态真空与发育逻辑在漫长岁月里彼此咬合的必然回声。端详一块三叶虫化石的刻纹,或拆解一只蜂鸟基因组里的气囊发育调控序列,我们触到的并非遥远的往昔,而是一台此刻仍在轰鸣的深层引擎。
温故知新
- 要点一:化石记录是宏演化的原生数据流,寒武纪爆发的是构型创新速率,不是动物起源本身;
- 要点二:双扳机——海洋氧化跃升送来燃料,Hox 簇由 7-8 个扩到 13-14 个送来图纸,生态反馈接力放大;
- 要点三:关键创新的三重标尺:发育能落地、功能能拼合、生态能外扩,缺任何一条都不算数;
- 要点四:气囊与羽毛是先期到岗的预适应模块,飞行是旧零件的新装法;
- 要点五:恒温出自 UCP1 启动子的趋同翻修,胎盘基因 SYNCYTIN 出自逆转录病毒内源化——典型的"盗火"操作;
- 要点六:统一速率标度(有效种群 × 突变率 × 分化时间)头一回在数学上打通微观与宏观。
下一章把镜头从时间摇向空间:物种怎样在多维资源空间里错位共处,行为又怎样反过来成为撬动生态位的主动杠杆。
图:寒武纪大爆发的双触发器模型
计算实例:红皇后与宫廷假说的速率检验
宏演化机制的价值在于可检验。以化石属的起源-灭绝速率为材料,两种经典假说给出相反预测。
import random # 简化分支模型:对比"宫廷假说"(环境容量驱动)与"红皇后"(竞争驱动恒定更新) def diversification(model, n0=50, t=10, seed=7): rng = random.Random(seed) n = n0 history = [n] for step in range(t): if model == "court": lam, mu = 0.25, 0.10 # 高起源、低灭绝:谱系净增值 else: # red queen lam, mu = 0.30, 0.28 # 高周转:起源与灭绝几乎持平 births = sum(rng.random() < lam for _ in range(n)) deaths = sum(rng.random() < mu for _ in range(n)) n = max(1, n + births - deaths) history.append(n) return history print("宫廷假说:", diversification("court")) print("红皇后 :", diversification("red queen")) # 化石证据(科级曲线):显生宙多样性长期净增, # 但属级灭绝率在"常态区间"稳定于每百万年 0.1-0.5 属/属—— # 净增长来自起源率对灭绝率的持续微弱优势,两种假说各执一半真相。
另一个必须会算的量是种群遗传漂变的有效瓶颈,它决定宏演化的微观门槛。
# 有效种群量 Ne 与中性等位基因固定时间:约 2Ne 世代 for name, Ne in [("旅鸫 Turdus migratorius", 1_600_000), ("灰狼 Canis lupus", 60_000), ("猎豹 Acinonyx jubatus", 1_700), ("历史瓶颈中的亚洲狮", 50)]: gens = 2 * Ne print(f"{name}: Ne={Ne:>9,} -> 中性等位基因平均固定需 ~{gens:,} 世代") # 猎豹两次历史瓶颈(约10万年前与1万年前)使其杂合度降至猫科均值的约 3%, # 精子畸形率超过 70%——宏演化的随机项在小种群中直接改写生理表型。
速率检验与瓶颈算术合起来给出本章的机制骨架:趋势(宫廷)与噪声(红皇后、漂变)在同一部计分板上记分,寒武纪与集群灭绝只是把比分骤然拉开的回合。