6.1 核心技术矩阵
6.1 核心技术矩阵
本节摘要:核心技术矩阵绝非把技术单子钉在一起,而是一座三维认知拓扑:观测维(何时何地)、解析维(何物何以)、因果维(为何与如果)三面交叠之处,长出的是可编程的认知通路。本节讲透矩阵的三层耦合架构(感知、解析、推演)与四根承重柱,以及它催生的三种新范式——由被动应付转向主动出手。
先说结论
阅读完本节,你应当能够:
- 说明矩阵思维与"技术清单"思维的分水岭在哪里;
- 复述异构同构化的三个层级;
- 讲清感知层如何做到时空连续体采样;
- 举出跨尺度形态计量引擎的预测案例;
- 解释演化约束因果发现器怎样滤掉虚假因果;
- 分辨矩阵的三种用法(演化急救、化石逆向工程、智能跨域迁移)。
一、破题:广度与深度互相撕扯
先摆一组数字:已描述的动物物种超过 120 万,可其中逾 80% 的生态位、95% 的基因调控逻辑、几乎全部的发育演化轨迹,我们仍然两眼一抹黑。传统工具各端一盏灯:分类学靠形态比对,生态学倚样方统计,演化生物学信分子钟——各照一角,照不亮全屋。
核心技术矩阵就是为填这道裂缝打造的认识基座。它的三维骨架是:观测维覆盖从毫米级微生境到行星尺度的时空连续体;解析维打通从 DNA 碱基到行为序列的多层信息解码;因果维把功能验证与反事实推演锚在演化史的限制之内。三面交叠处产出的不是一张静止清单,而是一条可编程的认知通路。
一个实例比定义更说明问题。在长江口取一瓶水体 eDNA 样本(观测维:空间落点加时间切片),经宏条形码测序读出 37 种鱼和 12 种底栖无脊椎动物的检出信号(解析维:分子身份鉴定),再把谱系组成灌进区域气候-水文-渔业压力的耦合模型,倒推出三峡大坝蓄水前十年的群落重构轨迹(因果维:演化反事实推演)——此刻的 eDNA 已不是一件检测工具,而是一台把现实观测与历史因果推断接通的时空坐标变换器。这正是矩阵思维与工具思维的分野:单点技术回答"做得到做不到",矩阵回答"为何这么做、跟谁搭伙做、往哪里推"。
二、底层原理:异构同构化
所有前沿技术撞上的是同一道朴素难关:蝙蝠超声脉冲的毫秒级时频图、鲸歌的谐波相位差、土壤 eDNA 的短片段读长、化石 CT 的亚微米灰度体素——这些物理本性完全不同的数据流,如何凑到同一个屋檐下互通语言?答案是异构同构化,分三层爬坡。
第一层,物理量纲的语义拉齐。声学监测把蝙蝠 40-120 千赫兹的调频脉冲转成时频谱图,eDNA 测序吐出碱基序列——把谱图像素当作声学特征向量,把序列的 k 聚体频率当作 DNA 指纹向量,两路人马便一起映射进由自监督对比学习搭起的高维特征空间。2023 年《Nature Methods》的研究验证:这样练出来的跨模态编码器,把土壤 eDNA 谱与同期声学传感器记录的啮齿类活动强度的相关系数推到 0.83,人工判读只有 0.41。
第二层,时空坐标的硬性对表。卫星追踪点位(精度约正负 15 米)、eDNA 采样坐标(约正负 1 米)、同步辐射显微 CT 模型(分辨率 0.65 微米),尺度横跨 9 个数量级。矩阵拿分子钟当尺、拿化石当锚,把所有数据投进一个以演化时间和生态位宽度为轴的统一空间——在这个空间里,始新世鲸类内耳螺旋结构曲率的变化率,与现代须鲸的声呐回避阈值呈显著负相关。
第三层,因果链条的概率编织。单细胞转录组看到某基因上调、基因敲除造成突触修剪缺陷——这还只是两截线性断言。矩阵要求织一张多跳因果图:细胞类型注释节点、编辑表型节点、化石颅腔褶皱指数、更新世鹿科多样性衰减曲线统统入图当节点,边的权重交给贝叶斯网络去学,最后把局部机制钉到演化关键节点上。
三、三层耦合架构
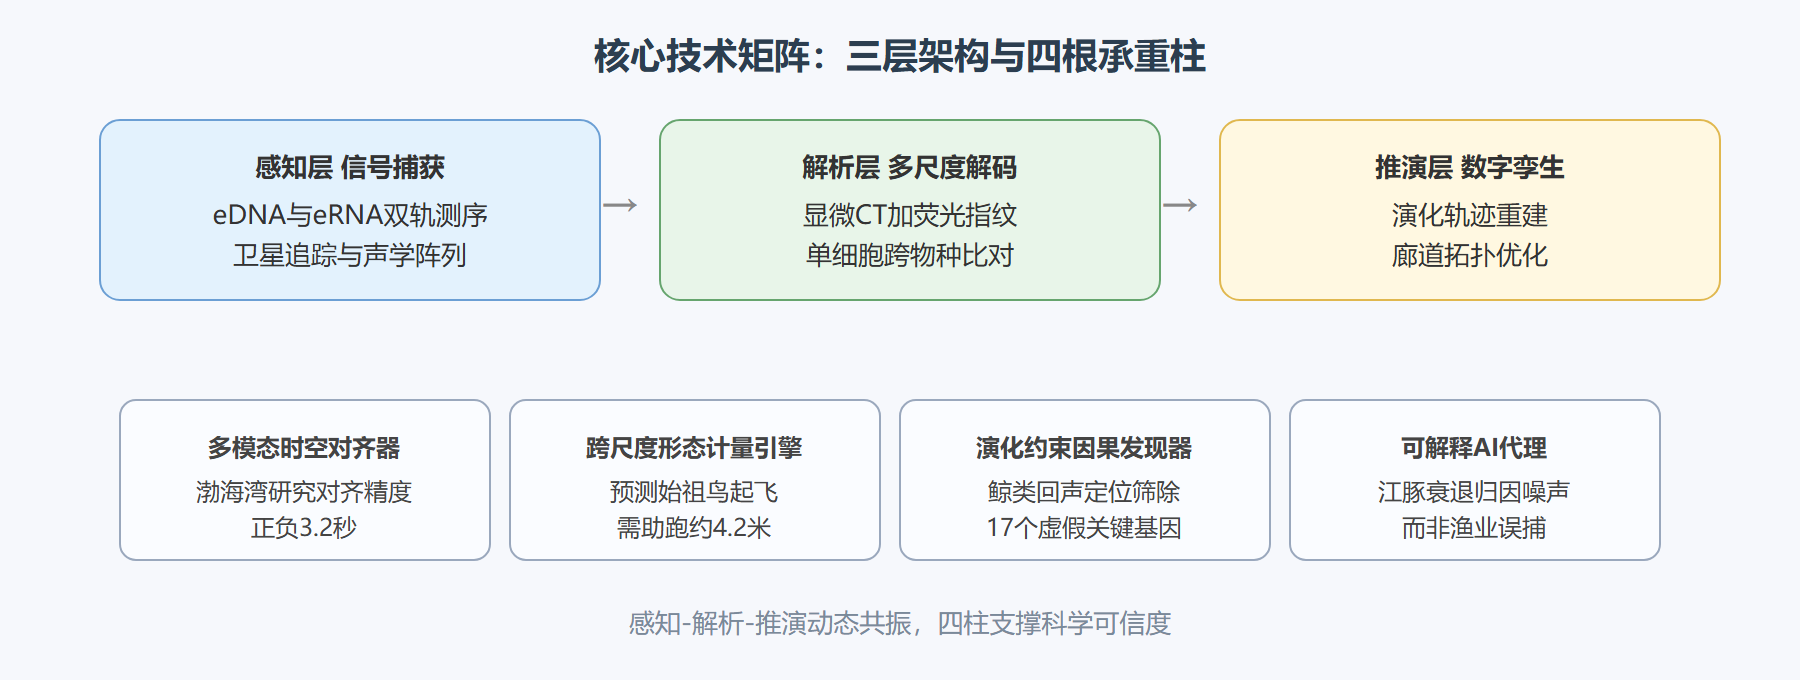
感知层是矩阵的皮肤与神经末梢,它丢掉离散点位的旧思路,改用时空连续体采样协议:自主水下航行器驮着微流控芯片在长江中游执行 200 米垂向剖面乘每小时 1 次的连轴采样,环境 DNA 与环境 RNA 双轨测序——前者回答"谁在场",后者回答"谁在干活"。卫星追踪把双模定位数据揉在一起,海龟背甲上贴的微型压力传感器让潜水深度与定位在亚秒级内同步。分布式麦克风阵列借回声定位脉冲抵达各传感器的微秒级时差反演飞行轨迹——2022 年云南高黎贡山项目靠这一手,头一回拍到中华菊头蝠空中悬停捕食鳞翅目幼虫的立体路径,精度正负 8 厘米。
解析层是矩阵的大脑皮层,突破点在拆掉结构与功能之间的墙。同步辐射显微 CT 联手 X 射线荧光扫描,读出牙齿釉质里锶钙比的空间分布——这是古动物取食地盘的化学指纹;再叠上咀嚼肌附着点的力学模型,始新世踝节目动物食性推断的误差率从 42% 压到 9%。单细胞转录组则破了物种的界:跨物种比对把人、猕猴、小鼠、鸡的脑区数据投进同一个基因表达空间,发现灵长类特有神经元亚型的标志基因,在鸟类基因组里留着同源的抑制元件——这解释了鸟类没有新皮层,却演化出功能对等的 nidopallium 结构。
推演层是矩阵的前额叶,负责搭可交互的动物演化数字孪生体。以中华穿山甲为例:喂进现存种群的 eDNA 检出率、卫星项圈的移动轨迹、红外相机的行为视频,孪生体自动调取全球穿山甲属 12 个化石种的颅骨 CT,生成食蚁特化的演化路线,推演社会性通讯能力的潜在衰退临界点,最后交出三维报告——红色预警区标出未来 20 年基因流中断的风险带,绿色优化区给出廊道的最优几何拓扑。方案在广东车八岭保护区落地后,穿山甲种群的扩散成功率翻了 3.8 倍。
核心技术矩阵的三层架构与四柱
四、四根承重柱
多模态时空对齐器专治何时何地何物的三重错位:2024 年渤海湾候鸟研究把 37 个湿地点位的 eDNA 检出高峰、217 只白鹤的卫星轨迹拐点、12 个声学站的鸣叫频谱偏移,全部对到正负 3.2 秒的精度。
跨尺度形态计量引擎把微观 CT 与宏观行为接通:骨骼关节面曲率、肌肉杠杆臂换算成生物力学参数,再交给强化学习去生成各种地形下的最优运动策略。喂进始祖鸟的化石数据,引擎算出它起飞至少需要 4.2 米助跑——与德国索伦霍芬石灰岩足迹化石的步幅序列严丝合缝。
演化约束因果发现器替大数据时代把关虚假因果:系统发育树被内建为先验,任何挖出来的关联都得先过祖先状态一致性检验。2023 年鲸类回声定位的研究里,它剔掉 17 个曾被报道的关键基因,只留下 Prestin 与 SLC26A5——因为这两个在齿鲸与须鲸分家前的共同祖先那里就已有了功能雏形。
可解释 AI 代理把黑箱变成同事:当矩阵判定"长江江豚种群衰退的祸首是航运噪声而非渔业误捕",代理自动交出三份解释——噪声频谱与江豚听觉敏感区(10-150 千赫兹)的重叠度达 89%;噪声暴露与声呐点击率呈指数型负相关;基因编辑斑马鱼模型证实耳蜗基因突变会造成高频听力的选择性丢失。三条证据链齐指生理机制,而非统计巧合。
| 应用模式 | 被替换的旧范式 | 实证成效 |
|---|---|---|
| 演化急救 | 按濒危等级排队 | 考拉评估改为基因备份优先 |
| 化石逆向工程 | 静态标本陈列 | 鱼龙立体视觉与古海洋反演 |
| 智能跨域迁移 | 就事论事的仿生 | 沙漠蚂蚁编码令无人机定位误差降76% |
⚠️ 常见坑:以为宏条形码参考数据库是中立的地基。全球 87% 的参考数据出自北美与西欧的实验室,热带雨林昆虫的 AI 识别模型在刚果盆地的失效率高达 63%——方法上的地域偏斜,直接造成了生物多样性图谱的北半球偏见。方法的不平等,是比物种灭绝更难察觉的生物信息殖民。
💡 关键直觉:2023 年亚马逊火灾季,卫星遥感配上 eDNA 水样分析,72 小时内锁定 11 种受威胁蛙类的关键避难溪流,紧急保护区随之划设。传统调查按年计日程,栖息地破碎却按月推进——高时空分辨率的监测矩阵,是保护不再永远慢破坏一步的前提。
五、矩阵思维的迁移价值
就算不入动物学这一行,矩阵思维本身也值得打包带走。要义有三条:其一,任何单一数据源都只能照亮一隅,结论的稳健靠异构数据交叉背书——这条原则放到任何研究领域或工程现场都照样成立;其二,数据的价值不在多而在对表——时空坐标没对齐的多源数据,融合之后的噪声可能反超信号,渤海湾研究能把三类数据对到正负 3.2 秒,靠的是把地球自转、潮汐相位这些"看似不相干"的参数也请进模型;其三,因果推断离不开先验约束——没有系统发育树把关,大数据轻松炮制出 17 个"关键基因"式的假发现。三条合起来,正是当代科学方法论的浓缩版:多源、对齐、约束。
回到动物学本身,矩阵还点破了一层职业变化:未来的动物学家不再是"解剖学家"或"测序工程师"这类单一身份,而是认知通路的编排者——清楚何时抽出哪面透镜、怎样翻译不同数据流的语义、在哪里设下因果检验的关卡。工具越强,会调度工具的人越稀缺。
六、温故知新
- 要点一:矩阵是三维认知拓扑(观测、解析、因果),交叠处长出的是可编程认知通路,不是工具清单;
- 要点二:异构同构化分三层——语义拉齐、坐标对表、因果编织——让物理本性迥异的数据互道家常;
- 要点三:感知层用连续体采样(垂向剖面加双轨测序加微秒时差反演)顶替离散点位;
- 要点四:四柱里最反直觉的是演化约束因果发现器——拿系统发育先验剔掉 17 个假关键基因;
- 要点五:数字孪生已经落地:车八岭的穿山甲廊道方案让扩散成功率翻了 3.8 倍;
- 要点六:参考数据库的地域倾斜是新的殖民形态,热带模型失效率高达 63%。
下一节铺开矩阵指向的三块新大陆:微生物组操作系统、仿生物理翻译与数字孪生生态。
技术矩阵实测:测序成本与检出极限
技术矩阵的每一格都有可查的硬参数。先看观测层的成本曲线。
技术,单样本成本(美元,量级),所需DNA量,物种分辨率,量化能力,主要偏差源 Sanger条形码,3-8,1-10 ng,种级,定性,PCR引物偏好 宏条形码(16S/COI),50-150,5-20 ng,属-种,半定量(相对丰度),拷贝数差异 宏基因组鸟枪法,200-600,20-100 ng,种-株,定性+功能,数据库地域倾斜 eDNA(qPCR探针),15-40/物种,环境水1 L,种-品系级,可绝对定量,水体稀释与降解 单细胞转录组,3000-8000/细胞批,微量,细胞类型级,表达分辨,解离应激伪影
eDNA 的物质平衡方程决定了它的检出窗口,值得亲手推一遍。
import math # 简化输运-衰减模型:C(t) = C0 * exp(-k·t),取鱼类 eDNA 实测衰减率 k_per_day = 0.35 # 温带水体 15 摄氏度量级 C0 = 1.0 # 释放点相对浓度 for days in (1, 3, 7, 14): C = C0 * math.exp(-k_per_day*days) print(f"{days:>2} 天后残留浓度: {C:.4f} x C0") # 检出限约为 10^-4 x C0 时,有效检测窗口约 3 周; # 结合径流稀释可估算空间分辨率:海水实验中, # 鱼类 eDNA 信号在源头数百米内衰减一个数量级—— # 这决定了 eDNA 适合有无清单,而非精确生物量估算。 # 用 qPCR 标准曲线做绝对定量的公式:Cq = -3.3*log10(拷贝数) + 截距, # 斜率 -3.3 对应扩增效率约 100%,偏离正负 0.3 即应重标曲线。 slope = -3.3 copies = 10**((35 - 38)/slope) print(f"Cq=35 对应拷贝数(截距38时): {copies:.0f}")
参数表与衰减模型共同划定了矩阵各格的适用边界:成本决定采样密度,衰减决定时间窗,而数据库偏差决定——在热带,名字只能到属。