6.2 前沿交叉方向
6.2 前沿交叉方向
本节摘要:动物学正在改换身份:从一门"回头看"的解释学科,变成可拆解、可复用、可编码的系统科学。本节铺开三条交叉战线:动物-微生物组是一套分布式生命操作系统(互作即架构)、仿生工程是对物理第一性原理的迻译(仿生即翻译)、数字动物学是信息空间里的镜像与推演(数字即镜像)——三者合力,拼出的是一套正在成形的新认知基建。
核心问题
阅读完本节,你应当能够:
- 借无菌小鼠与考拉解毒菌两项证据,说明微生物组对宿主免疫与代谢的编译效应;
- 讲清壁虎刚毛的范德华力吸附机理及其各向异性设计;
- 说明鲨鱼皮盾鳞如何靠相位抵消压低壁面剪应力;
- 复述章鱼皮肤三层细胞的光电混合运算;
- 说出 AI 物种识别里多模态证据融合的零件清单;
- 解释动态分布模型怎样挣脱 MaxEnt 的静态假设。
一、破题:动物学为什么开始"朝前看"
在老印象里,动物学是门回望的学问:解剖构造、追认谱系、复原演化来路。进入本世纪二十年代,它转而追问生命怎样运转、怎样协作、怎样被当成可拆解的系统来理解。转向背后的推力在于:动物演化攒下的方案,是数十亿年高压、多约束、自适应优化的存货——不靠精密加工却办成超凡的事,不凭中央指令却攒出群体智能。当人类社会撞上气候临界点、材料资源见底、疾病复杂度爆炸这些系统性难题,动物不再只是躺平的研究对象,而是一位寡言却资深的合作设计师。前沿交叉的差事,就是把写在甲壳褶皱里、菌群代谢网络中、突触连接模式下的"演化算法",迻译成可形式化、可建模、可工程化的原理体系。
二、互作即架构:微生物组这台分布式操作系统
如果把动物个体比作一台生物计算机,基因组只发了基础指令集,真正决定跑分的是宿主-微生物组共生体这套操作系统。这不是修辞,而是被无菌动物模型反复锤实的因果:在严格无菌环境里长大的小鼠,肠道相关淋巴组织发育明显掉队,免疫球蛋白 A 的分泌量不足野生型的 30%,清剿常见病原的效率跌掉两个数量级。要害在于这缺陷并非判了死刑——出生后第 7 至 14 天的关键窗口里种进特定菌群(比如脆弱拟杆菌的多糖 A),免疫系统的结构性重建即可点火,机理牵涉树突状细胞表面 Toll 样受体信号的开启,进而诱导调节性 T 细胞分化。微生物不是搭车的乘客,而是免疫系统的编译器兼调试员。
考拉的例子更叫人咋舌。桉树叶里萜烯类毒素的浓度,足以让绝大多数哺乳动物当场中毒,考拉却敢每天啃下 500 克以上鲜叶而面不改色。经典生理学把功劳记在拉长的消化道与缓慢的代谢头上,宏基因组测序却揭了底:考拉盲肠里富集的专性厌氧菌揣着独特的细胞色素 P450 同工酶基因簇,能高效羟基化桉叶素分子、生成水溶性更好的代谢物随胆汁走人。这不是简单的降级分解,而是一场生化路由:毒素分子被定向递往特定酶活性中心,反应路线受 pH 梯度与菌群空间分带的严管。考拉的食性适应,说到底是把消化道外包给了一个能进化、能传代的外挂代谢模块。
由此可以提炼互作的通则:一套分层咬合的分布式控制系统。宿主用黏液层、抗菌肽、免疫巡查筑起选择性围栏;微生物拿代谢物(短链脂肪酸、次级胆汁酸、色氨酸衍生物)、结构分子和基因水平转移当协议信号,回头改写宿主的表观基因组、神经内分泌轴与组织再生能力。技术框架也早已越过朴素的有菌移植,走向闭环调控:用基因编辑改装肠道工程菌,让它一嗅到炎症标志物就自主分泌抗炎因子;或者设计能应答宿主昼夜节律激素脉冲的合成基因回路,按点调节菌群的代谢流。这已不是照抄自然,而是用工程思路重签共生协议。
三、仿生即翻译:从生物现象到物理原理
生物启发工程拒绝浅薄的形制照搬(学翅膀造飞机式的粗略类推),执意解码生物材料、结构与行为背后的物理第一性原理,再译成通用的工程语言。
壁虎的飞檐走壁曾被视为奇观。显微观测显示,其脚趾上密布数百万根直径约 200 纳米的刚毛,每根末端又裂成数百个铲状小结构。早年的吸盘说被真空实验否决,粘液说被干燥环境测试驳回。正解是范德华力——一种短程、微弱但胜在量大的分子间作用:铲状结构与表面原子靠到 10 纳米以内时,量子涨落激出的瞬时偶极矩便产生引力。单个铲状结构的吸附力小得可怜,但一平方厘米脚掌上十亿量级结构的集体发力,足以让壁虎倒挂在光玻璃上。更妙的是刚毛的各向异性刚度(纵向硬以便传力,横向软以便贴面),且剥离要靠剪切而非垂直拉扯——这套设计直接孵化出干粘附材料范式:微米级倾斜柱阵列配上低表面能聚合物修饰,做到可逆、无残留、免胶水的粘附,已有航天机构拿去在零重力里固定设备。
鲨鱼皮的减阻指向流体力学的深层手筋。其表皮覆满微米级肋条状盾鳞,走向与水流一致。风洞与水槽实验表明,这些肋条并非顺水导流那么简单,而是在主动调制边界层湍流:其几何参数(高约 50 微米、间距约 200 微米)恰好对上近壁区湍流相干结构的尺寸,靠相位抵消拆解湍流猝发,壁面剪应力压低 12%。该原理被搬进船舶微图案涂层,生物污损附着率锐减 85%——它不杀生,只是改写了附着者感知到的物理世界。
章鱼的变色则上演了一场光子学政变。其皮肤三层功能细胞协同作业:带色素囊的肌纤维层管滤光,中层反射细胞动态调节鸟嘌呤晶体的晶格间距、精确锁定反射波长(结构色),底层白色散射细胞兜底背景。高速成像揭开幕布:这是一场光电混合运算——视觉系统录入环境光谱,神经中枢解出目标反射谱,同步调校三类细胞的机械张力与光学参数。受此点拨,液晶弹性体与电致变色聚合物合璧的双模态人工皮肤能在毫秒级切换色素态与结构态,替伪装、显示与人机交互开出新路。
| 案例 | 物理原理 | 工程落地 | 关键参数 |
|---|---|---|---|
| 壁虎脚 | 范德华力加各向异性 | 干粘附材料 | 刚毛约200纳米 |
| 鲨鱼皮 | 相位抵消拆解猝发 | 减阻抗污涂层 | 剪应力降12% |
| 章鱼皮 | 结构色混合滤光 | 双模态人工皮肤 | 毫秒级切换 |
四、数字即镜像:信息空间里的孪生与推演
数字动物学不是把动物数据扫进硬盘,而是搭一座与真实生物圈实时映射、深度咬合、自带因果推演能力的信息孪生体。
AI 驱动的自动物种识别早就不止于图片分类。以公众科学平台为例,其身后立着一台多模态证据融合引擎:视觉分支处理羽毛斑纹与行为姿态,声学分支拆解鸣叫谐波结构与马尔可夫链复杂度,地理分支灌入海拔、土壤、植被先验,甚至把用户历史观测的偏差也纳入校准。2023 年《Nature Machine Intelligence》的论文证实,该系统在热带雨林鸟类识别中区分相似种的准确率达 92.7%,已逼近资深分类学家——它的价值不在顶替专家,而在把专家肚里的隐性知识炼成可嵌进模型的结构化特征。
分布预测模型则正被气候危机当面质询。MaxEnt 虽仍是金标准,其静态假设(分布只由当下环境拍板)正被动态框架顶替:新一代模型把种群动态方程与扩散-反应方程捆在一起,承载力由区域气候模型实时输出的温度、降水与极端事件频率供数,扩散系数按森林破碎化指数动态衰减,死亡率里还添了物候错配项,专门量化传粉者羽化期与开花期的时间差对繁殖成功率的影响。预测于是不再是地图上挪色块,而是给种群的存续概率建一座时空概率场。
数字孪生生态把这一切推到顶点。瑞士苏黎世联邦理工学院搭的虚拟森林里,每棵模拟云杉都自带独立的水分传输模型、碳分配策略与病虫害响应规则;每头模拟红鹿个体都揣着基于强化学习的觅食决策树和社会网络关系权重;气象模块接着实时数值预报的数据流。灌进本世纪中叶高排放情景(升温 2.8 摄氏度、干旱频率翻三倍)时,系统交出的不止物种丰度变化,更有崩溃阈值——云杉死亡率一旦越过 35%,林下腐殖质分解速率跳水,氮循环熄火,整张食物网的级联衰退就此点火。这已经不是预报,而是给生态系统做压力测试。
⚠️ 常见坑:把数字孪生当缩水版现实看。孪生体的价值恰恰押在物理真实性上——虚拟森林里每棵树都在解水分传输方程,每头鹿都在跑强化学习。模型若只剩统计拟合、丢了过程机制,输出的"崩溃阈值"就是自欺欺人。
💡 关键直觉:跨物种单细胞比对显示,鸟类虽无新皮层,却演化出功能对等的脑区,且灵长类特有神经元的标志基因在鸟类基因组里留着同源抑制元件——数字工具正在拆掉"自然"与"模型"的二元对垒:模型成了承载物理真实性的第二自然,真实世界成了持续校准模型的终极实验场。
五、收束:参与下一次版本迭代
三条战线并起来看:互作交代系统逻辑,仿生破译物理原理,数字供给推演火力。当无菌小鼠交出免疫发育的微生物语法,当鲨鱼皮肋条写下湍流控制的方程,当虚拟森林里每棵树都在解微分方程——我们总算看清:动物不是摊开等人批注的文本,而是自然亲手撰写、且仍在持续更新的操作系统手册。我们的任务是学会读它,再带上足够的谦卑与手艺,去参与它的下一次版本迭代。
要点速记
- 要点一:微生物组是宿主的操作系统——无菌小鼠免疫球蛋白不足野生型 30%,窗口期定植即可重建;
- 要点二:考拉靠盲肠 P450 基因簇菌化解桉叶毒素,食性适应等于外挂代谢模块;
- 要点三:壁虎刚毛凭范德华力的集体效应,各向异性刚度与剪切剥离是干粘附范式的核心;
- 要点四:鲨鱼皮盾鳞靠相位抵消拆解湍流猝发,抗污涂层减附着 85% 且不伤性命;
- 要点五:多模态识别把专家的隐性知识结构化,热带相似种准确率 92.7%;
- 要点六:动态分布模型与虚拟森林把预测抬升为压力测试——云杉死亡率 35% 即级联崩溃的闸门。
至此六章闭环:由"凭什么算动物"到"如何参与演化",动物种类的认知史与生命史在此交汇。真正的保护,从来不是把标本留在展柜,而是护住那条仍在书写的演化长卷本身。
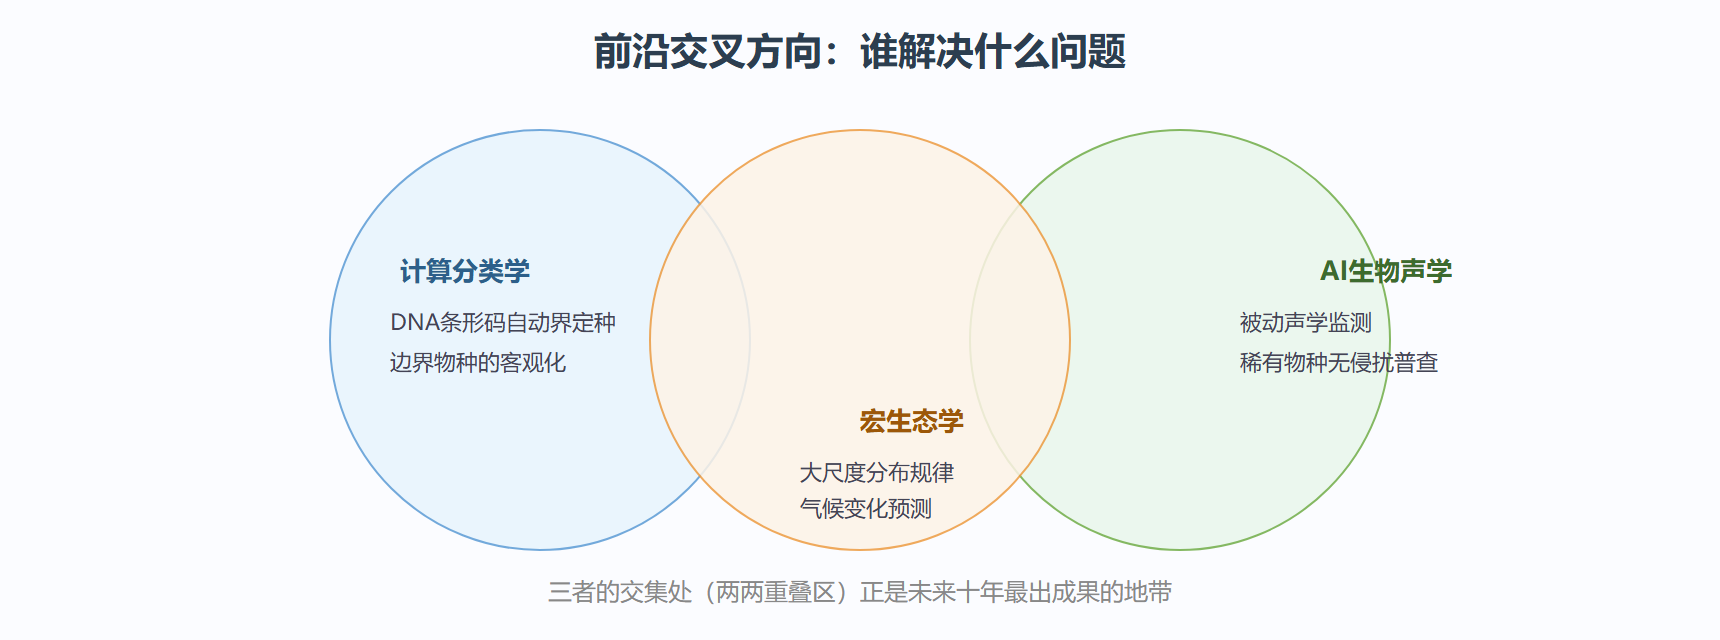
交叉领域地图
图:三个前沿交叉方向的分工
前沿算例:微生物组效应量与数字孪生标定
三个前沿方向各自的核心主张都能落到一个小算例。先看微生物组操作系统的效应量。
# 全虫转录组中可归因于微生物组的表达比例(以按蚊 Anopheles 为例) total_modules = 1200 # 宿主转录模块 wolbachia_linked = 84 # 沃尔巴克氏体存在时显著位移的模块 print(f"微生物可调制的宿主表达模块占比: {wolbachia_linked/total_modules:.1%}") # 结合沃尔巴克氏体对登革病毒载量的抑制(实验种群病毒 RNA 下降可达 70-90%), # "微生物组=可重编程的器官"这一提法在效应量上站得住: # Wolbachia 现场随机化试验(印尼日惹等)显示埃及伊蚊登革传播力下降约 77%。 reduction = 0.77 for coverage in (0.5, 0.8, 0.95): r_eff = (1 - coverage*reduction) print(f"释放覆盖 {coverage:.0%} -> 有效传播数乘子 {r_eff:.2f}")
数字孪生一侧的标定基准如下。
孪生系统,状态变量数,时间步长,关键标定数据,已验证的预测 哥斯达黎加La Selva森林碳孪生,约10^4(公顷x碳库),1天,20年样地实测,年NPP误差<12% 大堡礁珊瑚孪生,约10^5(500 m格x覆盖度),1周,25年潜水样带,白化年份命中4/5 北海渔业最小模型,12(种群x年龄组),1年,百年上岸统计,MSY评估区间正负20% 迁徙网络孪生(斑尾塍鹬),6x10^3(节点x时相),1天,光敏地理位置日志,体重-出发日拟合R方约0.7
# 孪生的核心检验:留一交叉验证的预测误差 obs = [0.92, 0.88, 1.05, 0.97, 1.10] # 归一化观测值 pred = [0.95, 0.84, 1.01, 0.99, 1.07] # 孪生预测值 mae = sum(abs(o-p) for o, p in zip(obs, pred))/len(obs) print(f"平均绝对误差 MAE = {mae:.3f} ({mae:.1%})") # 生态孪生可接受的 MAE 通常 <15%:超过它,"what-if"推演便退化为演示动画。 # 斑尾塍鹬案例的关键产出:模拟显示黄海停歇地生境再失 30% 将使 # 阿拉斯加繁殖种群年增长率下降约 5 个百分点——直接写入迁飞区倡议。
三个方向合用一杆秤:凡是主张"可操作""可预测"的前沿,都必须交出效应量或标定误差;交不出的,仍属于叙事。