1.2 认知史四幕:从列文虎克到三域系统
1.2 认知史四幕:从列文虎克到三域系统
本节摘要:人类看清微生物的历史不是匀速的知识积累,而是四次跳跃,每一次都由一件新工具撬动——单式显微镜让人看见,固体培养基让人分离,电子显微镜让人看清结构,序列测定让人看清亲缘。本节把三百年切成四幕,重点是每幕里"工具—发现—观念"的因果链,这是理解第 3、4 章技术谱系的历史底稿。
上一节划定了范畴,这一节回答范畴是怎么被撑开的。把历史当工具史来读,有个直接的好处:你手里每件实验器材,都对应历史上一次认知跃迁的起点。知道它当年撬开了什么,才知道今天该拿它去撬什么。
第一幕:看见(17 世纪中叶到 19 世纪中叶)
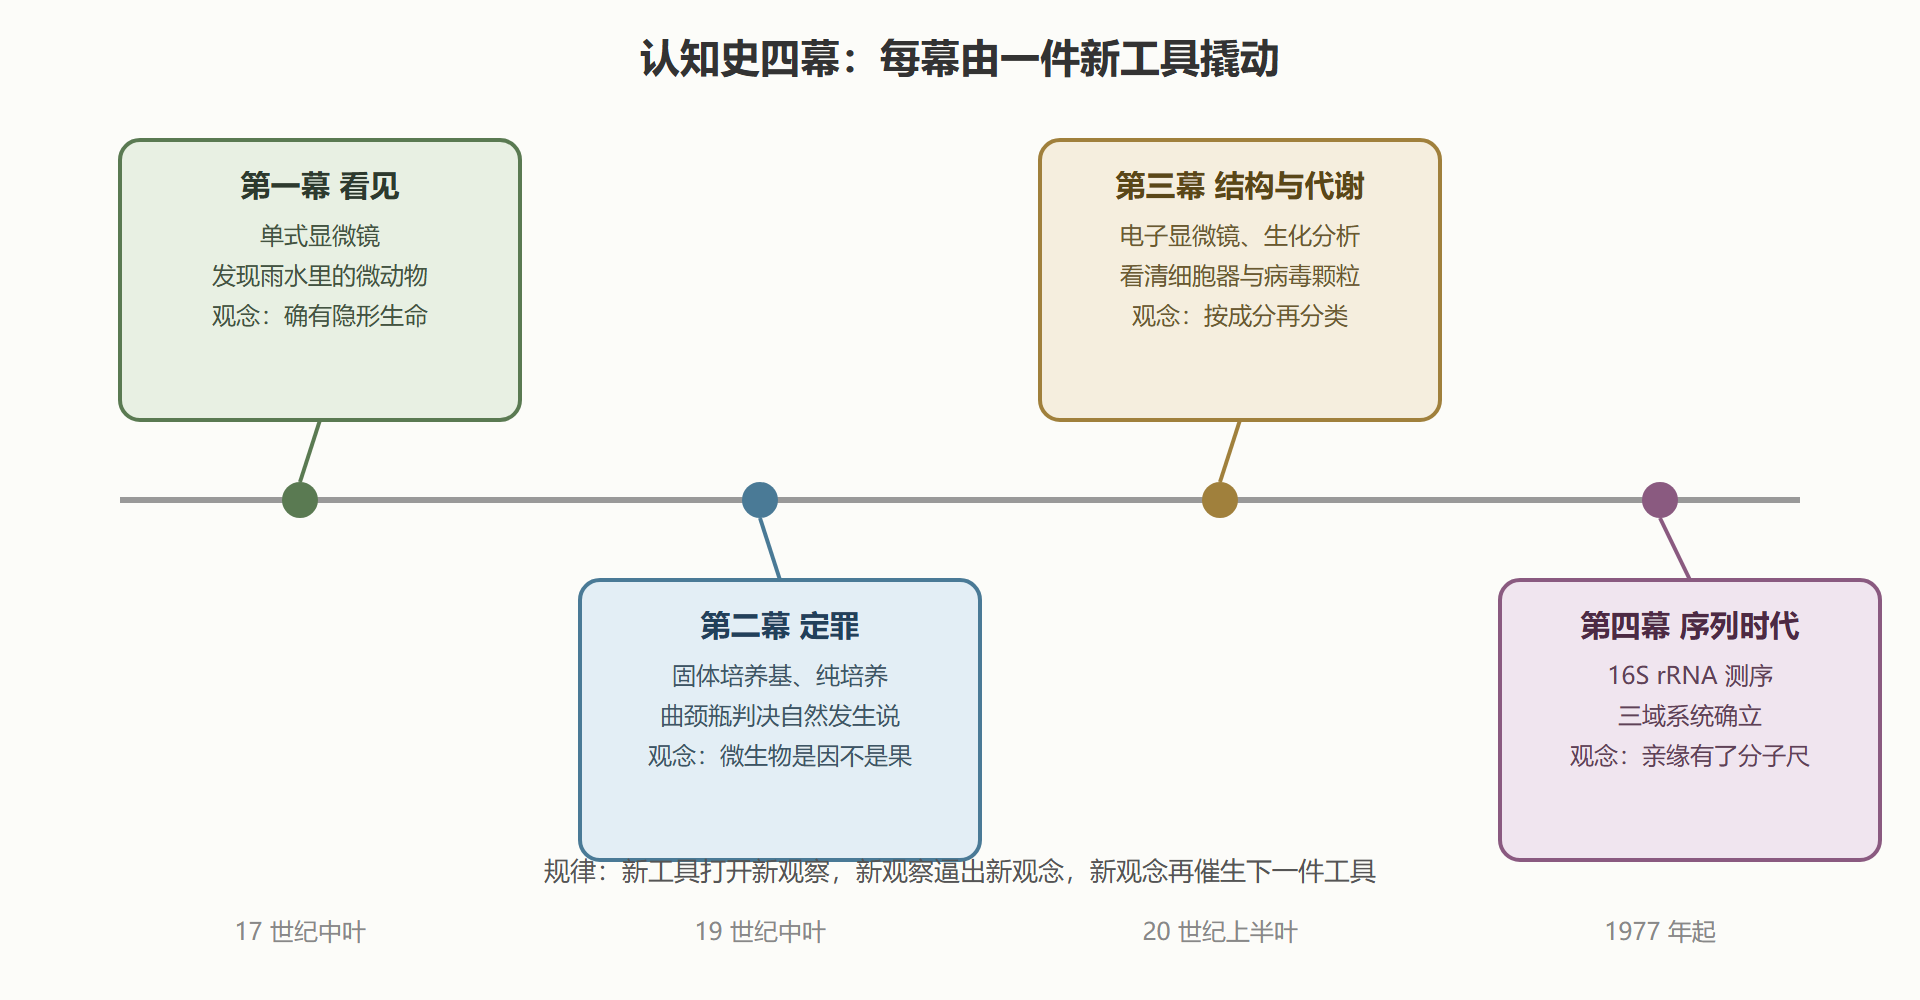
背景:1665 年胡克用复式显微镜看到软木里的"小室",给细胞起了名字;十年后,荷兰布商列文虎克用自磨的单式显微镜——放大倍数不过两三百,但磨片工艺登峰造极——在雨水、牙垢、肠道里看到游动的"小动物"。他在给伦敦皇家学会的信里反复强调观察条件:雨水在缸里放了几天、牙垢取自哪个没刷牙的人。这份较真,是微生物观察的第一份方法学记录。
结果:皇家学会起初不信,派人和牧师核对了信里的描述才予以发表。此后近两百年,"微动物学"基本停在"看见并画下来"的层面。
解读:为什么停滞这么久?工具到顶了,下一件工具没出现。列文虎克至死保守磨镜秘方,单式显微镜之后又没有立刻出现更好的观察手段;更关键的是,当时没有人能把"看见的东西"和"致病、腐败"这些现象连起来——看见只是序章。
第二幕:定罪(19 世纪中叶到 20 世纪初)
这一幕的主角从工具换成了方法设计。自然发生说认为腐肉生蛆、肉汤自发生虫,微生物是腐败的结果而非原因。巴斯德用曲颈瓶给出判决:瓶口弯管让空气进入而微粒沉降,肉汤长期不腐;把瓶颈打断,几天就浑。同一批肉汤,只动瓶颈的几何形状,命运截然不同——变量控制的思想第一次用在微生物问题上。
科赫走的是另一条路:他要证明炭疽病由杆菌引起,并且要从病体里把凶手抓出来验明正身。为此他发展出三件套——固体培养基(先用土豆片后用琼脂)、纯培养技术、以及后来以他命名的科赫法则。琼脂这个从海藻里提取的凝固剂,是关键的小道具:它 40 摄氏度左右才凝固,倒平板时不怕烫死菌,透明又不怕菌"吃"掉,一举解决了液体培养里菌种混杂的老大难。
科赫法则的操作版:
一、从患病个体中能恒定分离到同一微生物;
二、该微生物能在体外获得纯培养;
三、纯培养接种健康个体能复现相同疾病;
四、从新患病个体再次分离到同一微生物。
这套逻辑直到今天仍是病原鉴定的黄金框架——尽管后面会讲到它对付不了不可培养的病原。
第三幕:结构与代谢(20 世纪上半叶到 70 年代)
光学显微镜到头了:可见光波长限死了分辨率。电子显微镜把波长缩到皮米量级,细菌的鞭毛、荚膜、细胞壁分层第一次被看清,病毒——这批光学时代的"过滤性因子"——终于露出真身。与此同时,生化分析成了新的分类工具:革兰氏染色反应、DNA 碱基组成测定、代谢途径比较,分类学从"看长相"迈向"查成分"。
这一幕埋下了一个大问题的种子:按成分和代谢归类,归出来的类群和按长相归的经常对不上。到底该信谁?答案要等第四幕的序列数据来揭。
第四幕:序列时代(1977 年至今)
卡尔·乌斯团队盯上了一个看似不起眼的分子:16S 核糖体 RNA。它有三大优点——所有细胞生命都有它(普适)、功能太要紧所以变得很慢(保守)、又留着足够的可变区供区分(分辨)。把不同生物的 16S 序列排在一起比相似度,亲缘关系的深浅第一次有了分子尺。
结果出乎所有人意料:产甲烷的"细菌"根本不在细菌谱系里,它们与真核生物的亲缘反而更近。1977 年论文发表,1979 年之后学界逐步接受生命之树分成细菌、古菌、真核三域。原来的五界系统被证明是把一根树枝误当成了整棵树。
1990 年代起测序加速,2010 年代宏基因组普及,第四幕仍在上演:大量从未被培养的谱系只以序列形式存在,分类学从"先培养后定名"转向"先见序列后寻活体"——这个转向给命名法规出的难题,1.4 节再谈。
图 1 四幕时间线与工具链
四幕之间的因果怎么记
死记年份没有意义,记三组因果就够。第一组:琼脂平板之于科赫,等于望远镜之于伽利略——不是看得更清楚,而是把"混在一起"变成"分得开来",没有纯培养就没有科赫法则。第二组:电镜之于病毒,是把"过滤性因子"这种负向证据(过筛筛不过)翻转为正向结构证据,病毒学从此立户。第三组:16S 序列之于三域,是把"亲缘"从主观判断变成可计算的数值——这也是第 4 章一切分子鉴定方法的共同祖先。
还有一个容易被忽略的元规律:四幕的间隔越来越短。第一幕到第二幕隔了近两百年,第二幕到第三幕约五十年,第三幕到第四幕不到四十年。工具迭代的加速度,直接兑换成了认知迭代的加速度——这也是为什么本册后半部(宏基因组、基因组种)讲的都是近二十年的事。
一张对照表拎清四幕
把四幕的骨架压进一张表,复习与记忆都用得上:
| 幕次 | 年代 | 关键工具 | 撬开的认知 | 卡住下一步的瓶颈 |
|---|---|---|---|---|
| 一 看见 | 17 世纪中叶起 | 单式显微镜 | 隐形生命存在 | 看得见、抓不住、分不开 |
| 二 定罪 | 19 世纪中叶起 | 固体培养基、纯培养 | 微生物是腐败与病因 | 光学分辨率到顶,结构看不清 |
| 三 结构与代谢 | 20 世纪上半叶起 | 电子显微镜、生化分析 | 成分可以当分类依据 | 形态与成分打架,亲缘无客观尺 |
| 四 序列时代 | 1977 年起 | 16S rRNA 测序 | 亲缘可计算,三域立 | 大量类群不可培养,只能拿到序列 |
最后一列值得单独看一眼:每一幕的终点瓶颈,恰好是下一幕的起点问题。历史在这里表现得很像接力赛——交接棒掉没掉,决定后面全程的节奏。而第四幕交接出来的棒(不可培养类群的安顿问题),今天还攥在命名法规和宏基因组方法手里,第 4 章会看到接力的现状。
另一条暗线也藏在这张表里:工具的"性格"在变。前两幕的工具是物理与化学的(玻璃、琼脂),第三幕混入了分析化学,第四幕起工具彻底信息化。工具越抽象,对操作者的要求越从"手稳"转向"会问对问题"——这也解释了为什么本册第 4 章之后的重点从操作流程慢慢偏向判读纪律。
用四幕框架还能反过来读新闻:看到"某环境发现了奇怪的新微生物",先判断它属于哪一幕的工具产物——是显微镜下的形态怪客,还是测序数据里的序列幽灵。产自不同幕的发现,验证路径完全不同:前者要养出来看,后者面临 4.4 的投影拷问。三百年前的工具分层,今天仍在给每条新闻定位。
三百年里变的是工具,不变的是那条因果链:工具、发现、观念,一环扣一环,缺一环就断一环。记住这条链,你就有了预测力——下一幕会由什么撬开?答案多半已在实验室里:单细胞层面的代谢检测、长读长的直接测序,都在把"看见"往更深处推。历史的读法,最终是为了让你站在下一幕的门口时认得出它。
本节要点回顾
- 四幕框架:看见、定罪、结构与代谢、序列时代,每幕由一件新工具撬动;
- 曲颈瓶实验的精髓不是瓶子,是变量控制——只动瓶颈几何,结果分道扬镳;
- 琼脂平板是纯培养的前提,纯培养是科赫法则的前提,工具链缺一环法则就立不住;
- 科赫法则四条是病原鉴定的黄金框架,但对不可培养病原天然失灵;
- 16S rRNA 三大优点:普适、保守、留有可变区分辨度,是分子亲缘尺的起点;
- 间隔在缩短:工具迭代加速度兑换成认知迭代加速度,解释了为何前沿内容如此之新。