1.3 「种」的边界之争:微生物分类学的百年悬案
1.3 「种」的边界之争:微生物分类学的百年悬案
本节摘要:「种」是分类学的地基单位,但微生物的种至今没有公认定义。本节把四种主流物种概念(表型种、生物学种、系统发育种、基因组种)逐一过堂,用大肠杆菌与志贺氏菌这桩公案说明为什么生物学种在微生物界全面失守,并解释当前学界"用阈值暂时压住争论"的现实策略。这一节是第 4 章 ANI、dDDH 标准的思想前传。
在整册的工作链上,本节位置很微妙:它不教你任何操作,却决定你操作到"鉴定收尾"那一刻敢不敢写"种"这个字。第 4 章会给出具体阈值,而本节回答的是那个更重要的问题——阈值背后的概念之争凭什么值得被一条数字线暂时终结。
为什么这问题吵了一百年
动植物那边,物种定义基本够用:同一物种的成员能交配繁殖,生下的后代也有生育能力。这套"生殖隔离"标准(生物学种概念)干净利落,1942 年经迈尔系统阐述后成为教科书定论。
麻烦在于,这套标准的核心前提——有性生殖——在微生物界基本缺席。大多数细菌靠二分裂增殖,两个个体之间不发生常规意义上的"交配";基因确实会交换,但走的是转化、转导、接合这些非常规通道,而且频率低、范围广、不挑对象。第 5 章会讲到的水平基因转移,让"基因在种间流动"成了常态而非例外。生殖隔离这道墙,微生物压根没砌过。
墙没了,边界就得重新找。于是各家提出了替代方案,每一种都抓住了真实的东西,也各自留了死角。
四种物种概念的过堂记录
| 概念 | 判据 | 优点 | 死角 |
|---|---|---|---|
| 表型种 | 形态、染色、代谢等性状相似 | 直观,不依赖分子数据 | 同貌者众,性状会随环境变 |
| 生物学种 | 能杂交且后代可育 | 与演化机制挂钩 | 微生物基本无有性生殖,整体失守 |
| 系统发育种 | 单系群:共同祖先的全部后代 | 演化含义明确 | 单系性依赖标记选择,标记不同结论就变 |
| 基因组种 | 全基因组相似度超阈值(如 ANI 约 95 至 96) | 可量化、可复现 | 阈值是约定不是定律,边界情形照旧为难 |
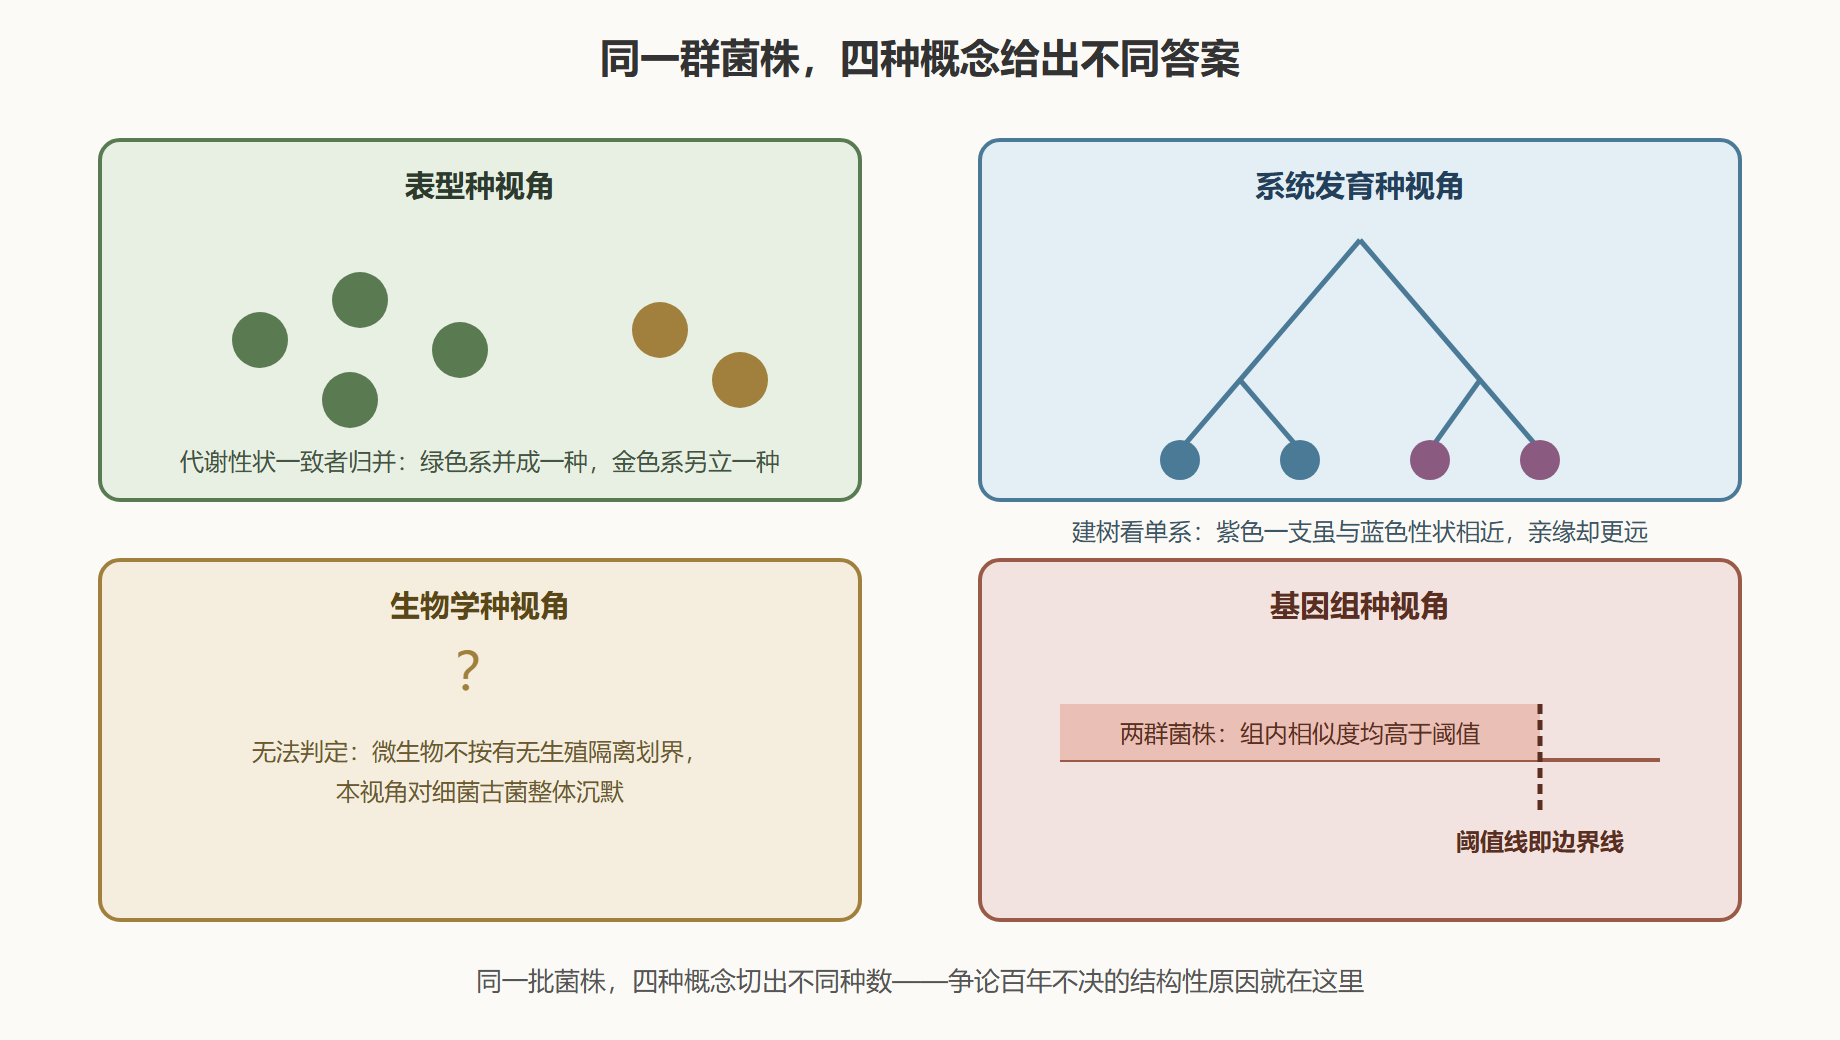
表型种是古典时代的产物,在 3.3 节你会亲手用它的判据(生化试验条)做鉴定;它的死穴在 20 世纪被看清——长相差不多的菌,亲缘可以天差地远。生物学种在微生物界的失守前面已说。系统发育种是 16S 时代的主流思路,第 4 章的建树操作就是它的工程实现。基因组种是当下国际原核生物命名共同体实际采用的折中:既然概念吵不完,先用一条可计算的线把工作接管起来。
图 1 四种概念在同一群菌株上的分歧
一桩公案:大肠杆菌与志贺氏菌
背景:教科书写得明白——大肠杆菌属与志贺氏菌属是两个不同的属,后者是痢疾的元凶。两个属、两套鉴定流程、两份临床报告模板。
操作:2000 年代起,多个团队把两属代表菌株的全基因组放在一起比对。核对了多项指标:核心基因组的序列相似度、基因组平均核苷酸一致性、代谢能力谱、噬菌体敏感性。
结果:指标几乎全线倒戈。大肠杆菌与志贺氏菌之间的基因组差异,比大肠杆菌不同菌株之间的差异还小;某些志贺氏菌菌株,与大肠杆菌的亲缘比另一些"正经"大肠杆菌菌株更近。换句话说,如果按基因组标准重新切分,志贺氏菌属会被并进大肠杆菌,两个属变成一个种。
解读:那为什么名字至今没并?因为分类命名不只是科学判断,还是社会契约。临床 microbiology 实验室几十年的流程、法规、流行病学报告口径都绑在"志贺氏菌"这个名字上,改名等于让全球检验科重写手册。分类学界的选择是:科学上承认这是一回事,命名上维持现状——名义分类与真实演化历史的这种错位,在微生物分类学里不是丑闻,是常态。
变式:同类的例子一抓一把。流感嗜血杆菌与某些巴氏杆菌的基因组纠缠、耶尔森氏菌属内部的分分合合。判断一个类群的"种"是否可靠,先问一句:这个边界是数据画出来的,还是历史沿用的?
当前学界的现实策略
吵不完怎么办?现实答案是"分层处理":概念上继续争,操作上先冻结。国际原核生物命名法规管名字的合法性,不裁决概念之争;基因组标准(第 4 章详述)提供一条可执行的操作线;而对那些只有序列、拿不到活菌的类群,另行启用"Candidatus"暂定名制度,等培养成功再正式立户。
这套"概念归概念、操作归操作"的双轨制,你会在第 4 章反复遇到。理解了本节,你就明白那不是敷衍——它是百年争论后达成的、心照不宣的停火协议。
边界带上的菌株怎么处理
四种概念吵归吵,日常鉴定却躲不开边界带上的具体菌株。三个常见处境与对应的处理纪律,先把纪律立在这里。
处境一:一株菌的 ANI 与两个已知种都约等于阈值。 这类"骑墙株"的正确报告措辞是"鉴定到属,种级无法确定",而不是掷硬币挑一个。边界带上的结论最怕写得斩钉截铁——阈值本来就是人为约定的,骑在约定线上还想拿到 certainty,逻辑上就不成立。
处境二:表型像 A 种,基因组指向 B 种。 这是两种概念打架的日常版本。处理原则是证据分级:基因组证据(尤其是全基因组层面)优先于单代表型,但要把冲突本身写进报告。表型异常有时恰是新发现的前兆——不少新种的第一份线索,就是"鉴定表上对不上号"的菌株。
处境三:一个类群里塞了几百个基因组,阈值切不切开。 说明该类群可能正在快速分化,或者标记选择不当。此时换标记、加数据、分组重算,都比硬给结论诚实。系统发育种概念的"死角"在实战里的表现就是:树建得不一样,答案就不一样。
处境四:命名要求与数据结论正面冲突。 数据明明指向"该合并",命名法规却只在有正式提案与同行审议时才改动——处于这种拉扯时,工作原则是"报告写数据、行动跟法规"。数据是你的判断,法规是社区契约,两者错位期内的每份报告都应同时呈现两边,让下游自己决定用哪套口径。
💡 关键直觉:阈值不是用来消除判断的,是用来标记"判断到此为止,需要更多证据"的位置。会用手电筒的人拿它照亮,不会用的拿它砸人——阈值同理。
三个处境走完,回望这场百年悬案,你会发现它的价值早已超出分类学本身:它示范了一门学科如何在概念未决的情况下照常运转——用操作约定隔离争论、用证据分级管理不确定、用制度安排容纳错位。这套"带着问题工作"的能力,比任何一次裁决都珍贵。你在后面章节学到的一切阈值、流程与分级报告,全都是这套能力的具体化身。
这三条纪律在第 4 章会换上具体的数字与工具再演一遍。概念层的分寸感先立住,操作层的纪律才不会读成死记硬背。
而这正是本节被放在全册第一章的深意:先见过"最讲道理也最讲不定"的问题,后面学到的每条硬标准,你都会自动追问它的适用域——这个追问习惯,是微生物学给学习者最好的出厂设置。
常见问答
问:既然种的边界这么不确定,亚种能不能当缓冲垫用?
答:实践中确实在用,但要认清它的代价。把骑墙株挂成「某种近缘亚种」,报告读起来体面,代价是把不确定性藏进了名目里——下游使用者常把亚种名当确定结论引用,错位就这么传下去。更诚实的替代是附鉴定距离的分级表述:鉴定到种、近似某亚种、差异注明。名目是给人省事的,证据距离才是给人判断用的,两者别混。
本节要点回顾
- 生物学种的生殖隔离判据在微生物界整体失守,因为微生物不靠有性生殖传宗接代;
- 四种概念各有判据与死角:表型直观但同貌者众,系统发育明确但依赖标记选择,基因组可量化但阈值是约定;
- 大肠杆菌与志贺氏菌公案说明基因组边界与命名现状可以长期错位,改名牵动的社会成本远超学术;
- 水平基因转移是边界模糊的演化根源,细节留给第 5 章;
- 双轨制是现行策略:命名法规管合法性,基因组阈值管操作,Candidatus 管未培养类群。