2.1 细菌域与古菌域:原核世界的两根主干
2.1 细菌域与古菌域:原核世界的两根主干
本节摘要:细菌与古菌共享"原核"这顶帽子——没有核膜、没有膜结合细胞器——但在膜脂化学、细胞壁成分、翻译机器细节上是两套彻底独立的方案。本节把这层"貌合神离"拆开讲透,并给出两域主要门的识别要点,这是第 3 章染色判读与第 4 章 16S 谱系定位共同的底图。
本节在知识地图上承接 1.2 的三域革命:1977 年乌斯把"细菌"劈成两半,本节就是参观劈开之后的两半各长什么样。你后面每一次显微观察、每一次序列比对,都在这两半里找位置。
靠什么劈开的:三件分子证据
把细菌和古菌分成两个域,不是看长相,是看三件硬证据。
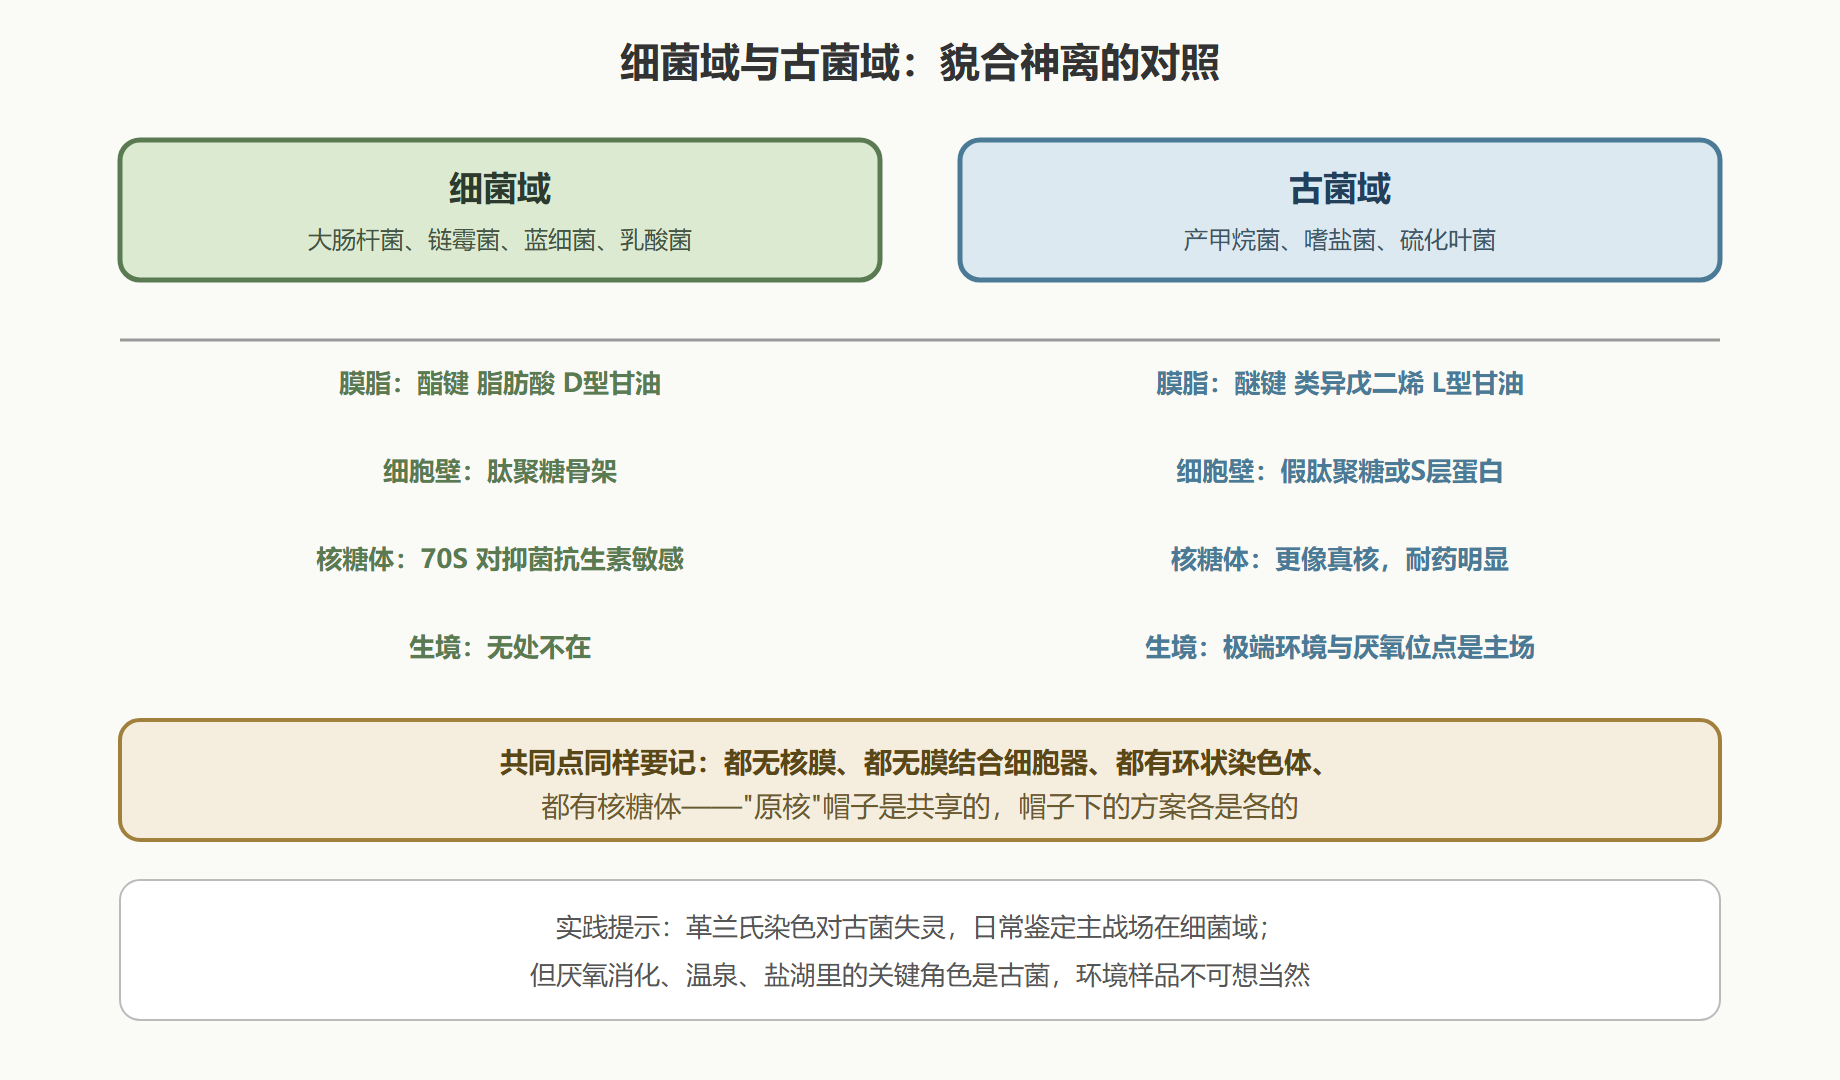
膜脂的化学手性。 细菌的膜脂是酯键连接的脂肪酸,甘油骨架立体构型为 D 型;古菌是醚键连接的类异戊二烯,甘油骨架为 L 型。这套差异藏在分子层面,却牵一发动全身:醚键耐高温耐水解,这就是为什么极端嗜热古菌在沸腾温泉里活得好好的——它们的"防水层"材料从根本上不同。
细胞壁的骨架成分。 细菌细胞壁的刚性骨架是肽聚糖,革兰氏染色反应(3.1 节实操)读的就是肽聚糖层的厚薄与位置。古菌没有肽聚糖,用的是假肽聚糖、S 层蛋白或其他多糖——所以革兰氏染色在古菌身上基本失去判别力,这也是日常鉴定很少碰古菌的原因之一:经典染色工具对它失灵。
翻译机器的关键位点。 核糖体 RNA 的序列比较(乌斯的起点)之外,还有个实用差异:细菌核糖体 70S 的多个亚基能被氯霉素、四环素类抗生素选择性打击,古菌的翻译机器反而更像真核生物,对这些药不敏感。这也是为什么产甲烷古菌不会被常规抑菌培养基"误伤"——配方设计时这是个可利用的开关。
图 1 两域硬区别对照
细菌域的主要门:认几根大枝就够
细菌域已描述的门上百个,日常鉴定高频出现的其实是少数几根大枝。下面这份速查表按"你在实验室最可能遇到谁"排序。
| 门 | 代表成员 | 快速识别线索 |
|---|---|---|
| 变形菌门 | 大肠杆菌、沙门氏菌、假单胞菌、弧菌 | 革兰氏阴性;16S 数据里占比常第一 |
| 厚壁菌门 | 葡萄球菌、链球菌、芽孢杆菌、梭菌 | 革兰氏阳性;不少能产芽孢 |
| 放线菌门 | 链霉菌、棒状杆菌、分枝杆菌 | 革兰氏阳性;菌落常呈干燥绒状,产抗生素大户 |
| 拟杆菌门 | 拟杆菌、卟啉单胞菌 | 革兰氏阴性厌氧杆菌,肠道与口腔常客 |
| 蓝细菌 | 鱼腥藻、聚球藻 | 产氧光合,水面"水华"主角 |
| 螺旋体 | 梅毒螺旋体、钩端螺旋体 | 形态特殊呈螺旋,暗视野更好观察 |
记法上有个省力诀窍:先记"革兰氏阳性还是阴性",再记"杆菌还是球菌",两个维度一交叉,候选范围立刻缩到几个门——这正是 3.1 节染色实操之后你真正要做的事。
古菌域:三种生活方式画像
古菌日常少见,但生态位极其关键。给三大生活方式各画一张像。
产甲烷菌:严格厌氧,以氢气加二氧化碳或乙酸为料产甲烷。反刍动物瘤胃、水稻田、沼气池、人体肠道都有它们的份额。奶牛打的嗝、沼气池的火,背后都是这一族。
极端嗜盐菌:盐湖、晒盐场的主户,靠视黄醛类的紫膜蛋白直接利用光能(不是光合固碳,是光驱动泵)。嗜盐菌的培养基要加两成上下的盐——普通培养基对它们等于淡水刑罚。
嗜热与超嗜热古菌:硫化叶菌、热网菌这一族把生长上限顶到一百摄氏度以上。PCR 用的耐高温聚合酶的最初来源就在这一族——一件实验室常备工具,欠着古菌一笔账。
还有一支必须点名:阿斯加德古菌。它们因基因组里富集真核标志蛋白(肌动蛋白、泛素系统等)而震动学界,"真核生物从古菌内部起源"的假说主要证据就压在这支上。2.3 节讲真核时这条线还会回来。
两域之辨的三个实战推论
分子层面的区别听着遥远,落到实验台上却是三条天天用的推论。
推论一:检测方案要分域设计。 通用 16S 引物理论上两域通吃,实际配方常对古菌 coverage 不足。做环境样品(沉积物、厌氧消化液、口腔菌群)时,若只跑细菌引物就断言"样品里没有古菌",属于方法学上的睁眼说瞎话。正确做法是细菌、古菌引物各跑一遍,或改用全基因组手段。
推论二:培养条件本身就是选择压。 普通好氧培养基长出来的几乎必是细菌——不是古菌不存在,是条件把它们过滤掉了。想看古菌,就得给对条件:严格无氧加产甲烷底物,或者二成盐,或者八十摄氏度。换句话说,每份培养结果都只是"该条件下的答卷",不是样品的全貌——这层认知在 3.2 讲培养基设计时会变成具体配方逻辑。
推论三:药敏报告天然只覆盖细菌。 临床药敏试验建立在"药物打击细菌核糖体或细胞壁合成"的基础上,古菌这两处靶点都对不上。所以人类感染里至今几乎没有"古菌病原"的正式记录——既可能是真少,也可能是识别工具缺位。两类解释摆在一起,才算诚实的答案。
三条推论共享一个底层提醒:工具自带视角。你用什么工具,就只看得见工具看得见的东西。这一课不只适用于两域之辨,第 4 章讨论 16S 盲区时它还会原样出现。
推论四(补一条分子时代的):引物与探针要按域校准。 环境样品跑定量或原位检测时,探针结合区的错配会让古菌信号系统性偏低,做出的丰度结论差出倍数级。凡是报告"两域比例"的数据,先查方法学里引物对两域的覆盖声明——没写这行的方法学描述,其比例数据默认打折。这条推论到了 4.4 会升级成一般原则:注释与定量结论永远绑着方法学的出身证明。
一道综合判断题
拿一道典型场景收束本节:厌氧消化罐产气量骤降,镜检看到大量规则球菌成对排列,革兰氏染色不定,常规好氧平板无菌落生长。三步判断:染色不定加无肽聚糖反应,先考虑古菌;成对球菌形态符合产甲烷球菌类的常见画像;好氧平板不长与严格厌氧身份吻合。综合起来,第一嫌疑人是产甲烷古菌活性受抑——下一步该查的是挥发酸积累与微量元素缺乏,而不是换抗生素思维。这道题没有标准答案,但"三步串起来走"的判断结构,正是本节想装进你脑子里的东西。
收束全节前,把两域之辨放回更大的图景里看一眼。三域系统的震撼不在于"多出一个域",而在于它推翻了"低等—高等"的阶梯想象:细菌与古菌与真核,是三条各自演化了三十多亿年的平行线,没有谁比谁"更高级"。日常语境里"低等生物"这种说法,在这张图景下是没有意义的——每一条现存的谱系,都是一场同样漫长的生存竞赛的胜出者。带着这份敬意再看本节的对照表,那不是"简单与复杂的分野",而是两条同等深度的技术路线的分歧清单。
下一节我们走进"没有细胞的寄生者"——病毒,把谱系地图上最特殊的一块补齐。
常见问答
问:支原体没有细胞壁,革兰氏染色对它怎么判?
答:判不了,也不该判。支原体属于细菌域的柔膜菌门,天然无壁,革兰氏反应在它身上从一开始就不适用——不是染色失败,是判据的前提(肽聚糖层)压根不存在。实验室遇到「染色不定、平板上呈油煎蛋状菌落」的组合,应改走 DNA 染色加血清学或分子路线。这再次印证本节主线:每类染色判读都绑定一类细胞结构,结构缺席,判读就该换轨。
问:古菌到底有没有致病记录?
答:几乎没有确证的。最接近的是牙周某些产甲烷古菌与龈下炎症的相关性报道,但「相关」与「致病」之间隔着科赫法则的完整验证,至今没有走完。对从业者的实际含义是:临床常规鉴定流程不设古菌通道,环境或工业场景里遇到「古菌嫌疑」时,要主动声明方法学盲区,而不是默认「没有检出就是没有」。
本节要点回顾
- 三件硬证据:膜脂键型与手性、细胞壁骨架成分、翻译机器药敏差异;
- 革兰氏染色的本质是读肽聚糖层,所以对古菌天然失灵;
- 细菌域高频六门:变形菌、厚壁菌、放线菌、拟杆菌、蓝细菌、螺旋体,先用染色与形态缩围;
- 古菌三大生活方式:产甲烷、嗜盐、超嗜热,各对应一类特殊培养条件;
- 阿斯加德古菌是真核起源假说的关键证人,真核起源线在 2.3 节接续。