2.2 病毒与亚病毒因子:没有细胞的寄生者
2.2 病毒与亚病毒因子:没有细胞的寄生者
本节摘要:病毒是一套被衣壳包裹的遗传信息,自己不代谢、不分裂,复制全靠劫持宿主细胞。本节讲清病毒区别于细胞生物的结构底线,梳理按遗传物质归类的主流思路(巴尔的摩分组的简化版),并把类病毒、卫星核酸、朊粒这些"更不像生命"的亚病毒因子逐个过堂。
本节承接 1.1 的边界讨论——病毒在范畴里的悬而未决,到这里要落到实处:不纠结它算不算生命,先看它由什么构成、怎么复制、怎么认出它。这套认识直接服务于 3.4 节的病原检测案例:那里的病毒分离与鉴定,用的正是本节的归类框架。
过滤性因子的真身
19 世纪末,烟草花叶病的病原通过了当时滤菌器的最小孔径——能拦住所有已知细菌的滤膜,拦不住它。这种"过滤性因子"长期只有负向证据:看不见、滤不掉、培养不出。直到 1935 年前后,烟草花叶病毒被结晶出来,人们才知道面对的是一种全新的实体:一串核酸,外面套一层蛋白衣壳,仅此而已。
这个结构底线值得背下来:病毒 = 核酸 + 衣壳,部分种类外面再加一层来自宿主膜的包膜。没有核糖体,没有膜结合代谢系统,没有分裂的能力。它的一切增殖都表现为"把零件带进宿主车间,借用流水线组装下一批自己"。
病毒远小于细菌:多数病毒直径在 20 到 300 纳米,而常见球菌约 1 微米上下。这也是光学油镜看不见病毒的原因——不是染色不够好,是尺度低于光学分辨率的一半还多。
按遗传物质归类:七组的简化记忆
病毒的遗传物质组合比细胞生物花哨得多:细胞生物清一色双链 DNA,病毒却把双链、单链、正负义、DNA、RNA 全排列玩了一遍。巴尔的摩按"遗传物质类型 + 复制路线"分成七组,日常工作中你至少要会认前六组的区别逻辑:
| 组 | 遗传物质 | 要点 | 代表 |
|---|---|---|---|
| 一 | 双链 DNA | 多在核内或核质中复制 | 腺病毒、疱疹病毒 |
| 二 | 单链正义 DNA | 少见,需先补成双链 | 细小病毒 |
| 三 | 双链 RNA | 分节段常见 | 呼肠孤病毒 |
| 四 | 单链正义 RNA | 基因组可直接当信使翻译 | 新冠病毒、脊髓灰质炎病毒 |
| 五 | 单链反义 RNA | 需自带 RNA 依赖的聚合酶 | 流感病毒、狂犬病毒 |
| 六 | 单链正义 RNA 经逆转录 | 需逆转录酶 | HIV |
| 七 | 双链 DNA 经逆转录 | 复制中过 RNA 中间体 | 乙肝病毒 |
快速判读口诀:拿到一份病毒的基因组描述,先问"是 DNA 还是 RNA",再问"单链还是双链",最后问"能不能直接当信使翻译"。三问下来组别基本锁定——这正是 3.4 节案例里检测方案选择的底层依据:RNA 病毒检测要上逆转录步骤,DNA 病毒不用。
复制的一条主线与一个分岔
不管哪一组,病毒的"一生"都能压成同一条流水线:吸附 → 侵入 → 脱壳 → 生物合成 → 装配 → 释放。六个步骤里,前三是"进门",后三是"开工出货"。
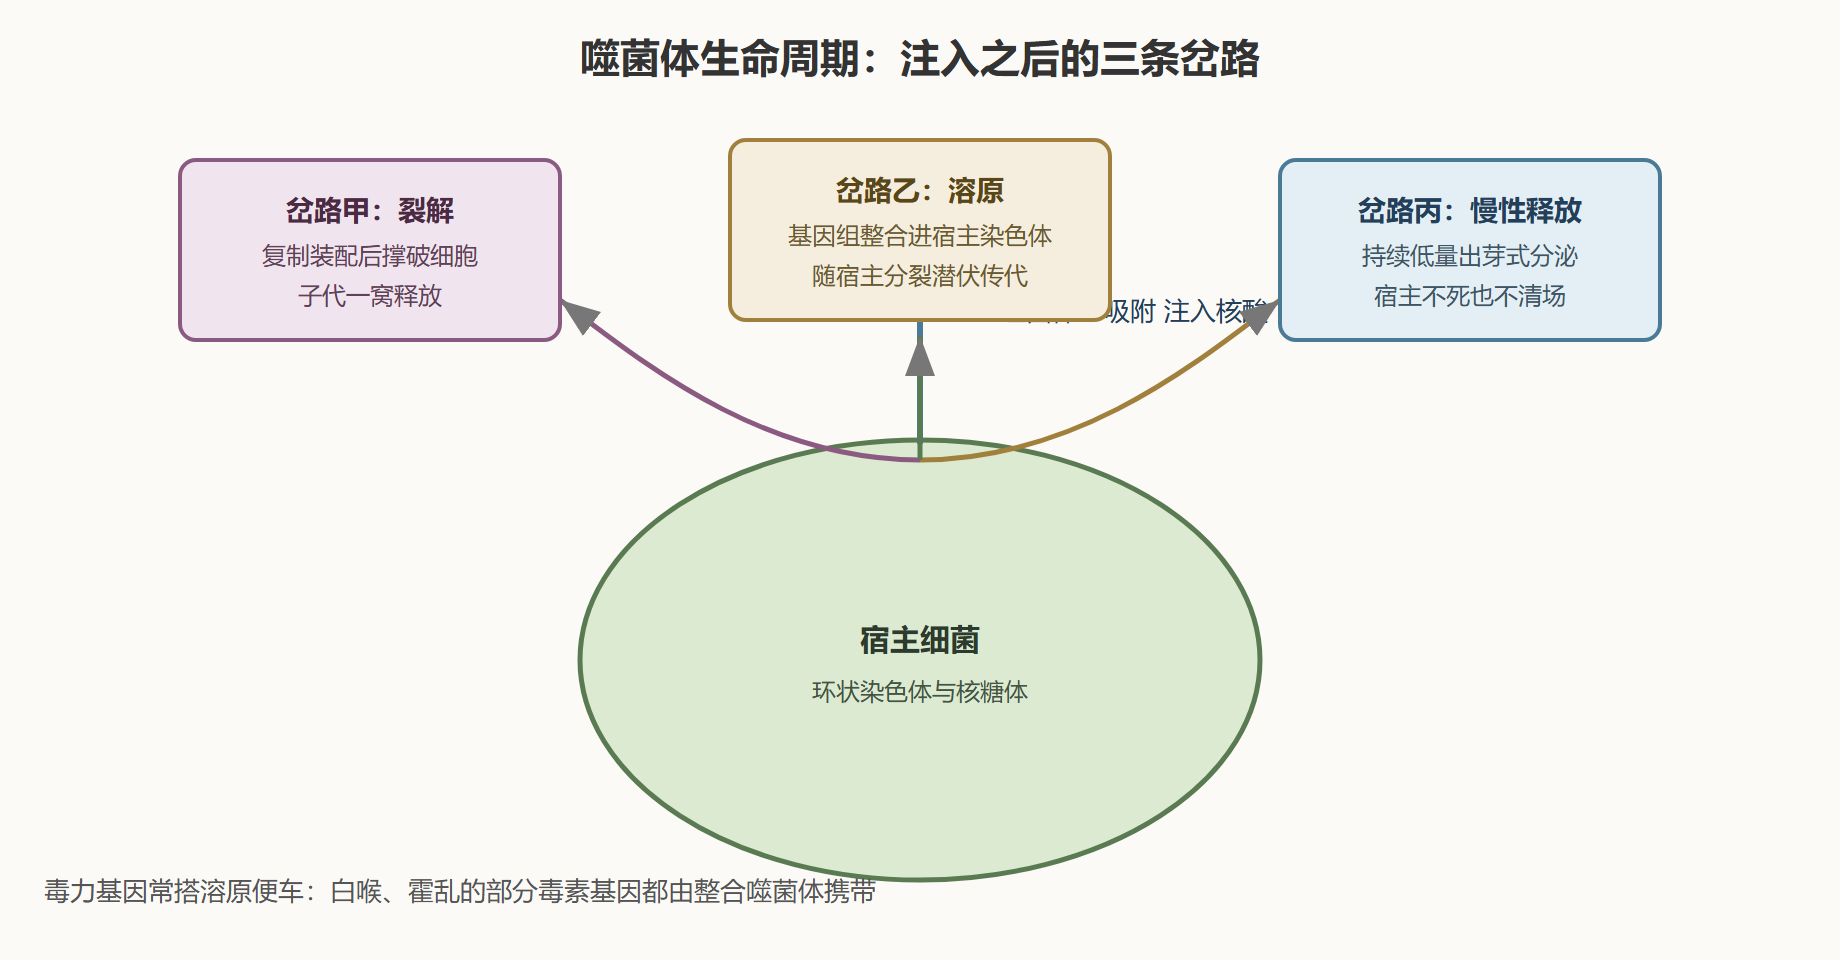
分岔点在释放方式。裂解性释放:子代病毒把细胞撑破,一窝出逃——噬菌体的烈性周期是范本。出芽释放:病毒从细胞膜上"挤"出去,顺手套一层膜当包膜,宿主细胞不至于立刻死亡——包膜病毒多走这条路。这条分岔有临床含义:走裂解路线的感染常呈急性爆发,走出芽路线的更擅长慢性潜伏。
溶原性是噬菌体独有的第三条路:噬菌体基因组整合进宿主染色体,随宿主分裂悄悄复制,条件合适再翻脸进入裂解周期。白喉杆菌产毒能力就来自整合进基因组的噬菌体基因——毒力因子借病毒搭车,这是 5.1 节水平基因转移主题的预告。
图 1 噬菌体生命周期三岔口
亚病毒因子过堂
类病毒:一段几百核苷酸的环状 RNA,裸奔,无衣壳。全部已知成员感染植物,靠宿主 RNA 聚合酶复制,某些种类能让马铃薯、柑橘减产三成以上。它是"遗传信息最小容器"的现实存在。
卫星核酸与卫星病毒:自己有核酸却缺关键功能,必须"搭伙"另一种辅助病毒才能复制。烟草坏死卫星病毒是经典案例:没有辅助病毒在场,它连一个后代都做不出来。
朊粒:只有蛋白质、没有核酸的传染因子,错误折叠的构象像多米诺骨牌一样把同款正常蛋白带偏。疯牛病与人的克雅氏病归它管。它对常规灭活手段(加热、核酸酶、紫外)高度顽固——蛋白不怕核酸酶,这是物理逻辑推出来的。
⚠️ 常见坑:把"病毒灭活"与"细菌灭菌"当成同一件事。核酸易被紫外与湿热破坏,蛋白构象却极难打开——朊粒污染的器械需要特殊的高浓度碱液流程,常规高压蒸汽对它并不保险。
检测现场的四个对与错
归类框架的价值在检测现场兑现。四个常见判断,两对两错,都来自真实工作汇报。
对:样本先问"该走 RNA 路线还是 DNA 路线"。 七组归类直接决定提取方案——RNA 病毒要逆转录,且 RNA 易降解,样本转运与保存的时限完全不同。呼吸道标本测流感(组五)与测腺病毒(组一),实验室接手的第一步就不一样。
错:把"没养出病毒"当"没有病毒"。 病毒是专性胞内寄生,常规细菌培养基上永远"无菌落"。细胞培养也要挑对敏感细胞系,宿主范围不对就白养。分子检测(核酸提取加扩增)如今是主流,道理就在这——不依赖活病毒增殖。
对:同一样本肠道里"验出多种病毒"未必是病。 肠道是病毒的天然聚集地,噬菌体与随食物通过的病毒都会出现。"检出"回答的是"在不在","致病"要另问"在的位置对不对、量对不对、宿主状态配不配"。3.4 节案例的判读纪律里,这条会再次出现。
错:用细菌的"计数"思路估病毒量。 细菌可以平板计数(菌落形成单位),病毒的传统计量是噬菌斑或半数组织培养感染剂量,两者数值含义不同、不可直接换算。拿细菌经验套病毒数字,是汇报里最常见的量纲事故。
对:噬菌体是环境样品的正常居民。 水体每毫升可含上百万病毒颗粒,绝大多数是噬菌体——它们调节细菌群落构成,是 5.3 互作网络里看不见的连线。宏基因组报告里"病毒序列占比高"若发生在环境样品,通常是生态学信息而非污染警报;同样的报告若发生在无菌体液里,含义才完全不同。同一组数字,场景决定读法。
四个判断的共同底层:病毒没有"独立生存"这个概念,一切检测与判读都要围绕"它在宿主系统里的行为"来设计。结构底线背得越牢,现场判断越不容易被细菌经验带偏。
本节最后给病毒世界标一个尺度感:它是已知数量最多的生物实体——全球水体中的病毒颗粒总数以十的三十次方计,是星星数目的十亿倍以上。每一秒钟,海洋里都有相当比例的细菌死于噬菌体裂解,裂解释放的有机物又养活另一批菌——病毒不是生态的旁观者,而是物质循环的强制泵。记住这个尺度,你再看"噬菌体疗法""病毒组学"这些前沿词,就不会觉得突兀:人类只是刚学会在这张巨网里找一个座位。
常见问答
问:噬菌体疗法复活了,它算抗生素的替代品吗?
答:定位更接近「窄谱精准武器」而非替代品。窄宿主谱是双刃剑:不伤共生菌是优点,但需要先精确鉴定病原再配型,起效流程比经验性用抗生素慢一拍;裂解产物还可能触发免疫反应,监管部门至今按个案审批。把它放回本节的结构底线看就明白了:病毒的一切行为都围绕宿主系统展开,疗法设计也必须顺着这条规律走,细菌经验的照搬在这里再次失效。
本节要点回顾
- 结构底线:病毒等于核酸加衣壳,包膜可选,无核糖体无代谢,增殖全靠宿主车间;
- 尺度:多数病毒 20 到 300 纳米,光学油镜看不见,这不是技术问题而是物理极限;
- 三问定组:DNA 还是 RNA、单链还是双链、能否直接当信使——巴尔的摩七组的核心逻辑;
- 复制六步一条线:吸附、侵入、脱壳、合成、装配、释放,释放方式决定感染节奏;
- 溶原性是水平基因转移的高速通道,毒力基因搭车是常见戏码;
- 亚病毒三级递减:类病毒只剩 RNA,卫星要搭伙,朊粒连核酸都不要。