5.1 种内多样性与水平基因转移
5.1 种内多样性与水平基因转移
本节摘要:同一物种的不同菌株,基因组差异可以大到三成——"种内"远不是克隆关系。本节讲清种内多样性的四个生成机制(突变、同源重组、转化、转导),重点拆解水平基因转移如何让基因谱与物种谱错位,并解释为什么这一节是全册"边界为什么模糊"的总答案。
本节在知识地图上是第 4 章所有"怪象"的机制层:16S 盲区、ANI 不确定带、数据库投影的规模,全部根植于此处讲的基因流动方式。位置上它是第 5 章的第一块基石,5.2 的物种形成、5.3 的功能互作都踩在它上面。
先看一个量级:种内能差多远
拿两株"同种"的大肠杆菌比较:参考模式菌株与某临床分离株,基因组大小可差出几十万碱基对——差的不是几个点突变,而是成段的基因岛(毒力因子、代谢通路、耐药盒)。极端一点:同种菌株间的全基因差异比例,可以赶上某些属间差异。
这类差异的主源不是突变累积。点突变速率虽高(细菌每代每碱基错误率约十的负十次方量级),但要靠它堆出成段差异需要漫长时间;真正的大手笔来自水平基因转移——基因不沿亲子链传递,直接在个体间横着搬。
四个生成机制
| 机制 | 载体 | 速率与规模 | 后果 |
|---|---|---|---|
| 点突变 | 复制错误、损伤修复 | 每代每碱基约十的负十次方 | 慢速底噪,微调表型 |
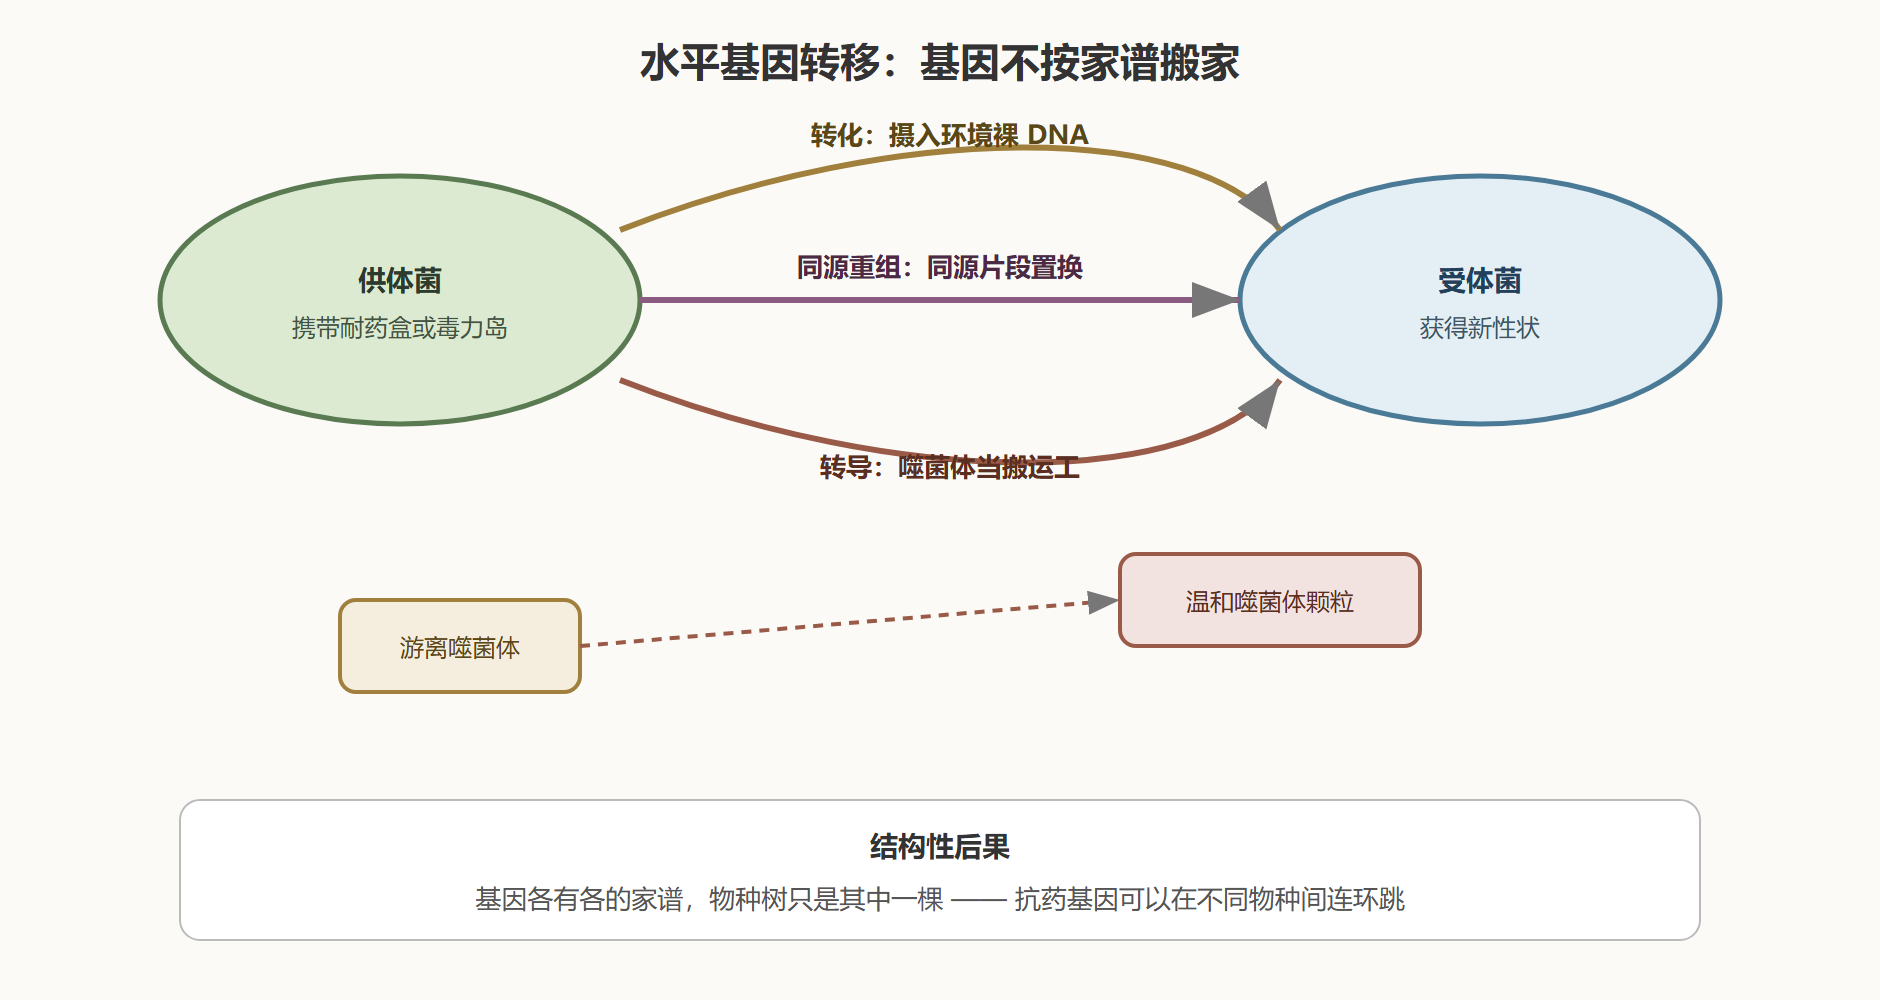
| 同源重组 | 转化摄入的同源片段 | 单次可置换千碱基级片段 | 修匀种内差异,拉紧种的边界 |
| 转化 | 环境裸 DNA 摄入 | 取决于感受态能力 | 直接吸收外源基因 |
| 转导 | 噬菌体搬运(溶原与普适性) | 毒力基因搭车高发 | 跨宿主搬运,跨种最快通道 |
四条机制不是并列关系,而是"一个慢变量加三个快变量":突变提供原始变异,三条水平转移通道决定变异的分配速度。种内多样性是它们叠加的稳态。
图 1 基因的三条横向通道
基因谱与物种谱的错位
垂直家谱(谁生了谁)与水平转移(谁传给了谁)叠加后出现一个深刻后果:一个基因组里的不同基因,可以有不同的演化历史。16S 这类"核心基因"走垂直路线,反映物种谱;质粒上的耐药盒、噬菌体上的毒力基因走水平路线,反映的是另一张网。生态学里有个形象的量:微生物的"泛基因组"理论把一个物种的全部基因分成核心基因组(几乎所有菌株都有)与非核心基因组(部分菌株才有)——非核心部分往往占基因组总量三成以上,那里正是水平转移的主战场。
这也解释了为什么"生命之树"在微生物部分更像"生命之网":树状演化(分化即分叉)只是故事的一半,网状交换是另一半。乌斯的三域系统靠核心基因立住,而 5.3 与 6.4 会看到:当人们试图给整个生物圈画一棵唯一正确的树时,网的成分会不断来找麻烦。
案例:耐药基因的一次跨属旅行
背景:某医院检验科连续三个月在两类不同病原里检出同一种β-内酰胺酶基因:先是肺炎克雷伯菌,后是鲍曼不动杆菌——两个属,亲缘不近。
操作:对两批阳性菌株分别做全基因组测序,定位该基因的所在位置与上下游结构;比对两侧序列的"迁徙轨迹"。
结果:在克雷伯菌里,基因坐在一个约 90 千碱基的耐药质粒上;在不动杆菌里,同一基因坐在结构几乎相同但宿主范围更广的质粒变体上。两侧质粒的转移元件同源——典型的"质粒跨属搬家,基因随车落户"。
解读:这是水平转移的临床成本实例:新药研发十年,耐药基因跨属传播可以只要几个月。它同时演示了 5.1 的方法学意义——追查耐药溯源时,只看物种谱(这两株菌是什么种)远远不够,必须追基因谱(这段基因坐什么车、从哪来)。
变式:毒力基因同样搭车(2.2 的白喉毒素)、代谢基因也搭车(某些菌株突然获得降解人工合成物的能力)。凡"整段功能突然出现"的现象,先想载体,再想物种。
哪些"差异"不算转移的证据
水平转移的解释力很强,强到容易被滥用——不是每段差异都要归因于横向搬家。三类容易被误判的情形,先立边界。
情形一:高度保守的核心基因差异。 看家基因(复制、转录、翻译机器)在种内的离散主要靠突变与同源重组慢慢磨,它们的谱系通常仍与物种谱一致——16S 与看家基因之所以能当分类标记,正因为它们"不爱搬家"。看到核心基因的树与非核心基因的树打架,才算抓到转移的实锤;核心基因内部的零星不一致,多半只是噪声。
情形二:G 加 C 含量的局部异常要复核。 经典判断法说"某片段的碱基组成与基因组背景明显不同,疑似外来户"。这个逻辑方向正确但证据不足——碱基组成受基因表达水平、密码子偏好等多因素影响。合格的判断要三证合一:组成异常、密码子用法异常、且与近缘种的对应区段缺失或置换,三样齐了再下转移结论。
情形三:同一种能力在不同菌里反复出现。 某代谢能力在五个属里都有,直觉说"肯定是转移来的"。也可能各自独立演化(趋同),也可能来自古老的共同祖先(各丢各的)。区分手段是给这些基因建树:转移来的基因树与物种树错位,趋同的则基因序列本身差异很大。树谱对不上的才是转移的铁证。
三条边界合起来是一门"举证纪律":转移是强解释,强解释要强证据。这门纪律在 6.2 的耐药溯源场景里直接决定报告的法律效力——张冠李戴的溯源结论,是要进院感会议纪要的。
一个练习:读泛基因组图
泛基因组分析的标准输出是一张堆积图:把某物种全部菌株的基因家族按"出现在多少菌株里"排序堆积。给你一张文字版,练一次判读。
某物种泛基因组构成(50 株取样) 核心基因组:2410 个基因家族(50 株全有) 非核心:共享型 890 个(2 至 49 株有) 菌株特异型:1150 个(仅单株有) 标注:特异型中 210 个注释为转座酶或噬菌体相关, 140 个为代谢酶,其余功能未知
判读三问。一问:非核心合计 2040 个家族,与核心的 2410 同量级——这个种的"身份"由什么决定?答案:由核心决定,非核心是每个菌株的"个人行李",这正是 4.3 的 ANI 比较要同时看覆盖率的基因组学根源。二问:特异型里转座酶与噬菌体基因占比最高,说明什么?说明新基因的进门通道主要是可移动元件——它们是基因组的"门卫记录"。三问:功能未知的近四成特异基因说明什么?说明该种的功能多样性还远没被清点完——所谓"模式菌株代表一个种"的传统假设,在泛基因组视角下是显著的低估。
练习做完再补一刀现实提醒:泛基因组的规模取决于取样——多测十株,特异型往往还在涨。所以文献里"泛基因组已闭合"之类的表述要看统计口径,闭合是"当前取样下新增放缓",不是"全部基因已清点"。把这条刻度带上,你读泛基因组论文的数字就不会被牵着走。
本节作为第 5 章的地基,最后把它的因果杠杆再拧紧一圈:水平基因转移改变了三个层面的游戏规则——个体层面,基因型不再稳定遗传,今天的性状明天可能被"快递"走;物种层面,边界成了动态平衡而非刻线;学科层面,一切以"基因组序列恒定"为前提的方法都要自检这个前提。往后读 5.2 的成种与 5.3 的网络,遇到任何"为什么这么麻烦",根源都会指回这一节的机制清单。
本节要点回顾
- 种内差异的量级可以达到基因组的两三成,主源是水平转移而非点突变;
- 一慢三快的机制结构:突变是慢底噪,转化、转导、同源重组是三条快通道;
- 泛基因组视角:核心基因走物种谱,非核心基因走水平网,后者常占三成以上;
- 基因谱与物种谱错位是"生命之网"的根源,也是 16S 与 ANI 各种怪象的机制总答案;
- 溯源必须追载体:耐药、毒力、新代谢能力的出现,先问基因坐的什么车。