5.2 物种形成模式与多样性分布
5.2 物种形成模式与多样性分布
本节摘要:微生物的物种形成不走动植物的剧本。本节讲两条微生物特色的成种路线——地理隔离式与生态位分化式,说明为什么"种的边界"在基因流动与生态选择的双重拉扯下必然模糊;再把镜头拉远到宏演化尺度,看多样性的分布规律:为什么土壤一克之内的物种数能超过所有已描述的动植物,以及那条著名的"稀疏主导"曲线。
本节承接 5.1 的机制,回答机制的时间后果:基因流动怎么慢慢把一"种"掰成两"种"、地球的微生物多样性在空间与谱系上怎么分布。读它也顺手结清第 4 章的账——ANI 连续谱不是测量误差,是成种过程的中间态。
两条成种路线
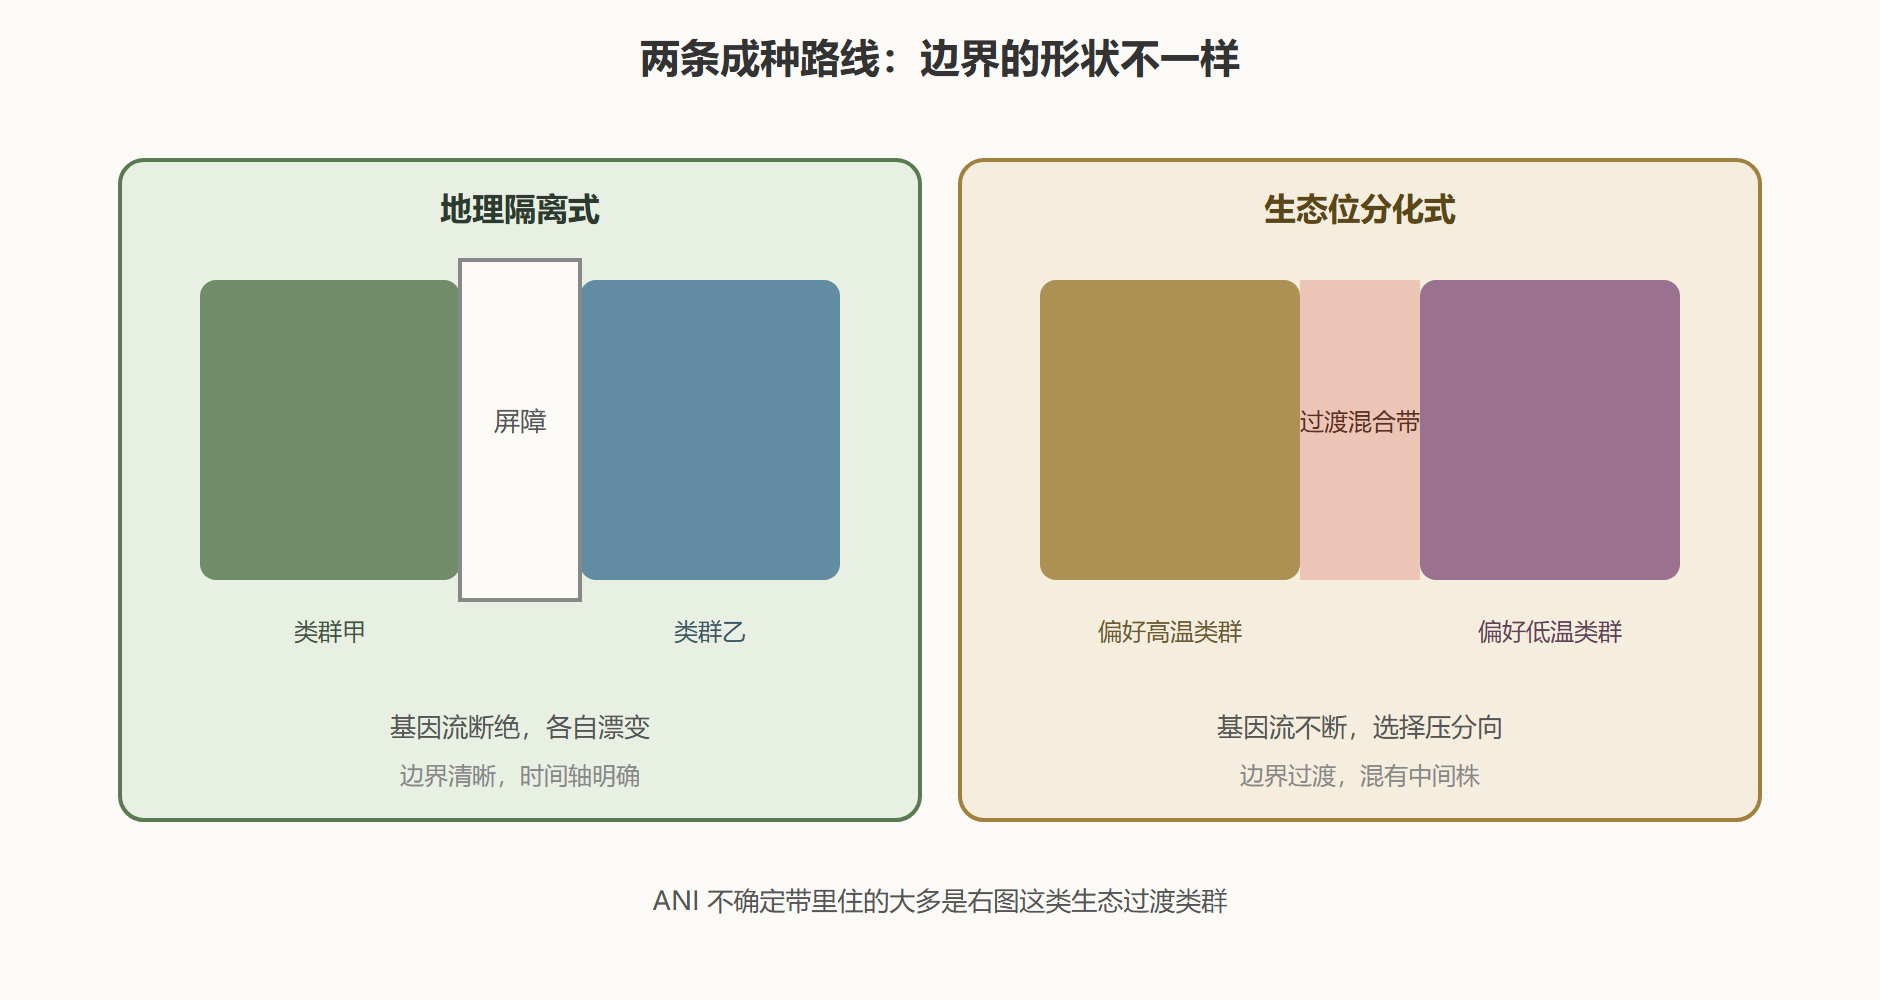
动植物成种的标准剧本是地理隔离:种群被山河隔开,各自积累突变,生殖隔离慢慢成形。微生物的对应版本存在——地理隔离式:不同水体、不同宿主肠段的菌株群被物理屏障分开,基因交流中断,各自漂变分化。深海热泉与浅海的同属古菌、不同地区人群肠道的同种菌株,都属此类。
但微生物体积小、扩散能力强,纯地理屏障对它们常常不够用。更主流的是生态位分化式:同一个水体里,偏好不同温度层、不同氧浓度、不同底物的菌株群,在基因交流照常发生的情况下被生态选择拉向不同方向。选择压像筛子,把不匹配的重组后代筛掉——即使边界两侧仍有基因流动,"混合后代在中段活不好"就足以维持两个类群。这就是"基因流未断、物种已成"的微生物特色成种。
两条路线对第 4 章的含义:地理式的分化有明确时间轴,边界相对清晰;生态式的分化可以与持续的基因流共存,边界天然过渡——ANI 不确定带住的正是这批类群。
图 1 两条路线的边界形态对比
宏演化尺度:多样性的分布规律
镜头拉远,微生物多样性在大尺度上呈三条规律。
规律一:稀疏主导。 任何环境样品测序,丰度排序后都是极少数类群占大头、极长尾的稀有种占多样性大头。这条"长尾"不是测序噪音:加深测序后尾上不断出现新类群,拟合外推给出的环境物种总量比清点到的多几个数量级。土壤正是长尾之王——一克土壤清点到的细菌种数上万,外推总量以百万计。
规律二:谱系不均衡。 少数门(变形菌、厚壁菌、放线菌、拟杆菌等)贡献了绝大多数已培养物种,而自然环境中大量门级谱系至今只有序列代表(2.1 的 DPANN、4.4 的未培养新门)。"已描述"与"实际存在"两本账的偏差,比动植物界大几个量级。
规律三:体积-丰度-多样性的三角制衡。 微观生物世界里,个体越小、丰度越高的类群,扩散越广、地理隔离越难成立,其物种形成越依赖生态分化。这条规律把两条成种路线与长尾现象串成一体:扩散强者靠生态位成种,故边界模糊;扩散弱者(如某些宿主专寄生菌)靠宿主地理成种,故边界相对清晰。
数据形态上看,这三条规律汇成同一条曲线——横轴物种按丰度排序、纵轴相对丰度,得到一条陡降后拖着长尾的曲线:
群落丰度结构的示意数据(相对丰度,百分数) 排序位 1 至 5 约 6.2 4.8 4.1 3.5 3.0 头部合计约两成 排序位 6 至 50 每种约 0.3 至 1.5 中段合计约三成 排序位 51 至以后 每种低于 0.1,长尾绵延 尾部合计约五成 读法:一半以上的多样性藏在尾部,任何只报告头部 物种的清单都严重低估了群落复杂度
⚠️ 常见坑:把"优势菌"当"群落代表"。头部类群丰度高但种数少,尾部才是多样性主体。生态功能上头部与尾部也分工不同——5.3 的功能群视角会给出更准确的组织方式。
分布规律的三条实务推论
规律如果不落地,读起来只是谈资。三条规律各推一条实务结论,都是做环境与宿主样品时天天要用的判断。
推论一(从稀疏主导):测序深度决定"发现率",不决定"多样性"。 加深测序,尾上会不断冒出新 ASV——这不是样品变了,是你看清了原本就在那里。设计实验时,"比较两组多样性高低"的问题,两组的测序深度必须拉平再抽平(rarefy 或用覆盖率标准化),否则深度差异会伪装成多样性差异。审稿意见里最常见的方法学质疑之一就是这条。
推论二(从谱系不均衡):不可培养是常态,不是失败。 一半以上的门级谱系至今没有活体代表,意味着任何培养为主的调查都只能清点"愿意上板的少数派"。这推论倒过来用就是机会:如果你分离到了一个"只有序列见过"的谱系的活体,那就是门级发现级别的贡献——4.4 命名账户里的 Candidatus 转正事件,每一笔都是这种稀缺品。
推论三(从三角制衡):采样设计要按"谱系的性格"分层。 对扩散强的自由生境类群,同一水体的不同微环境(温度层、氧层)是采样的关键变量;对宿主专寄生类群,宿主个体与地理才是关键变量。把自由生境的采样逻辑原样搬到宿主样品(或者反过来),得到的多样性结论系统性失真——这不是技术误差,是对象性格错配。
三条推论共享一句总纲:多样性的数字永远附着在方法与对象的匹配关系上。脱离匹配关系谈"某环境有多少种",就像脱离秤谈体重——数字看着具体,其实无锚。
时间尺度:成种要多久
本节反复谈"边界模糊",一个自然的追问是:从一个共同祖先到两个可分辨的种,微生物要跑多久?
答案的量级来自少数可观察的长期实验与历史事件回溯。实验室尺度:大肠杆菌长期演化实验数万代后,同一克隆系里已经长出稳定的多态"类群",代谢画像出现可遗传分化——但要凑齐"新种"的全部判据还远远不够。历史尺度:有研究用同步分化的宿主种群回溯共生菌的分化时间,估算微生物种级分化常需百万年量级——与许多动植物类群的时间尺度相近,出人意料地不快。
两个尺度合起来给出一幅有分寸的图景:微生物的"演化快"快在适应(新性状几天几周就能筛出来,耐药就是明证),而不是快在成种(谱系分家依旧以万年为单位)。把这两层"快"分开,很多流行说法就自动归位了——"细菌几个月就进化出耐药"说的是性状筛选,不是新物种诞生;"微生物多样性测不完"说的是长尾存量,不是新种爆发。概念的时间刻度对齐了,读新闻和读文献都不会被带偏。
最后给本节配一个"自造案例"练习:假设你在两个相邻但温度差五度的温泉池采样,测得两池各有一组优势 16S 谱系,跨池 ANI 集中在 96% 到 97.5%。按本节的框架走一遍判断:两池物理相邻但温度构成生态屏障,符合生态位分化式成种的起点场景;ANI 落在不确定带内,正是基因流未断、选择分向的中间态预期;结论的正确表述是"一组处于成种中间态的类群",而不是"两个新种"或"同种两群"。这道练习的判读结构,就是 4.3 不确定带的演化注脚——概念在两章之间跑了个来回,知识才算连成网。
温泉题做完,本节的三个身份也就齐了:它是 5.1 机制的时间出口(机制跑出物种)、4.3 连续谱的演化入口(连续谱就是中间态)、5.3 功能视角的空间前提(长尾逼出功能读法)。一章内容同时给三章当接口,这在全册里独一份——也正因为如此,本节的"懂"要以"能转述接口"为标准,而不只是记住两条成种路线的名字。
本节要点回顾
- 两条成种路线:地理隔离式边界清晰,生态位分化式可与基因流共存、边界过渡;
- 生态成种是微生物主流:选择压筛掉混合后代,"基因流未断、物种已成";
- ANI 不确定带的演化身份是生态过渡类群,连续谱是成种中间态而非测量误差;
- 三条宏演化规律:稀疏主导、谱系不均衡、体积-丰度-多样性三角制衡;
- 长尾藏着多样性的主体:只报优势菌的清单严重低估群落复杂度。