1.1 植物界的系统定位
1.1 植物界的系统定位
本节摘要:把植物界理解成"会光合作用的生物"是一种方便却错误的直觉。真实的植物界是一条由多条独立证据共同锁定的演化谱系。本节借助细胞构造、色素组成、胚胎发育历程与细胞壁生化组分这四道证据,为植物界画出边界,并逐一裁定绿藻、轮藻与红藻三大争议类群的归属。结论先行:与陆地植物血缘最近的现存类群是轮藻;红藻看似亲近,实为趋同演化的假象,如今已不在植物界之内。
学习目标
读完本节,请自查能否做到:
- 默写四道演化证据,并用它们分别把眼虫、红藻挡在植物界门外;
- 说明为何"共有衍征"在界定类群时远比外表相像可靠;
- 举出轮藻与陆地植物共享祖先分子装备的证据;
- 把植物登陆理解为既有预适应特征的总爆发,而非凭空出现的奇迹。
一、问题与直觉:一次古老的吞噬
不妨先做个思想实验。倘若把"能否进行光合作用"当作入界标准,那么硅藻、甲藻、隐藻、裸藻都将获得植物界的国籍——演化事实显然不是这样。反过来,列当科里那些叶绿体已经退化、全身依附寄主的植物,其植物身份却从未有人质疑。
要解开的死结深埋在约 16 亿年前。彼时,一个靠吞噬取食的古真核细胞吞下了一颗自由生活的蓝细菌,消化程序没有执行,代之以一场长期的代谢合伙:此前线粒体已经入主,这一次轮到光合引擎进驻真核细胞。这一内共生事件并未当场"创造"植物,却预先写下了此后一切边界判读的底层信息——叶绿体基因组的构成、被膜的层数、类囊体的排列,以及最要紧的色素配方。正是色素这组"光学指纹",构成了辨识植物血统的第一道关口。
然而指纹可以模仿,基因无法作假。真正能从无边藻海里把植物界识别出来的,是四条环环相扣、互为校验的实证链。它们并非平行的备选项,而是一套层层嵌套的演化锁扣。
💡 关键直觉:划定一个自然类群,问的不是"它具备什么",而是"哪个特征由其祖先最先获得、并一路传给了全部后代"。这个特征就是共有衍征。
二、核心原理:四重锚点
锚点一:细胞结构的刚性承诺
凡被公认的植物界成员,其细胞一律呈现典型的真核植物构造:初生壁以纤维素加固、原生质体中液泡发达、细胞核完备无缺。其中最具鉴定价值的,是那颗被两层膜包裹、携带环状 DNA 与 70S 核糖体、可自我复制的叶绿体。更深一层的要求是叶绿体与细胞核之间的双向指挥系统——叶绿体蛋白九成五以上由核基因编码,而叶绿体又以逆行信号反向调节核基因的开关。
眼虫提供了一个反例:叶绿体虽有,却被三层膜围裹,且与核基因组之间不存在深度整合,分类学上因此归入眼虫门。膜数在此绝非小事,它相当于记载内共生发生次数的"细胞学影像片"。
锚点二:光合色素的化学签名
从轮藻、苔藓一路到被子植物,核心植物类群的色素清单完全一致:叶绿素 a 搭配叶绿素 b,外加贝塔胡萝卜素、叶黄素与新黄质。这套组合把吸光峰定位于蓝紫光约 430 纳米和红光约 662 纳米处,正好压住陆地阳光中能量供给最充足的区段。红藻走的是另一条路——叶绿素 a 加藻胆蛋白,吸收带偏向绿光;褐藻则用叶绿素 c 顶替了叶绿素 b 的位置。
分子层面的证据同样明确:催化叶绿素 b 合成的关键酶对应基因 CAO,只在绿色植物这条支系上保守传承,其出现时间与陆地植物祖先的分化节点彼此呼应。于是色素组合成了一部用光谱书写的演化编年史。
锚点三:胚胎发生的发育契约
如果说细胞构造与色素谱是硬件,胚胎发育便相当于操作系统。植物界最根本的一项发育创新,在于确立"多细胞胚胎在母体配子体组织内被监护发育"的生殖方案:受精卵并不即刻散入环境,而是在颈卵器里开始分裂,经原胚、心形胚、鱼雷形胚等形态序列,最终装配出带有胚芽、胚轴、胚根与子叶的幼小孢子体。
反观多数绿藻,合子的发育既裸露又仓促;轮藻虽然配子囊结构复杂,合子却在厚壁休眠之后直接萌发,全程没有多细胞胚胎出场。可见"胚胎保护"四个字不是形态学描述,而是生殖策略由"广种薄收"转向"精育稳投"的一次范式切换——干燥陆地正是靠这块发育基石才被拿下。
锚点四:细胞壁成分的生化印章
植物初生壁的承重骨架,是纤维素微纤丝——无数条贝塔-1,4-葡聚糖链平行排布、靠氢键捆扎成缆的纳米级结构。填充其间的,是半乳糖醛酸含量丰富的果胶,以及扮演"分子夹板"、横向缝合微纤丝的木葡聚糖等半纤维素。这套"纤维素-果胶-半纤维素"三元配方,为陆地植物及其部分近缘绿藻所独有。
再看对照:真菌的壁以几丁质立骨,细菌的壁以肽聚糖为记,红藻的壁中则充满了琼脂与卡拉胶。成分差异不止是生化标签那么简单——植物细胞的定向生长,全靠木葡聚糖内转糖基酶对半纤维素网络的精确剪接与重组来推动,这套机制在其他真核生物里全无踪影。
表 四重锚点与排除类群对照
| 锚点 | 核心内容 | 被排除的类群 | 排除理由 |
|---|---|---|---|
| 细胞结构 | 双层膜叶绿体,核质深度整合 | 眼虫、隐藻 | 叶绿体为次生内共生来源,膜层数异常 |
| 光合色素 | 叶绿素 a 加 b,特有类胡萝卜素组合 | 红藻、褐藻 | 分别以藻胆蛋白、叶绿素 c 替代叶绿素 b |
| 胚胎发育 | 合子在母体内发育为多细胞胚胎 | 衣藻、水绵等多数绿藻 | 合子裸露,无胚胎阶段 |
| 细胞壁 | 纤维素-果胶-半纤维素三元复合体 | 真菌、细菌 | 分别为几丁质、肽聚糖壁 |
三、边界的涟漪:三类争议生物的裁决
四道锚点圈出的边界并非斧劈刀切的断崖,更像一片由分子钟、化石记录与发育基因联手塑形的潮间带。长期悬而未决的,正是三群生物的户口问题。
绿藻与轮藻:从近亲到手足。 旧式分类习惯把绿藻当作植物界里的"低等成员"。上世纪九十年代以后,核糖体 RNA、延伸因子、RNA 聚合酶亚基等几十个保守基因的联合分析彻底翻新了这张图:轮藻门下的鞘毛藻纲与双星藻纲,同有胚植物一起组成了支持度极高的单系群——链型植物;其余绿藻则退居姐妹群位置。换句话说,轮藻并非远房表亲,而是现存生物中与陆地植物血缘最近的一支。
发育遗传学又添一块砝码:双星藻虽造不出真正的胚胎,却已经携带控制细胞极性与不对称分裂的关键基因同源物;其细胞壁中可以检出木葡聚糖与扩展蛋白的分子残迹;配子融合时还表现出与苔藓颈卵器受精极为相像的钙离子振荡节律。轮藻并非"还没来得及演化出胚胎",而是早已备齐胚胎发育所需分子装备的原型——它们是一群已经踏到陆地门槛、手里攥着半张通行证的探路者。
红藻:被拒之门外的异色兄弟。 红藻的叶绿体同样源自最初那场内共生,叶绿素 a 也与植物共享。但它的光能捕获系统由藻胆体当家,细胞壁里琼脂与卡拉胶充盈、纤维素与果胶缺位,胚胎发育更是无从谈起。分子系统学的结论一次次一致:红藻与植物的距离,远大于植物与轮藻之间的距离。两者的相像是趋同演化的作品,不是同源传承的印记。于是现代主流分类把红藻移出植物界,安排为与植物界平级的独立分支,二者同隶原始色素体生物这一超类群。
这场改判的意义远不止名词搬家:它让"植物"从一枚形态学的便利标签,变成一个精确的系统发育坐标。陆地植物的兴起并非无中生有的奇迹,而是轮藻祖先在淡水环境里花数亿年攒下的细胞极性、胞间连丝通讯、抗氧化防线与细胞壁调控等一整套预适应装备,在志留纪晚期气候剧变的压力之下的总爆发。
四、方法论与理论基石
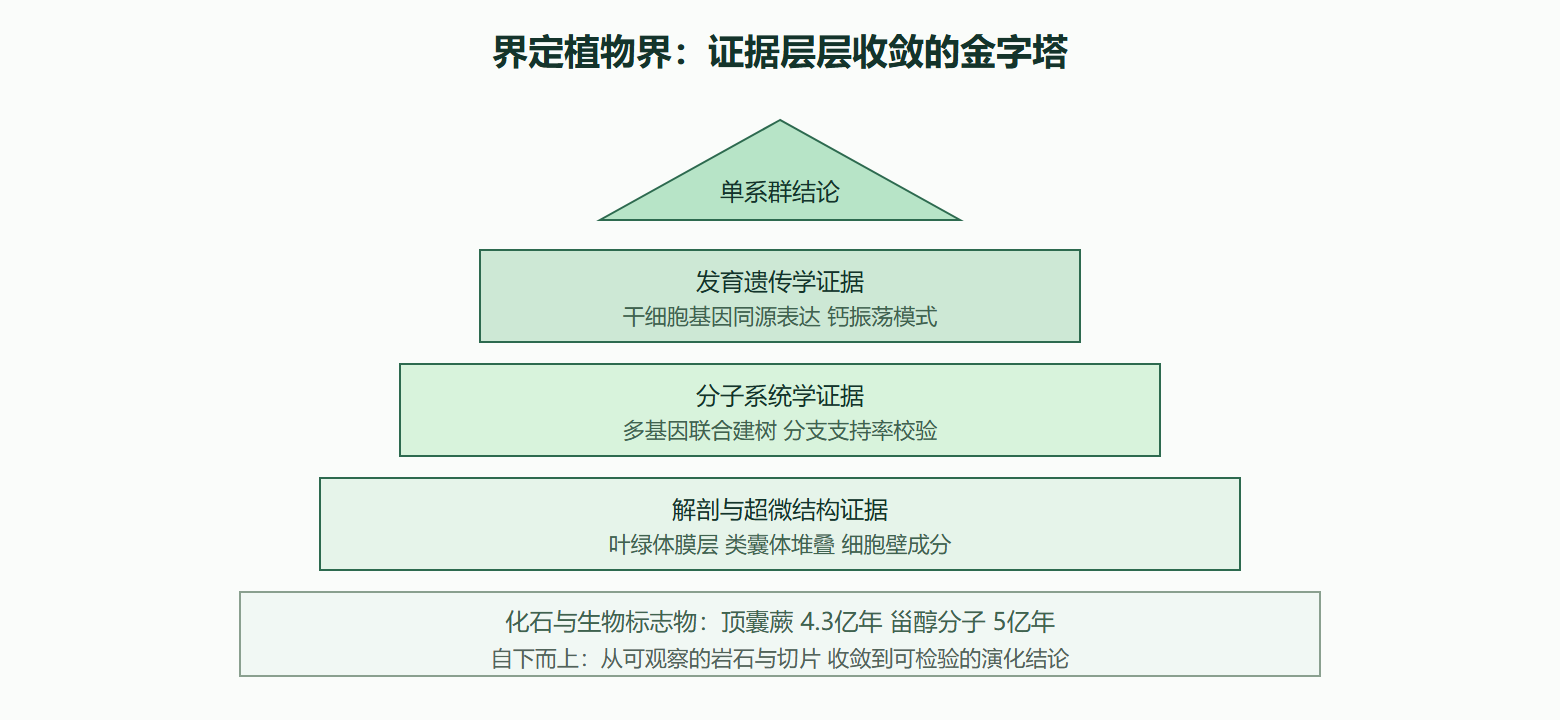
植物界定位每前进一层,背后都有技术范式的一次换代。形态与解剖学依旧是出发点:光镜下轮藻藏精器、藏卵器的构造与苔藓颈卵器高度同源;透射电镜对叶绿体被膜层数与类囊体堆叠方式的分辨,则是数内共生次数的关键凭证。当代的脊梁由分子系统学扛起:挑出多个单拷贝直系同源基因,做多序列比对、选模型、用最大似然或贝叶斯方法推断系统树,最后以分支支持率检验各节点的稳固程度。
发育基因组学进一步把定位问题推向机制纵深。比较转录组显示,WUSCHEL 的同源基因早在轮藻的配子囊原基中就已开启,提示干细胞维持功能的奠基早于登陆事件。古植物学则贡献了校准用的锚点:最古老且可靠的陆地植物化石顶囊蕨出土于约 4.3 亿年前的志留纪晚期地层;而在更老的奥陶纪黑色页岩中,谷甾醇、豆甾醇这类植物独有甾醇生物标志物的检出,把链型植物的分化时间继续上推到约 5 亿年前。岩石的沉默证词与分子钟彼此对表,植物界诞生的时间轴就此成形。
图 界定植物界的证据金字塔
实操:用色素吸收数据验证类群归属
把各类群的色素吸光峰整理成数据表,再用几行 Python 找出"绿色植物签名"所在的波段,形态直觉由此变成可复核的数值判断:
# 各类群主要吸光峰(nm):chla/chb 组合 vs 藻胆蛋白 vs chl c 组合 peaks = { "陆生植物(拟南芥)": [430, 662], "轮藻(鞘毛藻)": [433, 660], "红藻(紫菜)": [498, 545, 565], # 藻胆蛋白三峰 "褐藻(海带)": [445, 635], # chl a+c } for taxon, bands in peaks.items(): has_red_band = any(b > 640 for b in bands) green_line = has_red_band and 430 in bands print(f"{taxon:12s} 蓝紫430+红光660签名: {'命中' if green_line else '未命中'}")
运行后一目了然:只有陆生植物与轮藻同时落进"430 蓝紫 + 660 红光"的绿色签名框,红藻与褐藻各自偏离——锚点二被光谱数据自动复现。
实操:叶绿体被膜层数速查表
类群 叶绿体被膜 色素组合 界定结论 绿藻(衣藻) 2层 chl a+b 核心植物近缘 轮藻(双星藻) 2层 chl a+b+类胡萝卜素 链型植物,最近现生近亲 眼虫(裸藻) 3层 chl a+b(次生质体) 眼虫门,界外 隐藻 4层 chl a+c+藻胆蛋白 隐藻门,界外 红藻(江蓠) 2层(原始) chl a+藻胆蛋白 独立分支,界外
⚠️ 常见坑:把"有无叶绿体"当成植物判定的充分条件。次生内共生在藻类中屡屡重演,膜层数、色素组合与核质整合程度必须同时核对,否则眼虫这类"穿着植物外衣的原生生物"就会被误请进界门。
一节小结
- 要点一:植物界是一条演化支系,不是按功能归堆的集合;入界凭据是共有衍征,而非会不会光合作用。
- 要点二:细胞构造、光合色素、胚胎发育、细胞壁成分四道锚点互为校验,任何一道失守,结论即告作废。
- 要点三:CAO 基因只出现在绿色植物支系上,色素配方就是一部写进光谱的演化编年史。
- 要点四:胚胎保护标志着生殖策略由广种薄收转向精育稳投,是登陆行动的发育前提。
- 要点五:轮藻与有胚植物共组链型植物单系群,是陆地植物最近的现存近亲,且已备有登陆分子装备的原型。
- 要点六:红藻因藻胆蛋白、琼脂壁与无胚胎而被移出植物界,它与植物的相似来自趋同,而非同源。
- 要点七:顶囊蕨化石距今约 4.3 亿年,奥陶纪甾醇标志物则把链型植物的分化推至约 5 亿年前。
下一节将进入这套坐标系的语法层:界门纲目科属种的层级不是货架,而是一套嵌套的演化假设。