1.2 分类学核心逻辑与层级体系
1.2 分类学核心逻辑与层级体系
本节摘要:分类层级不是图书馆里给书编号的货架,而是一摞层层嵌套的演化假设。本节讲三件事:双名法如何从私人记号升级为"命名宪法";"种"为什么总是众说纷纭;APG系统又如何把层级从刚性框架改造成可伸缩的演化分辨率标尺。三条线索——命名的语法、界定的语义、组织的句法——拧在一起,构成了生命之树可被阅读、也可被修订的底层结构。
学习目标
读完本节,你应当可以:
- 复述"合法命名—模式指定—优先律—名称稳定"这条链上的每一环;
- 换用形态种、生物学种、系统发生种三种眼光去处理同一组疑难种群;
- 解释"双子叶植物纲"为什么会被APG系统取消;
- 说明分类层级如何充当基因编辑与入侵防控中的因果推理枢纽。
一、命名即立法:双名法的宪法属性
1753年林奈的《植物种志》问世。有一点要先澄清:属名加种加词的组合并不是林奈首创,此前已有学者用过。他真正有结构性贡献的地方在于,把这套做法制度化、标准化并带强制性,而且让它与可追溯的正式出版绑定。自那以后,名称不再是学者圈里的私人暗号,而成了整个科学界必须共同遵守的宪法。
双名法的力量,在于把无穷复杂的形态变化压进两个拉丁词的稳定张力里。一个橡树的学名并不只是"一棵树的代号",它是一组共享演化起源、生殖上相对隔离、形态上呈连续谱系的种群的法定身份证号。号码本身不携带生物学含义,却锚定了全部含义的起点:它指向一份模式标本——通常是压干保存、带原始采集信息、永久存放于某标本馆的实物凭证。
逻辑链条就这样铺开:合法命名引出模式指定,模式指定支撑优先律的执行,优先律最终服务于名称的稳定。两位研究者给同一种植物各起一名时,命名法规并不裁决谁的描述更"准确",而是启动时间裁判——最早合法发表的名称胜出,其余降为异名。而"合法发表"本身门槛不低:须刊载于可公开获取的出版物,配拉丁文描述或特征集要,并明确指定模式。
这套"命名即立法"的逻辑,把分类学从主观印象里捞了出来。西南某地新发现一种兰科植物时,研究者不会去争"它像不像某个兜兰",而是直接调出该属模式种的模式标本核对,再检查新标本是否带有该属的共衍征——唇瓣囊状、蕊柱合生、花粉块具柄。命名在此是一把尺子,不是一面镜子。
💡 关键直觉:每一次合法命名都是对知识公共性的承诺——你的判断必须经得起别人拿着同一份模式标本、同一册法规来复核。这是分类学作为硬科学的体面所在。
二、种之困境:基本单元的好几副面孔
双名法解决了语法,"种"则是整个层级体系的语义地基,也是争吵最凶的十字路口。林奈眼里,种是造物的不变单元;达尔文之后,种成了自然选择手下的动态谱系;今天,它是一个靠多维判据联手界定的操作性概念。
形态种至今仍是野外和标本室的第一语言。叶形指数、花序长度、毛被密度、染色体数目——这些指标虽然受环境饰变干扰,但在大尺度地理比较中分辨力依然可观。编一部横断山区植物志,分类学家最先倚重的还是花冠裂片角度、雄蕊数目、子房被毛类型这类经典性状组合。
但形态趋同与隐存分化一直在冲击这套框架。分子钟分析显示:东亚与北美间断分布的珙桐与其近缘种外形几乎无法区分,线粒体序列的分歧度却高达4.2%,超过多数公认的种间阈值——这是一对形态保守的分子种。反过来的情形也有:欧洲山杨与美洲山杨在人工条件下可以杂交,野外存在杂交带,可基因组中保留着显著的重组抑制区,核苷酸多样性格局表明两者长期各走各的演化路线。
于是有了生物学种:在自然条件下能够互相交配并产出可育后代的个体群。它抓住了基因流屏障这个演化实质,但对植物相当不友好——广泛的杂交、多倍化、无融合生殖把"可育后代"的标准搅得很糊。这时候更顺手的是系统发生种:一个种就是系统发育树上那个来自共同祖先的最小单系分支,成员至少共享一个共衍征。
现代实践早已脱离非此即彼的教条。对全球被子植物科级修订的一项元分析发现,成功立新的案例里,绝大多数都同时整合了形态、分子、细胞学与生态位模型的数据。种,正变成一个由证据矩阵支撑的概率判定——问题不再是"它到底是什么种",而是"按当前证据强度,把它拆成独立种的合理性有多高"。
表 三种种概念的比较
| 维度 | 形态种 | 生物学种 | 系统发生种 |
|---|---|---|---|
| 判据 | 可观测的稳定表型差异 | 自然条件下的生殖隔离 | 单系群加共衍征 |
| 优势 | 野外快速可用,历史数据兼容 | 直指基因流与演化机制 | 可量化、可复核、适配分子数据 |
| 短板 | 受趋同与可塑性干扰 | 杂交与无融合生殖植物难以适用 | 对取样密度敏感,易碎分 |
| 典型场景 | 植物志编纂、标本鉴定 | 动物区系、近缘乔木 | 快速辐射类群如兰科菊科 |
三、层级即历史:阶元体系的演化语法
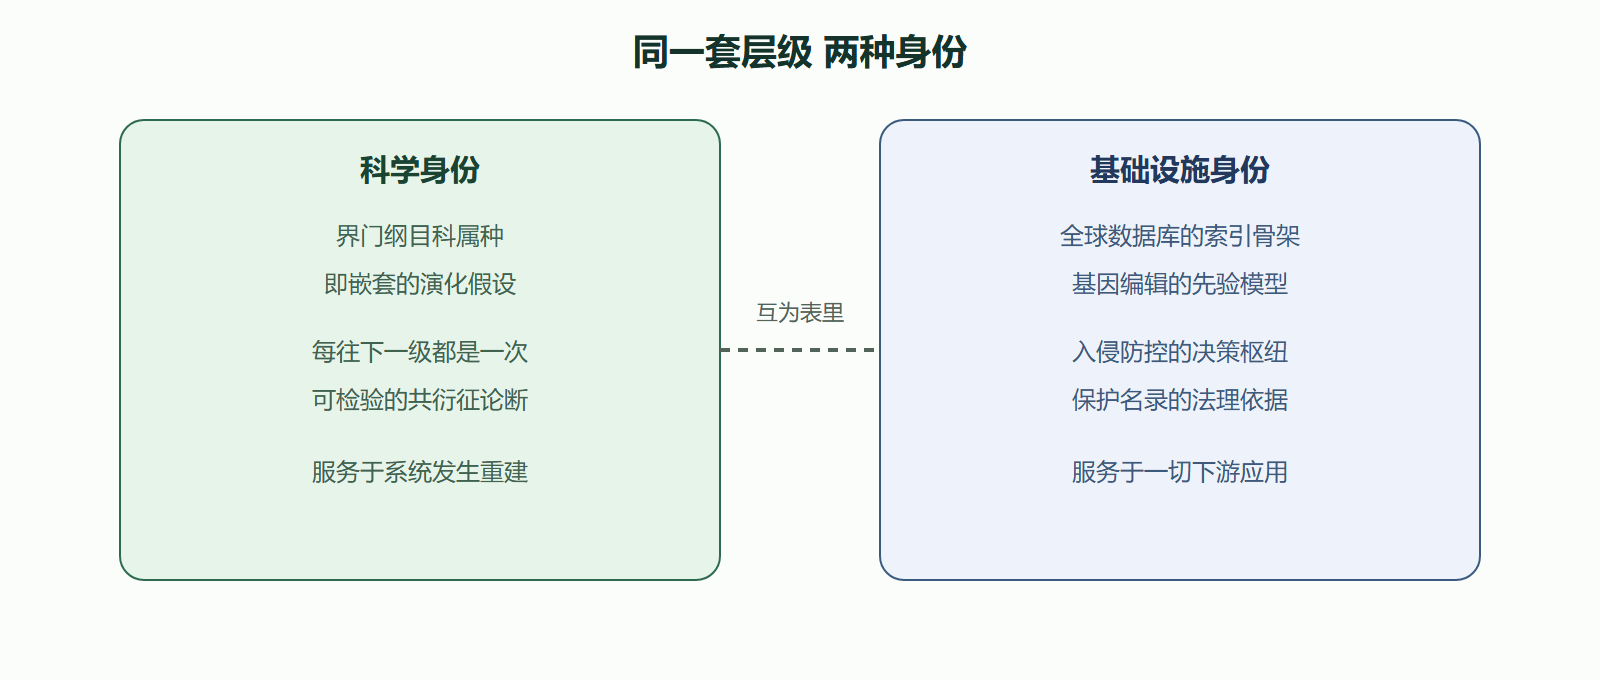
写下一条完整的分类路径时,那串阶元不是随便排的头衔,而是一份压缩过的演化履历:每上一级台阶,都对应一次关键共衍征的取得。门级对应植物体构型的根本变革——从苔藓的配子体优势,到蕨类的孢子体当家,再到胚珠被心皮包裹。纲级聚焦维管系统与生殖策略的协同:单子叶的散生维管束、三基数花、无形成层,与真双子叶的环状维管束、四或五基数花、次生生长能力,是两套各自闭环的发育方案。目与科继续往下细化:蔷薇目成员共享花托凹陷、雄蕊多数离生等祖征,蔷薇科再在此之上演化出托叶、周位花与聚合果。
然而阶元体系始终夹在"历史真实"与"实用管理"两股力量中间。分子系统学把被子植物的生命之树整个重画了一遍:传统的"双子叶植物纲"被证明是并系群,木兰类、单子叶、真双子叶才是三大主干。APG系统因此干脆放弃"纲"这一级的人为划分,改用不带等级的分支:基部被子植物、木兰类、单子叶、真双子叶。这套更贴近演化真相的框架,落到植物志编写和农业推广时却遇到麻烦——农艺师要知道的是"豆科作物有哪些属",不是某个分支叫什么名字。
当代分类学的应对是一套漂亮的双轨制:基础研究以分子支序为金标准;应用层面保留经过长期检验、高度稳定的传统阶元,再用科下分族、属下分组这类亚阶元做弹性填充。比如菊科下设多个族,紫菀族再分若干属——这些属的边界,正是靠叶绿体基因与核糖体序列构建的最大似然树所支持的单系性划出来的。
层级的战略价值,在生物入侵面前看得最清楚。一种南美来源的植物在华北多点暴发,形态鉴定起初误判为茄科近缘种,防控照搬针对龙葵的药剂配方,收效甚微;改用质体基因与核糖体序列做快速系统发育分析,几天内确认它其实归旋花科的远亲支系,抗药机制与茄科根本不是一回事。这时"科"这个层级就不再是文献索引的便利贴,而成了连接分子机制、生理响应与田间管理那条因果链上的关键节点——它压缩了信息熵,把上亿年的演化试错浓缩成一条可执行的决策路径。
⚠️ 常见坑:野外检索表走不通,就怪植物"变异太大"。多数时候是性状取错了部位或季节——花部性状必须以花期标本为准,营养枝的叶形不能混同生殖枝的叶形。
四、体系即基础设施
分类层级早已不只是博物学的遗产,而是当代植物科学的数字地基。全球生物多样性信息机构(GBIF)数据库里每一条植物观测记录——坐标、时间戳、影像——只有挂到标准分类路径下,才可能参与跨区域、跨项目的汇总分析。缺了这套公共坐标,云南的鼠尾草记录与西班牙的同类数据就只是两座孤岛。
在合成生物学里,这套架构更是绕不开。想给丹参转入拟南芥的开花时间调控基因、以优化采收周期,第一步是核对两者的谱系距离:拟南芥在十字花科,丹参在唇形科,同属真双子叶的唇形类分支,亲缘不算远,基因功能保守性可以期待;要是目标物种换成远缘的蕨类,就得预设更大幅度的功能漂变。分类层级在这里充当基因编辑理性设计的先验概率表。
它还在暗中规定我们提问的姿势。遥感专家发现青藏高原东缘某河谷植被覆盖度十年少了三成,他不会笼统地问"植物怎么了",而是会具体问:某个杜鹃种群是否在衰退?分布海拔的上限是否在上移?问题本身已经内嵌了分类学提供的时空坐标与演化语境。
实操:把分类路径解析成嵌套字典
分类路径本质是嵌套假设,用代码把它拆开来看最直观:
taxon_path = "植物界/被子植物/真双子叶/豆目/豆科/蝶形花亚科/黄芪属" levels = taxon_path.split("/") nested = {} cur = nested for lv in levels: cur[lv] = {} cur = cur[lv] print(f"共 {len(levels)} 级嵌套; 属级是叶节点: {list(nested.keys())[-1]}") # 每往下一级, 对应一组更晚取得的共衍征: 心皮->四五基数->荚果->蝶形花冠
七级路径展开后即是一棵深度为七的树——"层级是压缩的演化履历"这句话,在数据结构层面原样成立。
实操:三种物种概念对疑难种群给出三种答案
材料: 珙桐属东亚-北美间断复合群, 形态几乎无法区分 形态种判定 : 同一种(表型差异不显著) -> 维持合并 生物学种判定 : 天然分布区隔离, 交配测验不可行 -> 无法裁决 系统发生种判定: 线粒体分歧度4.2%, 各自单系 -> 拆为两个种 最终处理: 采纳系统发生种 + 保留形态检索表注记分歧 -- 证据矩阵式裁决
图 层级体系的双重角色
核心回顾
- 要点一:林奈的功绩是把命名制度化成宪法,而非发明双名法;名称锚定于模式标本这个物理凭据。
- 要点二:优先律管时间裁判,合法性管入场券,稳定性是终点,三环相扣。
- 要点三:三种种概念各有地盘,现代实践是证据矩阵下的概率判定。
- 要点四:层级是压缩的演化履历,每次升级对应一次共衍征的取得。
- 要点五:双子叶纲因并系被废,APG双轨制在演化真实与应用便利之间找平。
- 要点六:层级是数字时代的基础设施——数据索引、基因设计、入侵防控全挂在上面。
下一节进入这套语法的司法环节:命名法规如何在几百万物种和两百年文献堆里断案。