2.1 关键演化节点与化石证据链
2.1 关键演化节点与化石证据链
本节摘要:植物征服陆地用了一亿多年,而且全程悄无声息。本节沿时间轴梳理四次相变——苔藓类完成登陆预适应、维管组织出现、胚珠形成、被子植物扩张——并说明每一处节点如何靠实体化石、形态与分子联合分析、地层年代约束这三类证据彼此印证。贯穿全节的立场是:重大创新都是被旧约束逼出来的权宜之计,不存在任何面向未来的设计。
学习目标
读完这一节,你应当可以:
- 报出四次相变各自的年代区间与标志性结构;
- 复述认定一个"节点"的三个条件:性状固化、生境扩张、谱系拓扑断点;
- 讲清莱尼燧石、古果属、无油樟三件证据各自解决了什么问题;
- 理解化石记录的残缺为什么让多源交叉验证变得不可或缺。
一、先立规矩:什么样的转折才配叫"节点"
需要先拆掉一个流行的想象:演化不是爬楼梯,而是不断分叉的树;所谓节点,也不是某个物种灵光一现"发明"了新器官,而是一批解剖学改动、繁殖方式的重组与外部压力恰好共振,导致整个类群的功能格局发生涌现式改变。
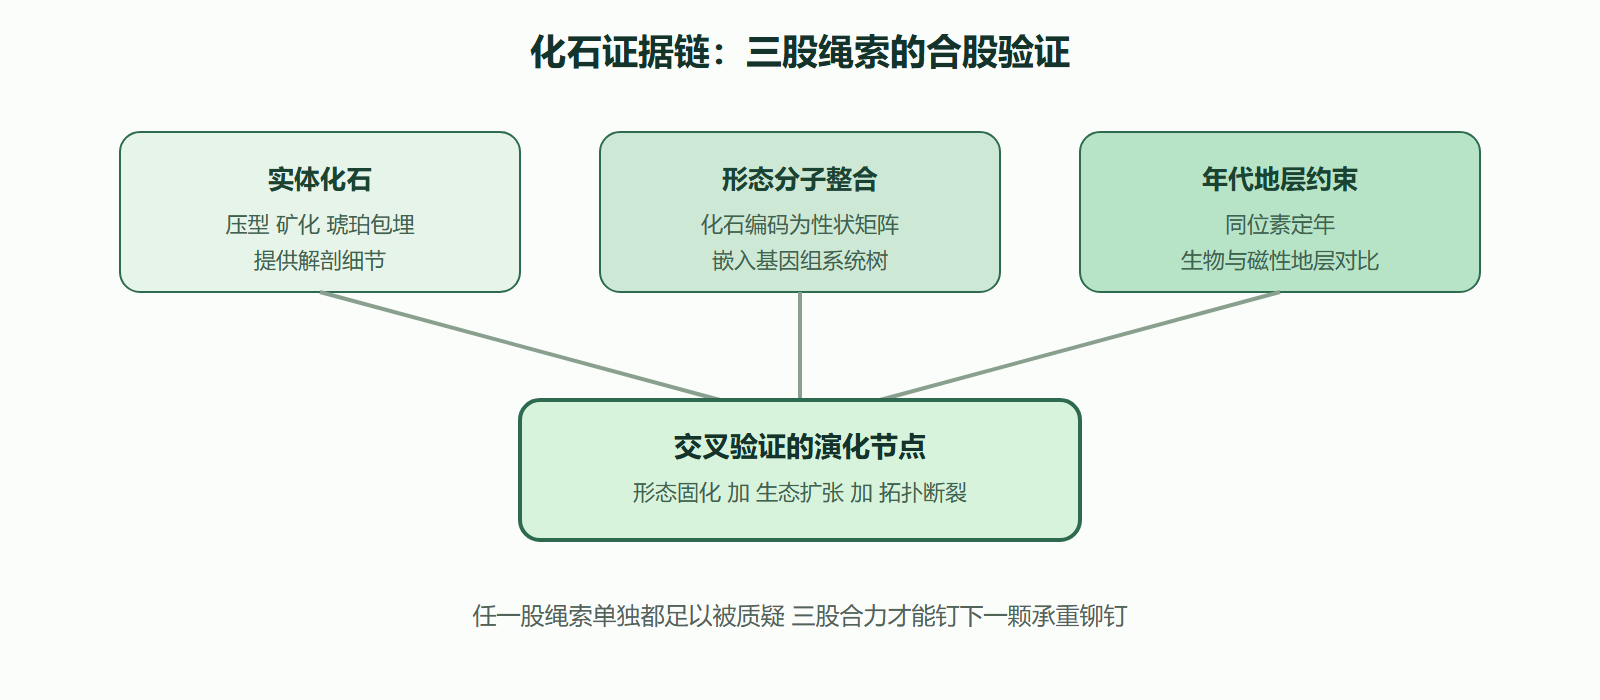
据此,给一次真正的跃迁设三道门槛。其一,性状固化——新特征不再是零星个体的畸形,而已成为可遗传、发育上稳定的模块。其二,生境实质扩张——类群借此进入原先够不着的维度,比如垂直高度、干旱地带、脱离水体的繁殖。其三,拓扑断裂——分子谱系与形态谱系在此处出现高支持度的分岔。三证齐备,演化树上才允许钉钉子。
化石证据链就是验收这些钉子的法庭。但法庭的卷宗永远不完整:软体组织极难保存,幼体标本稀少,埋藏又受沉积条件苛刻筛选。因此这条"链"的强度不在连续,而在多源证据能否互相咬合——在四亿多年的时间迷雾里,只有几股绳拧在一起,才拉得出可信的信号。
二、四次相变:四个低音
第一变:绿藻的后裔在湿润边缘站稳——苔藓类(约4.7至4.3亿年前)。这一步的看点不是根叶的出现,而是一套抗旱装备的成形:胞外多糖鞘、初具雏形的角质层,以及仍旧离不开液态水的受精方式。两个常见误解要在此澄清:其一,顶囊蕨常被当作最早的维管植物,但莱尼蕨等近缘类群已具备原始输导组织;其二,苔藓类真正的独有特征是生活史的"倒置"——配子体世代占主导,孢子体寄生于其上且无维管分化,这是陆地严酷条件下繁殖投入与资源分配之间讨价还价的结果。
这一段留下的化石极少,苏格兰的莱尼燧石(约4.08亿年前)因此格外珍贵:它以细胞级别的分辨率保存了早期陆生植物,还顺带记录了一个事实——植物皮层里已经有了菌根共生体。也就是说,登陆工程从第一天起就是与真菌合营的。
第二变:输导管道出现,孢子体翻身(约4.2至3.8亿年前)。莱尼植物群既没有根和叶,更没有种子,却拥有离生中柱与茎顶的孢子囊:前者解决了水分养分远距离运送的难题,后者意味着孢子体第一次能独立生长和扩散。在莱尼蕨茎的横切面上能看到清晰的木质部环——这是地球历史上第一批由死细胞构成的高效水管。有了这套管道,植株体型的增长空间被彻底打开,泥盆纪中期的森林革命随之而来:前裸子植物长到二十米上下,羽状复叶配二叉分枝的枝系,已经很像后来乔木的冠层。全球十多个泥盆纪化石点的硅化茎干经同步辐射扫描后可重建三维维管网络,测算显示其输导效率比较低矮的顶囊蕨高出三倍以上。
第三变:胚珠出现(约3.6至3.2亿年前,石炭纪)。种子的实质,是把雌配子体层层包进母体组织,受精之后在包被内启动胚胎发育,最后产出一个带营养储备的休眠体——等于给繁殖买了彻底不依赖水体的保险。种子蕨是这场过渡中最耐人寻味的一环:叶子还是蕨类式的大型羽状叶,胚珠却已经长在叶轴或特化的短枝上。决定性的材料出土于美国弗朗西斯溪化石床:那些三维保存的胚珠里,竟然留着花粉管通道的痕迹和早期胚胎细胞团——配子体的发育确认已在母体庇护下完成。这不只是繁殖策略的升级,更相当于发育时间表被重新编程:胚胎的命运从此由母本基因组和微环境共同决定。
第四变:被子植物的扩张(约1.35至0.9亿年前,白垩纪)。前三变好比硬件迭代,这一变接近操作系统重装。中国辽宁义县组约1.25亿年前的古果属一度被认作最早的被子植物,但它没有花瓣、心皮离生、雄蕊螺旋排列——这些特征说明它并非现代被子植物的直系祖先,而是心皮闭合机制的一次早期实验分支。拓扑上真正关键的类群是无油樟:这种今天只长在新喀里多尼亚雨林里的灌木,被分子系统学一致放在被子植物树的基部姊妹群位置,支持率接近满分。它的花貌不惊人,却带着全套核心配置——完全闭合的心皮构成雌蕊、胚珠着生于腹缝线、受精后执行典型的双受精。更出人意料的是它基因组里混着大量源自苔藓与绿藻的线粒体DNA水平转移片段。也许被子植物真正的王牌不是花的精巧,而是基因组层面罕见的容纳与重塑能力。
表 四次跃迁的证据与意义
| 跃迁 | 年代 | 结构创新 | 关键证据 | 生态后果 |
|---|---|---|---|---|
| 苔藓式登陆 | 约4.7至4.3亿年 | 抗脱水鞘、角质层雏形 | 莱尼燧石细胞级保存 | 开辟湿润边缘生境 |
| 维管束涌现 | 约4.2至3.8亿年 | 离生中柱、顶生孢子囊 | 硅化茎干输导效率提升三倍 | 垂直空间与森林革命 |
| 种子诞生 | 约3.6至3.2亿年 | 胚珠、母体保护胚胎 | 胚珠内花粉管与胚胎痕迹 | 彻底脱离水体繁殖 |
| 被子植物爆发 | 约1.35至0.9亿年 | 心皮、双受精、花模块 | 古果属化石与无油樟基因组 | 占据几乎全部陆地生境 |
三、证据链怎么编:三层嵌套
证据链不是捡到什么算什么,而是有设计的多尺度验证工程。
**第一层:微观解剖的切片。**莱尼燧石标本要先经乙酸酸蚀,再在透射光与共聚焦激光扫描下做三维重建;古果属的硅化果序则用同步辐射显微断层扫描,不切样就能分辨直径八微米的导管分子和胚珠里的珠心组织。经过这层处理,化石从剪影变成发育过程的快照——例如可以核对某类叶片的气孔密度是否随二叠纪干湿波动而变化,把个体生理读进古气候模型。
**第二层:把化石编码进矩阵。**这项工作最费脑力也最被轻视。拿种子蕨来说,胚珠着生位置、珠被层数、花粉器形态等二十七个性状,都要先经比较解剖学严格定义,再转成二元或多元编码;这张形态矩阵与三百多种现存种子植物的分子矩阵一起送入贝叶斯推断。在这个框架里,化石的身份不是"终点标本",而是形态演化速率的校准点,用来约束分子钟各分支的替换速率。有一项研究借助古果属与西班牙早白垩世水生被子植物的精确定层年龄,把被子植物的起源时间前推到约2.1亿年前的晚三叠世,迫使学界重新评估泛大陆裂解初期植物与昆虫协同演化的整套假说。
**第三层:地质背景定场景。**孤立的一粒花粉说明不了什么;但当它与甲虫化石、火山灰层、古土壤钙结核出现在同一剖面上,一个古生态现场就搭起来了。云南澄江附近的早白垩世红层里,古果属与甲虫化石反复共出,花粉器构造又与甲虫口器形态吻合——"可能存在传粉关系"的猜测至此升级为闭合的行为生态证据链。
⚠️ 常见坑:见到某块化石就认作某现代类群的"祖先"。化石只能是侧枝或近亲,其在树上的位置必须由形态矩阵与分子树联合推断,不能按长相对号入座。
💡 关键直觉:化石给出的是年龄下限,不是精确生日——每次新发现都可能把节点年代上修或下推,这是科学的常态而非缺陷。
实操:用分歧度数据估算节点年代的量级
分子钟推算不神秘,核心只是"分歧度除以速率":
# 已知参数: 叶绿体基因替换速率 r ≈ 3e-9 替换/位点/年(双子叶经验值) r = 3e-9 pairs = {("古果属", "现生木兰类"): 0.042, # 校正后的序列分歧度 ("无油樟", "其他被子植物"): 0.061, ("种子蕨矩阵锚点", "裸子植物"): 0.185} for (a, b), d in pairs.items(): # 分歧时间 = 分歧度 / (2r), 简化成一叉模型 t_mya = d / (2*r) / 1e6 print(f"{a} vs {b}: 约 {t_mya:.0f} 百万年前分歧")
三行换算即可复现"被子植物起源前推至约两亿年前"的量级——当然,真实研究会用多点校准的贝叶斯松弛钟,但骨架就是这道算术。
实操:化石证据链速查卡
证据体 年代(Ma) 保存方式 解决的问题 莱尼燧石 ~408 硅化, 细胞级三维 最早陆生植物+菌根共生起点 泥盆纪硅化茎干 ~390 矿化替代, 同步辐射 维管网络重建, 输导效率测算 弗朗西斯溪胚珠 ~320 黄铁矿结核三维保存 花粉管通道与胚胎细胞团实证 义县组古果属 ~125 火山灰细粒埋藏 心皮闭合的早期实验分支 无油樟(现生) -- 基因组测序 被子植物基部姊妹群定位
图 化石证据链的三股绳索
四、节点教给我们的事:演化没有方向盘
把四次相变连起来看,一个结论浮出水面:每一项重大创新都是被当时的困境逼出来的临时方案,没有人(也没有选择压力)在设计未来。维管组织起初服务的不是参天巨树,而是低矮植株体内水势失衡的燃眉之急;胚珠的封闭最初只为避免干旱时段配子体干死,附带的产品却是胚胎获得了母体供养与休眠调度;花的模块化,则是对传粉者行为不确定性的概率学应对。
这个视角也回答了一个疑问:无油樟这样"原始"的基部类群,为什么没被更晚出现的被子植物挤掉?因为它早已把自己调成了岛屿云雾林弱光、高湿、贫营养条件下的特化解——长得慢、代谢低,恰是那里的能量最优策略。演化没有进步的箭头,只有无数条在约束地形里各自寻路的适应轨迹。至于白垩纪晚期被子植物指数级替换裸子植物森林一事,驱动因素同样不是"更高级":心皮结构允许花部形态快速跟进五花八门的传粉者,双受精保证胚乳与胚胎发育同步——在大灭绝后的破碎生境里,这两种弹性无人能敌。
一节小结
- 要点一:合格的节点要同时过性状固化、生境扩张、拓扑断裂三关。
- 要点二:苔藓的倒置生活史是登陆阶段的妥协方案;莱尼燧石证明登陆工程自始就是与真菌的合资项目。
- 要点三:维管组织破解了长距离输导的瓶颈,效率提升三倍以上,森林由此起航。
- 要点四:弗朗西斯溪的胚珠里留着花粉管与胚胎细胞团,是种子起源最硬的发育学证据。
- 要点五:古果属属于心皮闭合的实验支系;无油樟则以基部位置与跨界基因片段暴露了被子植物基因组的可塑性。
- 要点六:化石定下限不定生日;三股绳合股验证是整条证据链的构造原理。
- 要点七:演化无目的——创新皆是被约束逼出的突围,不存在淘汰的箭头。
骨架立好了,下一节介绍给骨架刻度的现代工具:分子系统学如何从一撮序列推算出整棵生命之树。