2.3 主要分支的演化创新特征
2.3 主要分支的演化创新特征
本节摘要:苔藓、蕨类、裸子植物、被子植物各自留下了什么看家本领?苔藓把"简化"做成了坚守的资本,蒴齿能把湿度信号直接转换成机械动作;蕨类的环带用毫秒级的力学爆发弹射孢子,把细胞级设计接进了林下的气流格局;裸子植物的球花玩转热气流、腐臭拟态和花粉气囊三套化学外交;被子植物则靠MADS-box基因网络的模块化调度,统一安排从萼片到雌蕊的器官身份。一条主线贯穿始终:用结构简化换鲁棒,用发育冗余换可塑,用模块化换解耦。
学习目标
读完本节,你应当可以:
- 用"约束之下的创造性解法"来解释四个类群各自的招牌创新;
- 讲出苔藓蒴齿与蕨类环带各自的力学原理;
- 比较苏铁、银杏、松柏三类传粉路线的差别;
- 说清ABCE模型如何靠几类基因的组合指定花器官身份;
- 理解创新的嵌套性——上一支的创新是下一支的地基。
一、先校准直觉:创新的判据是瓶颈,不是新奇
演化不会无中生有,它做的事无非三种:给旧结构分派新功能、重新排布空间、重新调度时间。判断一个性状算不算"创新",标准也不在于它有多新鲜,而在于它是否撬开了某个卡住整个类群的瓶颈——要么开出新的生存空间,要么明显提高繁殖成功率。两个例子可以说明这一点:维管组织的本意不是"长得高",而是解开水分与光合产物远程运送的死结;花被分化成几轮也不是为了好看,而是把吸引、保护、授粉、受精几件事在空间上分开、在时间上错开,降低自交衰退与器官冲突的风险。
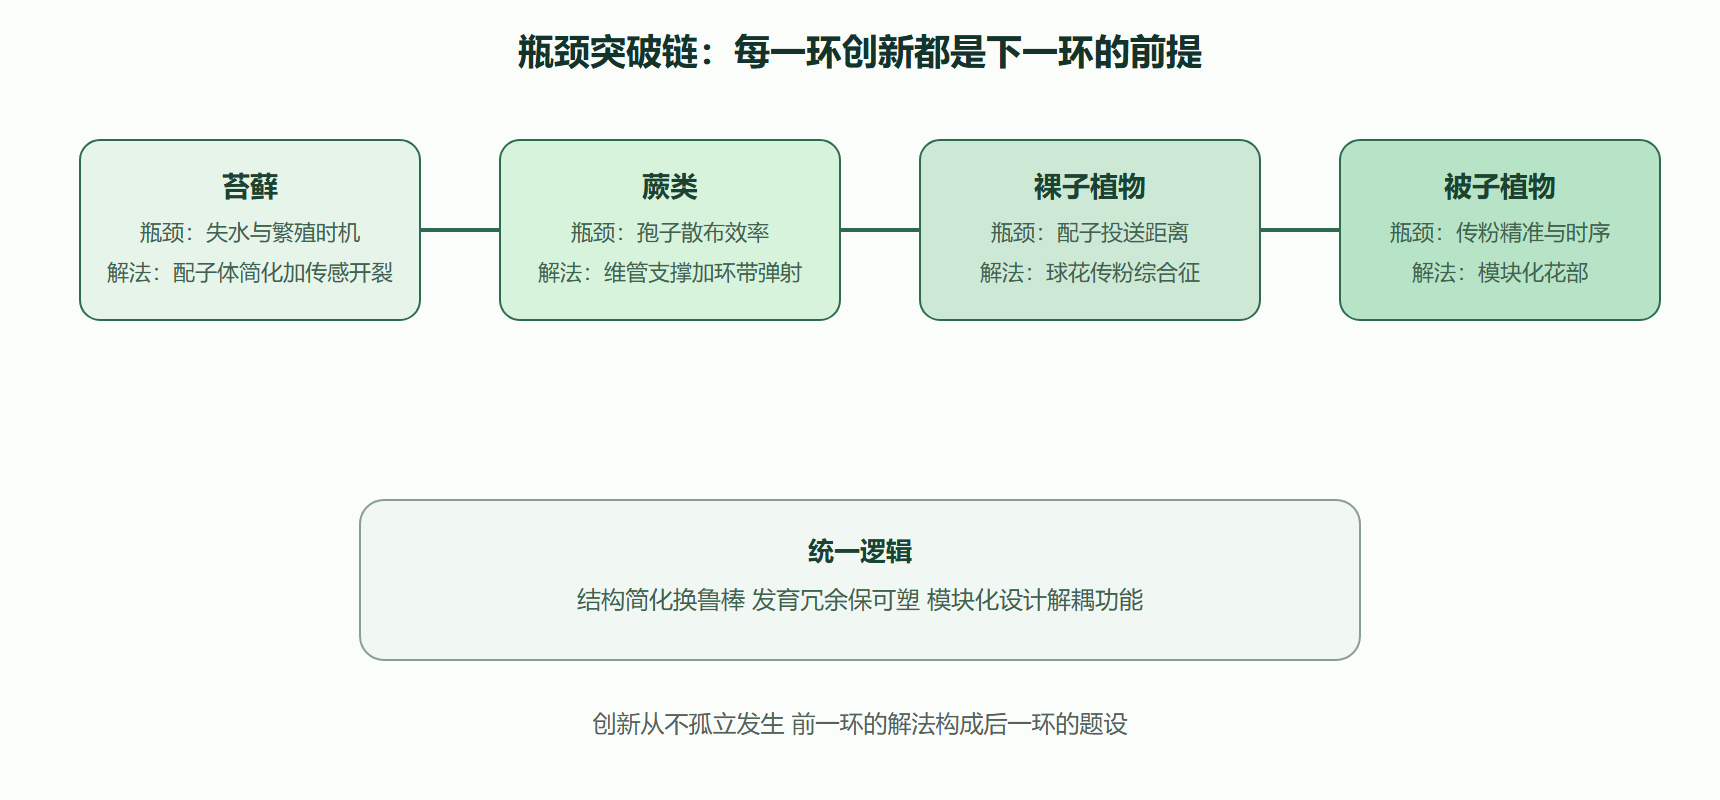
创新还有一个常被忽略的性质:嵌套。前一支的创新往往构成后一支的前提——没有维管组织打底,次生生长这类木质部的深度特化无从谈起;没有胚珠被心皮包住所建立的封闭受精原型,被子植物双受精那套严密的时序控制也就没有发育上的落点。所以看创新必须放回连续谱里:它既是一道断口,也是一根承重梁。
二、四个类群的创新档案
苔藓:把简化做成坚守
乍看苔藓,很容易得出"原始"的印象:没有真根,没有维管组织,配子体当主角。但这不是一份未完成的草稿,而是一套调校到位的低功耗、抗折腾方案:发育重心前移到配子体世代,用结构上的删减换取对环境响应的速度。
它的假根不含输导组织,可细胞壁里富集加厚的胼胝质与纤维素微纤丝,织成一张高效的毛细吸附网;顶端细胞不断分裂,能顺着土壤湿度梯度定向延伸。更讲究的是孢蒴的开裂设计。金发藓属的蒴齿由膨胀系数不同的纤维素层构成,湿度一变就发生可逆卷曲,像一个微型水力开关,把孢子释放的窗口卡得很准;葫芦藓属走另一条路——蒴盖只有一层细胞,靠干燥时蒴壁收缩产生的张力自动掀开。这套开裂装置的多样变体,本质上是把环境信号(湿度波动)直接当作动力源:不耗一分能量,就实现了孢子释放与风媒传播在时机上的耦合。
蕨类:维管躯体上的弹射装置
蕨类把陆地植被拉进了垂直空间之后,创新的焦点转移到孢子散布的效率上。孢子囊群长成肾形、线形还是圆盾形,都不是随手为之,而是对叶片微气候的拓扑适配;真正的核心执行器是囊群下方的环带。
环带是一列特化的死细胞,细胞壁呈U形加厚。孢子囊成熟失水,外侧薄壁先收缩,U形厚壁像压簧一样储能;张力到临界点的一瞬,环带猛然内翻,抽打囊壁,把孢子像微型炮弹一样抛出去。高速显微摄影的研究表明,环带的细胞数、加厚角度和排列弧度共同决定弹射初速与发射角:鳞毛蕨属的环带能给出约每秒2.3米的初速,发射角约三十八度——正好对上林下叶隙间湍流的尺度。一个细胞级的力学零件,就这样接进了生态系统级的气流版图。
裸子植物:球花里的化学外交
球花常被当成花的粗糙草稿,这低估了它。没有花被负责吸引,裸子植物硬是演化出一整套远程雄配子投送系统,三个大类群各写各的方案。
苏铁的雄球花在高温的午后放出大量热与挥发性萜烯,制造一股裹着花粉上升的热气流,交给风做长途运输;雌球花则分泌糖脂混合液,午后升温时挥发引诱甲虫,甲虫取食之际完成异花授粉——热力气流与昆虫双保险。银杏把专化走到极端:雄株放出含丁酸、己酸的腐臭气味,把腐败有机质模仿得惟妙惟肖,专门吸引夜行性的粪甲虫;雌株的外种皮成熟时爆出同款恶臭,保证果实落地后甲虫仍找得到,稀里糊涂替它搬运种子——以臭为媒,把授粉到传播的整条链路都办了。松柏另想办法:花粉带两枚气囊,沉降速度大幅降低,搭春季稳定西风跨流域旅行;雌球花的珠鳞在授粉期泌出粘液截住花粉,授粉一结束立刻闭合,杜绝后续干扰——一边精确借用大气环流,一边对授粉窗口严防死守。
三类植物殊途同归于球花形态,实际上是在不同生态约束下,对"如何把雄配子高效送到"这同一道题给出的独立答案。形态趋同只是表面,功能分化才是里子。
被子植物:花部模块化与基因乐谱
被子植物的革命性在于花器官被严格模块化,背后是MADS-box基因调控网络的分级分工。一朵典型的花可拆成四轮同源器官:萼片管保护,花瓣管吸引,雄蕊扛花药,雌蕊裹胚珠。空间上的这套秩序源自经典的ABC框架:A类基因负责萼片与花瓣的身份;B类与A类共同表达出花瓣、与C类共同表达出雄蕊;C类单独决定雌蕊;E类基因充当通用辅因子,让各蛋白能组装成有功能的复合物去激活下游靶基因。
但这张图不是静态蓝图。在拟南芥里,A类基因除了启动萼片发育,还会在花芽早期压制开花调控基因,给花序向花的转变留出时间余量;C类基因在雌蕊中除了指定心皮身份,还通过抑制干细胞维持基因,主动叫停花分生组织的活性,防止"花里长花"的发育事故。这支基因乐团纪律极严:每人有固定声部,指挥又能按乐章调整各声部的强弱与进场时机,在时空坐标上精确排出花器官的三维形态。正是这种发育弹性,让被子植物在白垩纪晚期迅速辐射,从极地苔原一直铺到热带雨林。
表 四大分支创新对照
| 分支 | 核心创新 | 代表机制 | 解决的瓶颈 | 付出的代价 |
|---|---|---|---|---|
| 苔藓 | 配子体主导策略 | 蒴齿湿度感应开裂 | 湿润边缘生境的繁殖时机 | 无维管输导 体型受限 |
| 蕨类 | 环带弹射工程 | U形加厚细胞储能释放 | 孢子散布效率 | 受精仍依赖水膜 |
| 裸子植物 | 传粉综合征分化 | 热气流 腐臭拟态 花粉气囊 | 雄配子远距离投送 | 生长慢 花部吸引单一 |
| 被子植物 | 花部模块化与双受精 | ABCE 基因组合指定 | 传粉精准性与发育时序 | 结构复杂 投资成本高 |
三、一条暗线:约束、补偿与冗余
把四个类群并排看,能发现一条共同的暗线:在物理、化学、生物三重约束下,拿结构简化换功能稳定,拿发育冗余换演化弹性,拿模块化换功能解耦。
苔藓把孢子体的复杂性整个放弃,换来对瞬时水膜的极限响应;蕨类用环带这一个细胞结构,顶替了一整套肌肉神经式的控制系统;裸子植物把传粉外包给风或虫,自己专心制造并保护花粉与胚珠;被子植物干脆把花做成积木——萼片可以退化成苞片,花瓣可以特化成蜜距,雄蕊可以变成退化雄蕊——模块之间耦合越松,环境变化时的回旋余地越大。
⚠️ 常见坑:给类群贴"原始""高级"的标签。苔藓不是失败版的蕨类,银杏也不是没进化完的被子植物——它们都是在各自的约束地形里走到局部最优的方案。
💡 关键直觉:面对一株植物,别问"它进化到第几级",改问"它突破了什么瓶颈、为此付出了什么代价"。这一问一答,就是演化创新的全部语法。
实操:用 ABCE 组合表推演突变体表型
ABC 模型最妙的性质是可当布尔逻辑查表用:
# 各轮器官身份由基因组合唯一指定 identity = {("A",): "萼片", ("A","E"): "萼片", ("A","B"): "花瓣", ("A","B","E"): "花瓣", ("B","C"): "雄蕊", ("B","C","E"): "雄蕊", ("C",): "雌蕊", ("C","E"): "雌蕊"} mutants = {"野生型": "ABCE", "B功能缺失": "ACE", "C功能缺失": "ABE", "E功能缺失": ""} for name, genes in mutants.items(): whorl = [] for combo in [("A",), ("A","B"), ("B","C"), ("C",)]: key = tuple(g for g in combo if g in genes) or ("A",) if "A" in genes else tuple(g for g in combo if g in genes) whorl.append(identity.get(tuple(g for g in combo if g in genes), "叶状结构")) print(f"{name:8s} -> 由外到内: {whorl}")
跑一遍就能复现经典结论:B 功能缺失的花由外到内是萼片-萼片-雌蕊-雌蕊,C 功能缺失则花瓣层层嵌套、花里长花——基因逻辑与突变表型严丝合缝。
实操:环带弹射参数速查
类群 环带细胞数 厚壁角度 实测初速 发射角 适配气流尺度 鳞毛蕨属 ~18 U形近全环 ~2.3 m/s ~38° 林下叶隙湍流 紫萁属 ~14 不完全环 ~1.6 m/s ~45° 近地缓风层 水龙骨属 ~11 宽U形 ~3.1 m/s ~30° 冠层下方强湍流
环带细胞数与加厚几何一起决定弹道——同一个力学原型,参数微调即对应不同的林下气流生态位。
图 四大分支的瓶颈突破链
本节速览
- 要点一:创新的判定标准是瓶颈突破与生境扩张,与形态是否新奇无关。
- 要点二:苔藓蒴齿把湿度信号转成机械功,零能耗实现时机耦合。
- 要点三:蕨类环带的弹射参数——约每秒2.3米初速、约三十八度发射角——正好匹配林下湍流。
- 要点四:苏铁热气流、银杏腐臭拟态、松柏花粉气囊,是同一道题的三份独立答卷。
- 要点五:ABCE模型用几类基因的组合指定四轮花器官,还内置时序缓冲与分生组织终止机制。
- 要点六:模块间低耦合是被子植物的终极缓冲,支撑了白垩纪的大辐射。
- 要点七:四个类群共享"简化换鲁棒、冗余保可塑、模块化解耦"的统一逻辑。
演化史到此告一段落,下一章切回现在时:这些花四亿年练出来的结构,如今是怎样与功能配合运转的。