5.2 生物多样性保护实践体系
5.2 生物多样性保护实践体系:把保护从善意行动改造成可验证的工程
森林消退、草甸开垦、外来种逃逸,这些都是人类利用植物付出的账单,而账单上最隐蔽的一项,是农作物品种单一化对野生基因库的持续稀释——长江中下游的普通野生稻Oryza rufipogon居群正以年均约3.7%的速度消失。代价既已认清,直觉给出的对策却经不起推敲:"多建几个保护区""多存几份种子"式的善意,正是本节要检讨的对象。保护要产生实效,需要的是一整套可以被测量、被复盘、被问责的工程化体系。以下按"理念—原理—工具—模块—模式"的顺序,把这套体系逐层拆开。
一、核心理念:从"数个体"转向"看潜力"
很多人对保护的理解停留在"别让某个物种死掉"。这个目标当然重要,但它只盯着结果,看不到过程。一个更可操作的定义是:保护的对象是一个地区植物群落尚存的演化潜力——也就是在气候波动、病害流行、土地用途改变等冲击来临时,群落还能调动多少回旋余地。这种潜力由四类储备构成:表型层面的可塑性幅度、种间杂交还能不能成功、土壤种子库里各类休眠种子的萌发门槛是否覆盖完整、以及微生境是否足够多样。
举个对比:一片次生林里若17种蕨类对林窗光照梯度各有各的反应区间,这套响应谱本身就是潜力的证据;再如一座山上是否还保留着Kingdonia uniflora固然值得记录,但更关键的是从常绿阔叶林带直到流石滩带,各海拔段种子库的休眠—萌发结构有没有断档。个体会死,潜力断了才是真正的危机。
按这个理念,评估指标也要换一套眼光。IUCN红色名录使用的EOO(分布区范围)与AOO(实际占据面积)不只是地图上的两个数字:前者对应物种对气候包络的宏观适配幅度,后者反映具体生境斑块被真实占用的效率。有研究提出用二者比值AOO/EOO衡量栖息地利用饱和度——当温带木本植物的这个比值长期低于0.15(Nature Ecology & Evolution, 2022的Meta分析),说明标本记录虽广,多数地点却只是偶发扩散的落点,并无能自我维持的居群。地图看着还大,底子已经空了,这正是潜力流失的先行信号。
图注:演化潜力的四个储备维度及各自的监测代理变量,均可纳入保护优先级排序。
二、基本原理:尺度对齐与数据回流
这套体系的第一条原理是尺度对齐。植物的保护问题天然分布在四个尺度上:植株依赖不足1平方米的微生境,微生境的存续依赖0.1–10公顷的斑块格局,斑块之间的连通依赖10–1000平方公里的景观基质,而区域群落的命运最终系于上万平方公里以上的气候与地质背景。麻烦在于尺度之间不是简单加总,而会相互放大——土壤种子库中深休眠种子的占比,可能在斑块尺度有机质水平与景观尺度降水变率的共同作用下出现断崖式下跌。只在一个尺度上使劲的保护项目,往往在另一个尺度上被抵消。
第二条原理是数据回流。常见的失败模式是"划了保护区就翻篇":边界划定之后再无种群动态数据;种子入库之后从不复检发芽率。一个合格的闭环要求每个技术动作都产生数据,数据又反过来修正下一个动作。以报春苣苔Primulina tabacum的迁地保育为例:入圃时即完成全基因组重测序留档,作为遗传基线;此后逐年记录叶绿素荧光Fv/Fm作为生理健康代理指标;每三年抽测库存种子的千粒重与发芽率;全部数据汇入Leslie种群矩阵模型,推算有效种群大小N_e的走向。一旦模型给出N_e < 50且连续两年的预警,预案自动启动——赴野外补充采集三个地理居群的种子,与园内材料做控制杂交。采集、监测、建模、干预、再监测,环环相扣,没有一步靠感觉。
三、技术框架:空间、时间、遗传三轴定位
把所有保护工具放到一个三维坐标系里检视,位置由三条轴共同决定:在哪里做(空间轴)、什么时候做(时间轴)、保住什么(遗传轴)。
图 保护工具箱三维坐标系
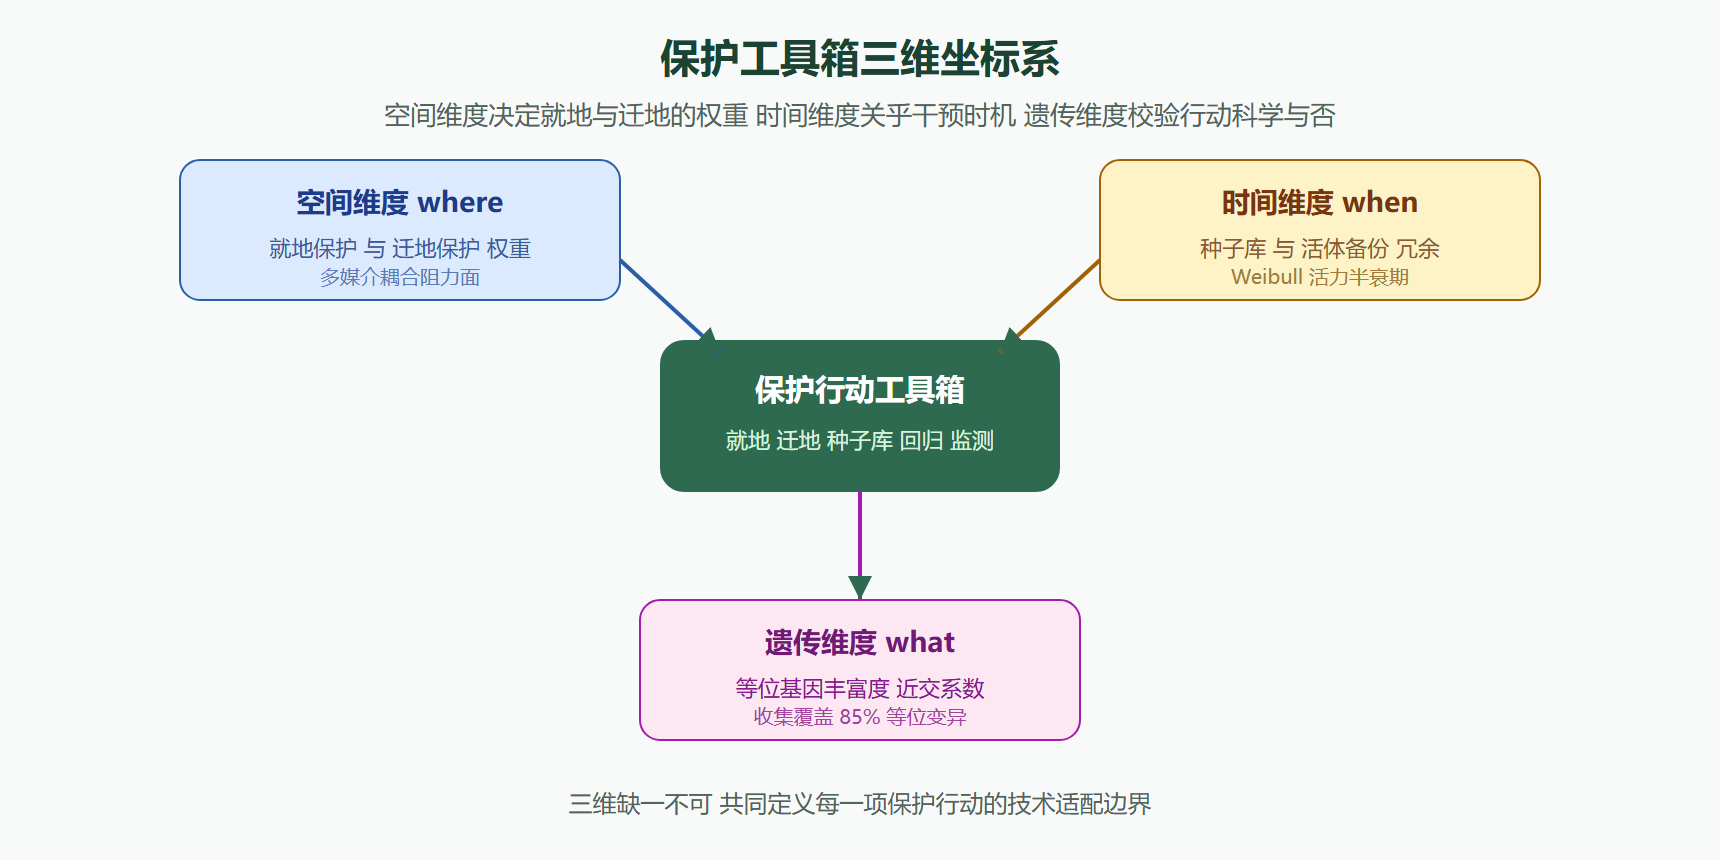
空间轴上,就地与迁地两种策略需要动态配比。就地保护之所以不可替代,是因为传粉者、食草动物、根际微生物这些协同演化的"配角"只能留在原地。但它的技术短板很明确:连通性评估太粗糙。常用的最小费用路径(MCP)廊道设计大多按单一动物类群的成本面计算。西南山地的一项杜鹃属Rhododendron研究发现,按哺乳动物移动成本画出的廊道,会漏掉约73%的鸟类实际传播路径。改进方向是给同一幅景观栅格叠加多套阻力值(R_{bird}, R_{wind}, R_{ant}),借助生态位因子分析(ENFA)确定各传播媒介对植被、坡度、人为干扰的敏感权重,再合成加权阻力面。
时间轴上,要直面迁地保存的寿命问题。种子库在−18℃至−20℃的干燥冷存只能延缓、不能阻止衰老。多数温带草本种子在此条件下的活力半衰期t_{1/2}约20–80年,衰减轨迹可用Weibull分布刻画:
t) = \exp\left[-\left(\frac{t}{\lambda}\right)^k\right]$$ $\lambda$是尺度参数,可理解为平均寿命;$k$是形状参数,$k>1$意味着衰退在加速。全球种子库的监测记录显示,约38%的豆科物种$k$值明显超过1.5,这类材料必须缩短复检与再生周期。对它们,单一种子库不够,需同时配置植物园活体备份与组培快繁线,在时间维度上做冗余。 **遗传轴**是所有方案最后的试金石。IUCN《植物迁地保育指南》(2021)设定了两条硬指标:活体收集应覆盖目标种至少85%的等位基因变异;采样点之间的距离须大于基因流的特征距离($d_{gene\ flow} = \sigma^2 \cdot t$,$\sigma$为单代扩散标准差,$t$为世代时长)。换算成实操:云南榧树*Torreya fargesii*世代长约20年,采样点间距应超过5 km;一年生的蔊菜*Rorippa indica*则500 m即可。不看这条轴的"广泛收集",本质上是有偏抽样,收集越多偏差越重。 --- ### 四、关键组成部分:五个咬合的齿轮 整个体系由五个模块构成,彼此如齿轮咬合,任何一处打滑都会拖垮全局。 1. **动态评估基座**。骨架是IUCN标准,但要允许本地参数修正。中国特有种*Changnienia amoena*的AOO不足2 km²,按标准即属极危(CR);而遥感解译进一步显示其栖息地破碎化指数(PCI)高达0.87,远超同区域濒危种约0.42的平均水平。这条附加信息把它推入"优先拯救类",直接触发栖息地连通专项——评估数字在此转译成了工程任务。 2. **空间智能平台**。整合高分辨率卫星影像、LiDAR地形产品、数字化土壤图与公民科学记录(如iPlant中国植物图像库),组成适宜性实时推演引擎。山火发生后,平台可在两小时内给出未来三年各功能群(乔木、灌木、草本、附生)再生潜力的热力图,据此排定清淤、补播与防火隔离带的优先次序。 3. **三库一体的保存网络**。植物园活体库、低温种子库、液氮基因库各有寿命曲线,单独建库等于单点故障。上海辰山的做法是同一份野外材料(如*Pseudotaxus chienii*枝条)三路分存,共享一个标本号;任何一库发出活力预警,系统即向另外两库派发补充采集工单。 4. **社区共管接口**。高黎贡山的傈僳族村民能凭传统知识指出红豆杉*Taxus wallichiana*的三种伴生指示植物,精度超过遥感分类。项目组把巡护轨迹、物候笔记与采集口述史结构化录入GIS,用于保护区边界微调与监测样线布设。技术方案由此获得了当地社会的认可,而不是外来强加。 5. **政策与市场的换算器**。浙江丽水试点"生物多样性保护信用贷":农户保留田埂野花草带、采用生态种植,银行即以地块维管植物Shannon-Wiener多样性指数$H'$为授信参考,$H' > 2.5$可获约50个基点的利率优惠。风控模型直连县域植物多样性本底库,生态绩效第一次有了金融口径。 --- ### 五、主要应用模式:危机响应让位于韧性培育 实践中存在两种范式。危机响应型盯着单个物种,短期投入巨大。某省十年间为珙桐*Davidia involucrata*投入逾亿元:建苗圃、装红外相机、配专职护林员,株数确实从47升到213;但遗传监测给出另一份成绩单——等位基因丰富度$A_R$下滑12%,近交系数$F_{IS}$爬到0.31。数量上赢了,种群质量输了。原因无他:这种模式把植物当作被抢救的物件,而不是仍在演化的主体。 韧性培育型范式换了三个支点:过程导向、系统单元、适应性标尺,并分三个层次展开。 - **修过程,而非复原植被**。浑善达克沙地对*Artemisia ordosica*的保育放弃了全面禁牧,改用可控轮牧——羊群踩踏把种子压入沙土,幼苗定居率提高了3.2倍。会借用自然扰动的方案,胜过与自然较劲的方案。 - **在景观里"接线"**。武夷山国家公园用机载激光雷达找出37处廊道窄颈,选其中12处做微生境嫁接:道路涵洞内壁植入本地蕨类孢子囊与苔藓基质,顶部加装雾化喷淋。原本隔绝的两片常绿阔叶林,由此变成桫椤*Cyathea spinulosa*孢子可以穿越的通道。 - **给未来做预演**。基于CMIP6情景,华东2070年最干月降水预计减少22%。天目山植物园据此沿海拔设立气候梯度实验林:对照、−15%降水、−30%降水、+2℃、+4℃五个处理区,跟踪12种珍稀植物的气孔导度、木质部栓塞与繁殖分配。数据直供国家林草局的气候适应性决策系统,为日后保护区扩界调整提供实证依据。 --- ### 实操:Weibull 存活模型拟合种子库寿命数据 第三节提到的 Weibull 衰减曲线,可用一行 scipy 代码对复检发芽率数据完成拟合: ```python from scipy.optimize import curve_fit import numpy as np def survival(t, lam, k): # 种子活力存活函数 P(t) return np.exp(-(t/lam)**k) years = np.array([0, 10, 25, 50, 75]) # 储存年限 germ = np.array([0.98, 0.93, 0.81, 0.55, 0.22]) # 实测发芽率 (lam, k), _ = curve_fit(survival, years, germ, p0=[60, 1.5]) print(f"尺度参数 λ={lam:.1f} 年, 形状参数 k={k:.2f}") print("结论:", "加速衰退型, 须缩短复检与再生周期" if k > 1.5 else "近似线性衰退") ``` 拟合出的 k 值一旦超过 1.5,这份材料就该被标记为"高风险库存",自动进入加急复检队列——模型直接驱动管理动作。 ### 实操:Leslie 矩阵推演迁地种群的有效大小走势 ```python import numpy as np L = np.array([[0.0, 12.5, 38.0], # 幼苗/成株/老株 三龄级繁殖力 [0.18, 0.0, 0.0], # 幼苗存活并转入成株的概率 [0.0, 0.86, 0.53]]) # 成株与老株的存活率 n = np.array([150, 60, 25]) # 当前圃内各龄级个体数 for year in range(10): n = L @ n print("十年后龄级结构:", n.round(0), "总计:", n.sum().round(0)) ``` 若推演出的总量或某龄级持续萎缩,即触发第三节所述的野外补充采集预案——数字先行,动作随后,闭环就此合拢。 一张分布图是物种写给地质纪年的信,一段基因序列是亿万年筛选留下的底稿,一片群落结构是生态健康当期的化验单。生物多样性保护实践体系,就是人类学着读懂这些信息、并据此行动的制度化努力。它既不该是煽情的悲情动员,也不是技术乐观主义的独角戏:它要求从业者蹲得下去看清一株兰花的菌根网络,也站得起来望得见整个季风区的气候变化。当EOO的收缩不再被当作地图上的一道褪色,而被读作物种战略纵深的坍塌;当温室里一株幼苗的荧光参数不再只是生理读数,而被视为其种群潜力的实时仪表——保护这件事,才算真正从道德义务变成了文明能力。 而这套体系永远没有"竣工"的一天。植物用根固定土地、用花粉联通季节、用种子封存未来,它们自己的生命史,就是一部持续校准、从不交卷的实践记录。