5.3 气候变化响应与适应性管理
5.3 气候变化响应与适应性管理
植物对气候变化的响应可概括为四条出路:物候调整、分布迁移、局域适应、局部灭绝。适应性管理则是在迁移速度赶不上变暖速度时,人为介入辅助迁移、 assisted gene flow 与动态保护区网络的一套新范式。
学习目标
阅读完本节,你应当能够:
- 举出物候提前与树线上升的实测证据;
- 解释"迁移滞后"及其与扩散能力的矛盾;
- 评估辅助迁移的收益与风险;
- 说明保护区静态布局为何需要动态化。
一、四条实测证据线
物候提前是最稳健的信号。欧洲物候观测网数十年记录显示,春季展叶与始花平均每十年提前 2–5 天;北京玉渊潭的山桃花期相比 1980 年代提前约一周以上。物候提前未必是坏事,麻烦在于错配:橡树展叶提前,以嫩叶喂养幼虫的蛾类同步提前,而以此二者为食的候鸟迁徙时间却由光周期控制、几乎不动——食物链上下层用不同的"时钟",脱节由此产生。
分布迁移的证据来自山体与极地两端。欧洲阿尔卑斯与北美落基山的重复调查发现,山地物种分布区平均每十年上移数米到十余米;北半球树线(树木分布的上限)在增温最显著的坡向持续爬升,岳桦、云杉的实生苗出现在三十年前不可能存活的坡位。极地端,灌木灌丛向苔原扩张,改变冻土的反照率与碳通量。
局域适应在分布区内部发生:干旱胁迫加剧的地区,种群向更耐旱的等位基因偏移。局部灭绝则出现在迁移受阻的种群——山顶物种无处再升,峡谷种群被城市隔断。收缩证据最清晰的一类:受全球变暖叠加干旱影响,多个地区的乔木死亡率上升、更新失败。
二、迁移速度的账
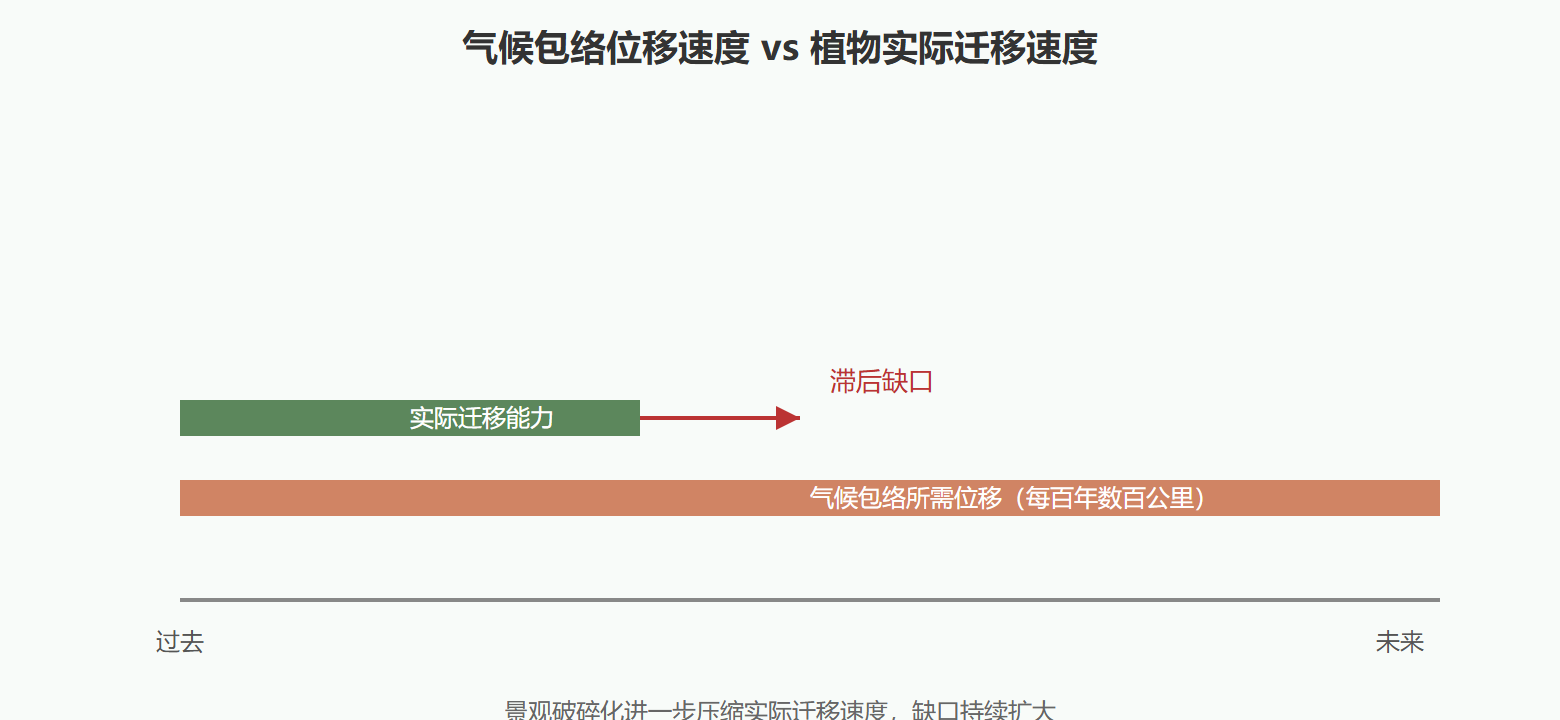
末次冰期后气温每百年上升约 1℃,树以每世纪数十公里的速度追上了气候带。当前变暖速率是其十倍量级,而现代景观被农田与城市切割,扩散走廊骤减。以山杨为例,其种子有效扩散加上种群统计速度,每百年推进约几十公里——面对每百年需北移数百公里的气候包络位移,差距明显。化石花粉记录告诉我们:过去一万年里树"追"上了冰期,是因为当时有连续的荒野;今天没有这个前提。
图 气候包络位移与迁移滞后的对比
三、适应性管理工具箱
- 辅助迁移(assisted migration):把种子人为播撒到"未来的适宜区"。加拿大已在不列颠哥伦比亚的造林中混入来自更暖南部种源的幼苗,让下一代林分提前匹配 2050 年气候。风险是跳出历史分布区的"远距离迁移"可能造成入侵。
- 辅助基因流(assisted gene flow):在分布区内引入耐热耐旱种源,为局域种群补充适应性等位基因,比物种级迁移风险低。
- 动态保护区:静态保护区像固定的相框,气候带移出相框就失效。规划上需要"气候廊道"——沿海拔与纬度梯度串联保护地,让种群有路可走。河岸带与山脊线常被用作设计骨架。
- 修复树种的种源匹配:干旱区造林使用降水相似区的种源而非就近种源,存活率实测更高,这已是多个半干旱国家的造林规范调整方向。
⚠️ 常见坑:只盯着温度匹配选种源。水分可利用性往往是更紧的约束——一个变暖 2℃但降水稳定的区域,可能比变暖 2℃且夏季干旱延长的区域安全得多。种源匹配应使用多变量气候距离,而非单一温度轴。
迁移账目的两种算法
气候包络位移与物种扩散速度的差距,可以用两段代码直接摆上台面:
# 所需速度: 等温线北移速率 vs 山杨实际推进速率 v_climate = 0.45 # km/年, 中纬度增温情景下等温线位移 v_species = 0.15 # km/年, 种子扩散+建群统计速度 gap = (v_climate - v_species) * 100 print(f"每世纪落后 {gap:.0f} km") print(f"追赶所需时间尺度: 约 {300/ (v_species*100):.0f} 个世纪(300km位移)")
差距一旦量化,"要不要人为帮一把"就从立场之争变成了工程问题:落后三百公里,自然追赶需要的时间远长于气候变化的时间表,辅助迁移的收益风险比随之处变化。
种源气候距离的计算则是造林落地时的第一道工序:
种源匹配五步流程(半干旱区造林) 1. 定义目标变量: 年降水, 夏季干旱时长, 最冷月低温 2. 计算气候距离: D = sqrt(Σ(d_i/s_i)^2) i=1..3 3. 筛选种源: D < 1.0 的种源区进入候选 4. 入侵风险评估: 候选种源历史无入侵记录 + 生长慢于本地速生种 5. 混合设计: 60%气候匹配种源 + 30%本地 + 10%远源试验
适应性管理还有一条容易被低估的原则:多样性本身就是缓冲器。混交林在干旱与虫害年份的死亡率系统性低于纯林,因为不同树种的耐受边界、物候节律与根系深度互为备份;农业上品种混栽(如不同抗性基因的水稻品种间作)已被证明能稳定压低病害流行。面对不确定的未来,把赌注押在单一"最优种源"上,反而不如维持一个功能多样的组合——这也是动态保护区规划中刻意保留镶嵌格局的理由。
落地时还要面对一个现实约束:辅助迁移一旦跨出国界,就同时是生态问题与治理问题。种源跨境涉及检疫、主权与责任认定,相关国际准则要求全程留痕、小规模多批次试验、设置可召回的退出机制。技术上有把握的事,制度上未必走得通——气候适应性管理的进度,越来越多地取决于立法与协作,而不只是生态学知识。监测体系是这一切的起点。没有长期物候观测与固定样地的复测数据,管理决策就成了无锚之舟——挪威、日本与中国的物候网均已积累数十年记录,而热带地区的长期监测站仍严重不足,恰恰是响应最剧烈的地带最缺基线。参与式监测正在补位:让护林员、观鸟者与茶园工人按统一规程记录展叶始花期,数据质量虽参差,覆盖密度却是专业队伍无法企及的。适应性管理的第一课,往往不是选工具,而是先建尺子。
本节要点回顾
- 四条出路:物候调整、分布迁移、局域适应、局部灭绝——同一压力下的不同结局。
- 错配风险:植物、昆虫与候鸟时钟不同步,物候提前可能撕裂食物链。
- 迁移滞后:所需位移速度是历史冰期后的十倍量级,景观破碎化雪上加霜。
- 工具箱分层:辅助基因流风险最低,跨区辅助迁移须做入侵评估。
- 动态保护:气候廊道与梯度串联取代静态边界,是保护区规划的新基准。