6.3 多组学融合研究范式
6.3 多组学融合研究范式
6.3 多组学融合研究范式
6.3 多组学融合研究范式:一次测量一个侧面,融合才有全景
要看懂一株植物的完整行为,任何单一层面的数据都不够。本章前两节建立的鉴定与整合方法,解决的是"认出它、放对它";本节要解决的是更进一层的问题——解释它。以珙桐Davidia involucrata春天展开的那对白色苞片为例:这场开花的背后,是上万个基因的协同启停、几百种转录本的消长、几十类次生代谢物的按序装配,根系还在土壤里同步调整布线方式。基因组、转录组、代谢组、形态结构各自拍到这场事件的某个侧面,融合研究的任务是把侧面拼成整体。
先划清一个概念边界:把几张数据表合并导出,不叫融合。真正的融合,要求以一个明确的生物学问题为出发点,沿着系统内各层级之间的互作关系展开,最终指向因果结论而非相关清单。
一、融合的判断标准:数据要能互相作证
城市学家不会因为画齐了道路图、人口图、电网图就宣称读懂了一座城市;植物学家同理。生命系统的功能具有涌现性——整体行为无法由各组分行為简单相加复原。从基因型到表型,中间要经过表观调控、转录动态、蛋白质互作、代谢物流量以及微环境信号等多层中介,任何一层都可能改写最终结果。
由此可以给"融合"定一条操作化的判断标准:一条结论,只有在多个组学层面各自独立给出指向一致的证据时,才值得采信。仍用珙桐举例:若只查明某个MYB转录因子基因座上有一个SNP,这几乎不构成知识;但若该变异同时对应下游类黄酮通路CHS、DFR表达的减弱(r = -0.82,\,p<10^{-5})、花瓣中花青素与木犀草素-7-O-葡萄糖苷含量的下降(q=0.003),并且在野外对应着传粉者访问频次的降低、空间上二者共分布(Moran's I = 0.67)——这三个独立层面的证据互相咬合,才形成一条可以继续检验的分子瓶颈假说。融合研究追求的正是这种"交叉出证"的论证结构。
二、技术框架:三层架构与空间对齐
图 感知—对齐—推演三层耦合架构
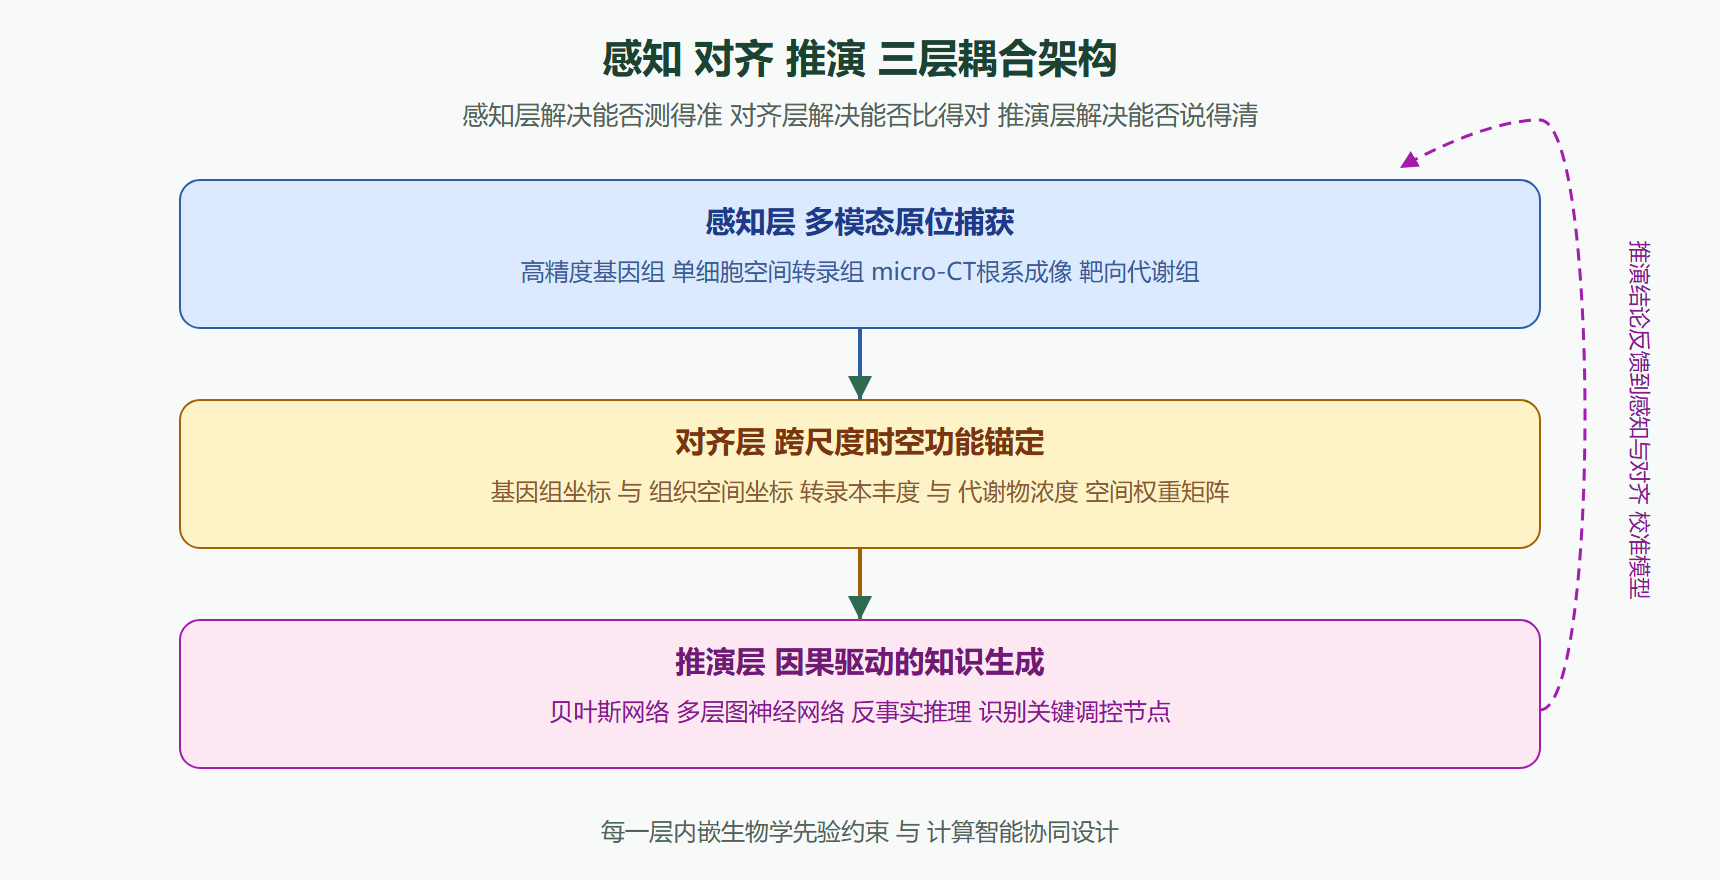
图注:感知层负责测准,对齐层负责对齐,推演层负责说清因果。紫色模块为贯穿各层的计算组件。
架构的要点集中在对齐层。传统流程默认"同一株植物的叶片RNA与叶片代谢物来自同一群细胞",这是一个危险假设:显微与成像证据显示,珙桐幼叶的气孔密度沿叶脉分形结构分布(分形维数D_f = 1.23 \pm 0.04),而类黄酮浓度却沿主脉按指数规律递减([flavonoid] \propto e^{-0.87x})。整叶平均之后再做关联,微尺度的异质性就被平均掉了。补救办法是引入空间权重矩阵\mathbf{W} \in \mathbb{R}^{n \times n},矩阵元素w_{ij}按Wasserstein距离度量第i个转录组采样点与第j个成像微区的相似度,然后把代谢物预测写成:
其中\odot表示逐元素乘积,\boldsymbol{\beta}_T是转录本与代谢物的关联系数向量。经过这样处理,micro-CT之类的成像手段就不再只是形态描述工具,而成为整套组学数据共享的空间坐标系——基因表达的位置、代谢物堆积的位置、根系生长的位置,从此可以使用同一套坐标对话。
三、五个要件
要把孤立的数据库改造成能产出的知识网络,以下五件事缺一不可。
**样本同源。**融合的前提是各层数据来自同一时空切片。对珙桐这类珍稀植物,可行方案是"单株多维"采样:在同一生长季、同一清晨露水蒸发后的时段,从同一野生个体上同步取得根尖(micro-CT与单细胞核)、茎节间(Hi-C与ATAC-seq)、幼叶与成熟叶(分别做空间转录组与靶向代谢组)、不同发育阶段的苞片(全长转录组配非靶向代谢组);样本一律液氮速冻、−80℃冷链,保证RNA完整性RIN高于8.5、代谢物变异系数低于12%。同一遗传背景、同一微环境,混杂因素从源头被锁死。
**语义统一。**基因组输出碱基序列,转录组输出表达矩阵,代谢组输出质谱峰表,成像输出体素矩阵——四套语言互不相通。以Plant Ontology(PO)和ChEBI本体作翻译层是现实出路:micro-CT分割出的侧根原基标注为PO:0009047,其坐标与ARF7表达量挂钩;槲皮素检出量(CHEBI:28939)经KEGG的类黄酮通路(map00941)与CHS、F3H表达对接。语义统一之后,机器才能在"根毛变密"与"磷转运蛋白上调"之间建立等价关系。
**因果过滤。**相关容易,因果难得,需要叠三道筛。第一道用孟德尔随机化:拿与代谢物水平显著关联的eQTL当工具变量,检验转录变化是否真对代谢物起因果作用。第二道查时间先后:珙桐花芽分化期连续取样,用Granger检验(p<0.01)确认SOC1的表达高峰比花青素积累早约72小时。第三道做扰动验证:给离体根段外加脱落酸,看根系分支角的变化、ABF3靶基因集的富集度与ABA-葡萄糖苷含量是否同步移动(三者Pearson r超过0.75)。三道筛全过的关联,才有资格进入机制假说库。
**原位锚定。**成像技术与组学的衔接还有很大潜力。一个成熟流程是:新鲜根系先经碘化钾负染提高组织对比度;micro-CT扫描后按灰度分割三维骨架,逐毫米导出曲率、分形维数、皮层厚度等27项形态参数;再把主轴十等分,让每段对应一张空间转录组切片,EXPANSIN基因家族的表达梯度便能与根伸长区细胞壁松弛程度逐段比对。更进一步,把三维根系模型放进COMSOL Multiphysics,模拟水与硝酸盐在根土界面的扩散场,形态数据就升级成了生理预测的输入项。
**图谱活化。**研究结论应当持续沉淀为可推理的结构。以Gene、Metabolite、CellType、EnvironmentFactor为节点、以调控与响应关系为边的知识图谱(PMOKG)可以承担这个角色:每当一条因果链被验证(例如珙桐NAC072的功能缺失导致根毛减少、磷吸收与生物量随之下降),图谱就自动检索携带同源基因的其他濒危植物、评估其磷利用风险,并把启动子区的保守motif推送给育种数据库作编辑靶点。知识库由静态存档变成会推理的系统。
四、三类应用
**诊断濒危原因。**对127个珙桐个体做全基因组重测序,发现CBF4启动子区一段23bp的缺失在萎缩居群中固定度达92%,而邻近广布的鹅掌楸没有这段缺失。证据链随后补齐:缺失破坏了低温响应元件,寒潮来临时COR15A等抗冻基因无法被激活;4℃处理48小时后,突变个体可溶性糖的积累只有野生型的约三分之一(p=2.1\times10^{-6});茎部导管直径的变异系数放大到2.3倍,冻融栓塞的风险随之陡增。原本笼统的"气候不适",至此可以精确到一条冷驯化通路的断裂,辅助迁移的决策也因此有了分子层面的依据。
**解码根系构型。**秦岭北坡不同海拔的珙桐幼苗样地,micro-CT按月扫描共18个月。常规结论只有一句"海拔越高根越密";融合分析给出的图景是:高海拔植株的侧根分枝角明显更小(约28.3^\circ,低海拔约41.7^\circ),与土壤有效磷含量呈强负相关(r=-0.91);分枝角小的区段LBD16表达量高出2.8倍,且该基因过表达的拟南芥确实长出类似构型;这些根系分泌的苹果酸增加3.5倍,而苹果酸恰恰能促进磷的溶出。一个角度读数,被还原为从基因到生态功能的完整因果链。
**推演干预效果。**把上述所有结果装配成珙桐根系的数字孪生模型:输入个体的关键基因型、实测初始构型、土壤水肥传感数据与CMIP6 SSP2-4.5情景,模型可以模拟幼苗期施用海藻多糖后各环节的响应,并给出三年存活率的预期变化。2023年的田间对照显示,实际存活率提升27.4%,落在模型预测的22–31%区间内。保护决策第一次可以在实施之前先在硅片中彩排。
实操:eQTL 工具变量的孟德尔随机化检验
因果三道筛的第一道,代码骨架不过十几行:
import numpy as np # eQTL作为工具变量Z, 检验 转录本T -> 代谢物M 的因果效应 rng = np.random.default_rng(7) Z = rng.binomial(2, 0.3, 500) # 基因型剂量(已与暴露强关联, F>10) T = 0.4*Z + rng.normal(0, 1, 500) # 转录表达 = 基因型效应 + 噪声 M = 0.6*T + rng.normal(0, 1, 500) # 代谢物受转录因果驱动 beta_T = np.polyfit(T, M, 1)[0] # 观测回归(混杂时会有偏) beta_IV = np.polyfit(Z, M, 1)[0] / np.polyfit(Z, T, 1)[0] # Wald比率 print(f"观测关联: {beta_T:.2f} | 两阶段IV估计: {beta_IV:.2f} | 真值0.60")
IV 估计稳定逼近真值,而普通回归在有混杂时系统性跑偏——第一道筛的意义就在这几行代码之间。
实操:空间转录组与代谢组对齐的最小示例
采样点 叶脉距离(mm) CHS表达(log2) 类黄酮(ug/g) 对齐后的残差 P1 0.8 6.21 184.2 +2.1 P2 2.5 5.08 151.7 +0.8 P3 5.0 3.92 96.5 -1.2 P4 9.0 2.75 58.3 -0.6 整叶平均 -- 4.49 122.7 指数梯度被抹平
末行是警示:整叶混合取样后,沿主脉的指数衰减梯度塌缩成一个均值,微尺度互作随之蒸发——对齐层的价值由这张表直接说明。
回头看,植物的实验室是整片山林、整段地质年代,多组学融合给重返这个实验室的人配的是一副新罗盘:它不包答一切,但保证每个问题被放回系统的真实坐标中;它不替代任何一台仪器,却让每次测量都带着全局意识。当珙桐的苞片再次张开,我们看到的不再只是两片白翼,而是几层分子事件在同一株植物体内的协奏——融合研究的价值,就在于把这场协奏重新写成总谱。