2.3 达尔文:家谱按血缘重排
2.3 达尔文:家谱按血缘重排
本节摘要:1859 年《物种起源》把分类学的目标从"描述相似性"彻底改写为"重建亲缘关系":物种不是神造的独立单元,而是共同祖先不断分叉的产物。从此"像不像"让位于"亲不亲",阶元从静态容器变成演化树上的分支标记。这一站同时要看清那个折磨了系统学半个世纪的问题——形态相似到底算不算血缘证据。
上一站结束时,林奈的金字塔还立在那里。这一站,达尔文来了。1859 年《物种起源》出版,他没有去推倒金字塔的墙壁,而是直接撬开了地板——地板下面没有上帝安置好的七级台阶,只有一棵不断分叉、不断死亡的树。林奈说"生物被分好了类,人类去发现",达尔文说"生物自己长成了这样,人类去还原"。就这一句话,分类学的整个目标函数被替换了。
一、从"存在的地图"到"生命的树"
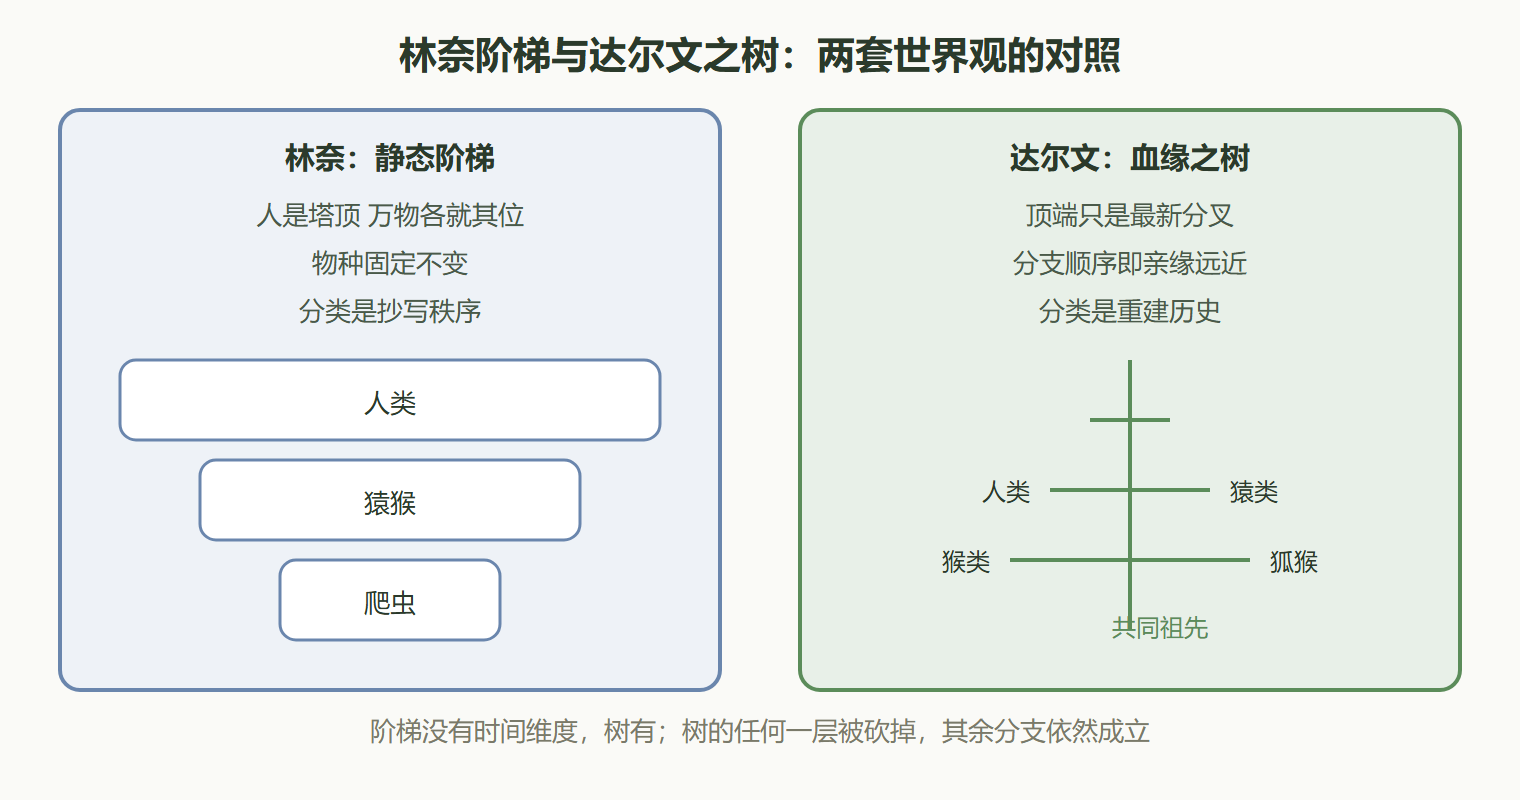
林奈的分类是共时的、空间化的:它描绘的是某一个时刻"世界上有什么",像一张地图。达尔文的分类是历时的、时间化的:它追问的是"今天这些形态是怎么一步步长出来的",像一份家谱。
这个转变带来的第一个直接后果是方向的倒转。林奈时代的分类是从相似性出发往上归拢——把像的放一起,再找像的上一层。达尔文时代的分类是从共同祖先出发往下分叉——所有物种共享祖先,分类的任务是找出分支顺序:谁先分出来,谁和谁是最亲近的姐妹群。相似性不再自证,它必须被翻译成"共享的祖先特征"才有意义。
第二个后果是阶元语义的改写。纲、目、科不再是神定的台阶,而是演化史上特定辐射事件的标记点。种的定义从形态判据滑向"独立演化单元"——虽然这个滑行过程极其缓慢,慢到一百多年后(第 6 章)还在吵。而林奈金字塔本身没有被拆除,它被"演化重写"了:层级保留,含义换成谱系。今天的界门纲目科属种,本质上是在一棵演化树上按分支深度画刻度。
二、最痛的问题:形态相似算不算血缘
理论上,达尔文给了分类学一个新目标;实践上,整整半个世纪系统学家被一个问题卡死:我们靠形态来分类,可怎么知道形态相似是"血缘相似"还是"巧合相似"?
看两个活生生的例子。蝙蝠和鸟类都会飞,翅膀的形状高度相似——但没人会把蝙蝠归进鸟类,因为它的齿式和胎生特征暴露了哺乳动物身份。可如果两群生物连"暴露身份"的特征都趋同了呢?比如沙漠里的仙人掌科的许多成员与非洲大戟科的肉质植物,长得几乎一模一样:都是圆筒状、多刺、少叶——因为它们都适应了干旱环境,独立演化出同款生存策略。如果只凭形态,分类学家会毫不犹豫把它们放进同一个科;可它们的亲缘关系相去甚远,花的结构、乳汁成分、种子形态全都不一样。
欧文(Richard Owen)提出用"同源"与"类似"区分这两类相似:同源是同一个祖先特征的后代(蝙蝠翼与鲸鳍、人手的前肢骨),类似是独立演化出的相似功能(蝙蝠翼与鸟翼)。同源是血缘证据,类似不是。这个区分在逻辑上无懈可击,但操作起来极难——你怎么知道眼前这个相似是同源还是类似?答案在当时只能靠"综合判断",而综合判断意味着主观加权:这个专家的权重和那个专家的权重不一样,分类结论就不一样。
三、现代综合论:给形态穿上演化语法
真正的缝合要等到 20 世纪中叶的"现代综合论"。孟德尔遗传学与群体遗传学给自然选择补上了微观机制,古生物学的过渡化石给演化提供了时间坐标,比较解剖与胚胎学的数据被重新放到演化透镜下——分类学这才拿到一套统一的解释语法:相似性,只有放进"共同祖先与分歧时间"的双坐标里,才具有亲缘意义。
这套语法直接催生了今天的三大系统学流派之争的源头。数值分类学想用统计距离取代主观判断,把所有性状等权处理——它反对主观加权,却因为忽略演化历史而走偏;支序系统学以"共享衍征"(同源衍生特征)为唯一亲缘证据,把判断推向高度形式化,它后来成为主流,但它的"简约原则"(演化步骤越少越可信)本身也是一种哲学选择。这三条路的分歧,本质上是把"形态相似算不算血缘"这个问题换成了更尖锐的形式——这也是第 4、5 章的技术内容,本节先把问题立起来。
四、完整案例:鲸到底归谁家
背景:18 世纪前的博物学家把鲸和鱼放在一起,理由是"都是水生的、长得像";林奈凭哺乳特征把它放进哺乳纲,这在当时已算胆大。操作:20 世纪系统学家用形态特征重建鲸的亲缘,多数证据指向它与食肉类(如熊)较近,理由是牙齿和骨骼的相似。结果:20 世纪 90 年代分子数据加入后,鲸被确认与河马互为姐妹群,两者同属偶蹄目分支——鲸的祖先竟是四足有蹄的陆地动物,演化史上经历了一次"返回海洋"的剧烈转型。解读:这个翻案堪称形态分类的经典失败案例。牙齿相似(类似)骗过了几代专家,而分子证据(同源的基因序列)给出了与生态习性完全无关的亲缘结论。它证明了一件事:形态证据在深层亲缘判定上存在系统性盲区,这不是补几个特征就能弥补的。变式:回到 LN-2026-0717,那只蛾的铜绿横带就相当于"鲸的流线型身体"——它可能只是适应环境的巧合相似。这正是本案必须引入分子证据的理由。
五、达尔文遗产的双面性
达尔文给的遗产,正面是"亲缘可检验":分类从此有了可证伪的假说结构,任何归类都必须解释"凭什么说这两群是姐妹群"。反面是"证据焦虑":如果形态不可靠,那什么可靠?这个问题在分子革命之前悬了整整一个世纪,无数系统学家带着这个焦虑做分类,也因此不断制造出后来被推翻的结论。理解这份焦虑,你才能理解为什么今天的分类学家对"单一证据"如此警惕——第 5 章的支持度评估、第 6 章的整合界定,都是在给这份百年焦虑找出口。
本节要点回顾
- 达尔文把分类目标从"描述相似"改成"重建亲缘",方向从归拢改成分叉;
- 阶元没有消失,而是被演化重写:层级保留,含义换成谱系;
- 同源与类似之分是逻辑突破,但操作依赖主观加权,埋下半个世纪的争论;
- 鲸归偶蹄目的翻案证明形态在深层亲缘判定存在系统性盲区;
- 达尔文遗产双面:亲缘可检验(正),证据焦虑(反),至今驱动着方法演进。
下一站进入分子时代——DNA 序列登场,"指纹"取代"长相",查亲缘第一次有了接近终极的证据。