2.1 DNA病毒域
2.1 DNA病毒域
本节摘要:DNA 病毒域按基因组是双链还是单链,分成 Duplodnaviria 与 Monodnaviria 两大支。双链 DNA 病毒自带 DNA 聚合酶,复制相对自主,疱疹病毒、痘病毒、噬菌体都在这一支,它们还掌握了潜伏感染与溶原周期这套"存档待机"的本事;单链 DNA 病毒把基因组压到几个 kb,靠宿主酶先把单链补成双链,再用滚环复制大量产子代,细小病毒、腺相关病毒是代表。理解这两条路线的差别,既关系到病毒怎么致病、怎么潜伏,也直接决定腺相关病毒这类载体为什么适合做基因治疗。
先说结论
阅读完本节,你应当能够:
- 说清双链 DNA 病毒与单链 DNA 病毒在复制自主性上的根本区别
- 解释疱疹病毒的潜伏感染与噬菌体的溶原周期各自是怎么回事
- 描述单链 DNA 病毒"先补双链、再滚环复制"的两步走策略
- 举出至少三个 DNA 病毒被改造成疫苗载体或基因治疗载体的例子
一、先分清两路人马:双链还是单链
给 DNA 病毒分类,第一眼不看它长什么样、感染谁,而看它的基因组是双链 DNA 还是单链 DNA。国际病毒分类委员会把这两类分别放进两个"域":双链 DNA 病毒大多归入 Duplodnaviria,单链 DNA 病毒归入 Monodnaviria。前缀 duplo 是"双倍",mono 是"单一",指的就是遗传物质是两条互补链还是一条单链。
这个区分不是抠字眼,它背后是两条完全不同的生存路线。双链 DNA 和宿主细胞里的基因组长得一样,病毒可以直接把宿主那套复制机器认作"自己人";单链 DNA 则是个半成品,必须先把单链补成双链,才能进入正常的复制流程。所以两条路线对宿主的依赖程度差得很远——一个偏向自己动手,一个偏向借力。
要判断一个 DNA 病毒走哪条路,看它基因组的结构就行。疱疹病毒、痘病毒、腺病毒、乳头瘤病毒,以及感染细菌的噬菌体 T4、λ 噬菌体,基因组都是双链 DNA。细小病毒、腺相关病毒、环状病毒、植物里的双生病毒,基因组则是单链 DNA。记住这个阵营划分,后面的复制机理就都好套。
二、双链 DNA 病毒:自己带施工队
双链 DNA 病毒最大的底气,是它大多自带一套复制酶。疱疹病毒进入细胞核后,不靠宿主 DNA 聚合酶,而是用它自己编码的 DNA 聚合酶来复制基因组。这套酶和宿主的不同,正好成了抗病毒药的靶子——阿昔洛韦这类核苷类似物,会被病毒的胸苷激酶优先磷酸化,卡在病毒聚合酶上,对正常细胞影响却小得多。
"自己带施工队"还体现在痘病毒身上。多数 DNA 病毒要进细胞核才能复制,痘病毒偏不,它在细胞质里就能搭起自己的"病毒工厂",几乎整套转录复制机器都自己背着。这也是它当年能被做成天花疫苗、现在又常被用作疫苗载体的原因之一——它不碰宿主细胞核,整合进宿主基因组的风险天然更低。
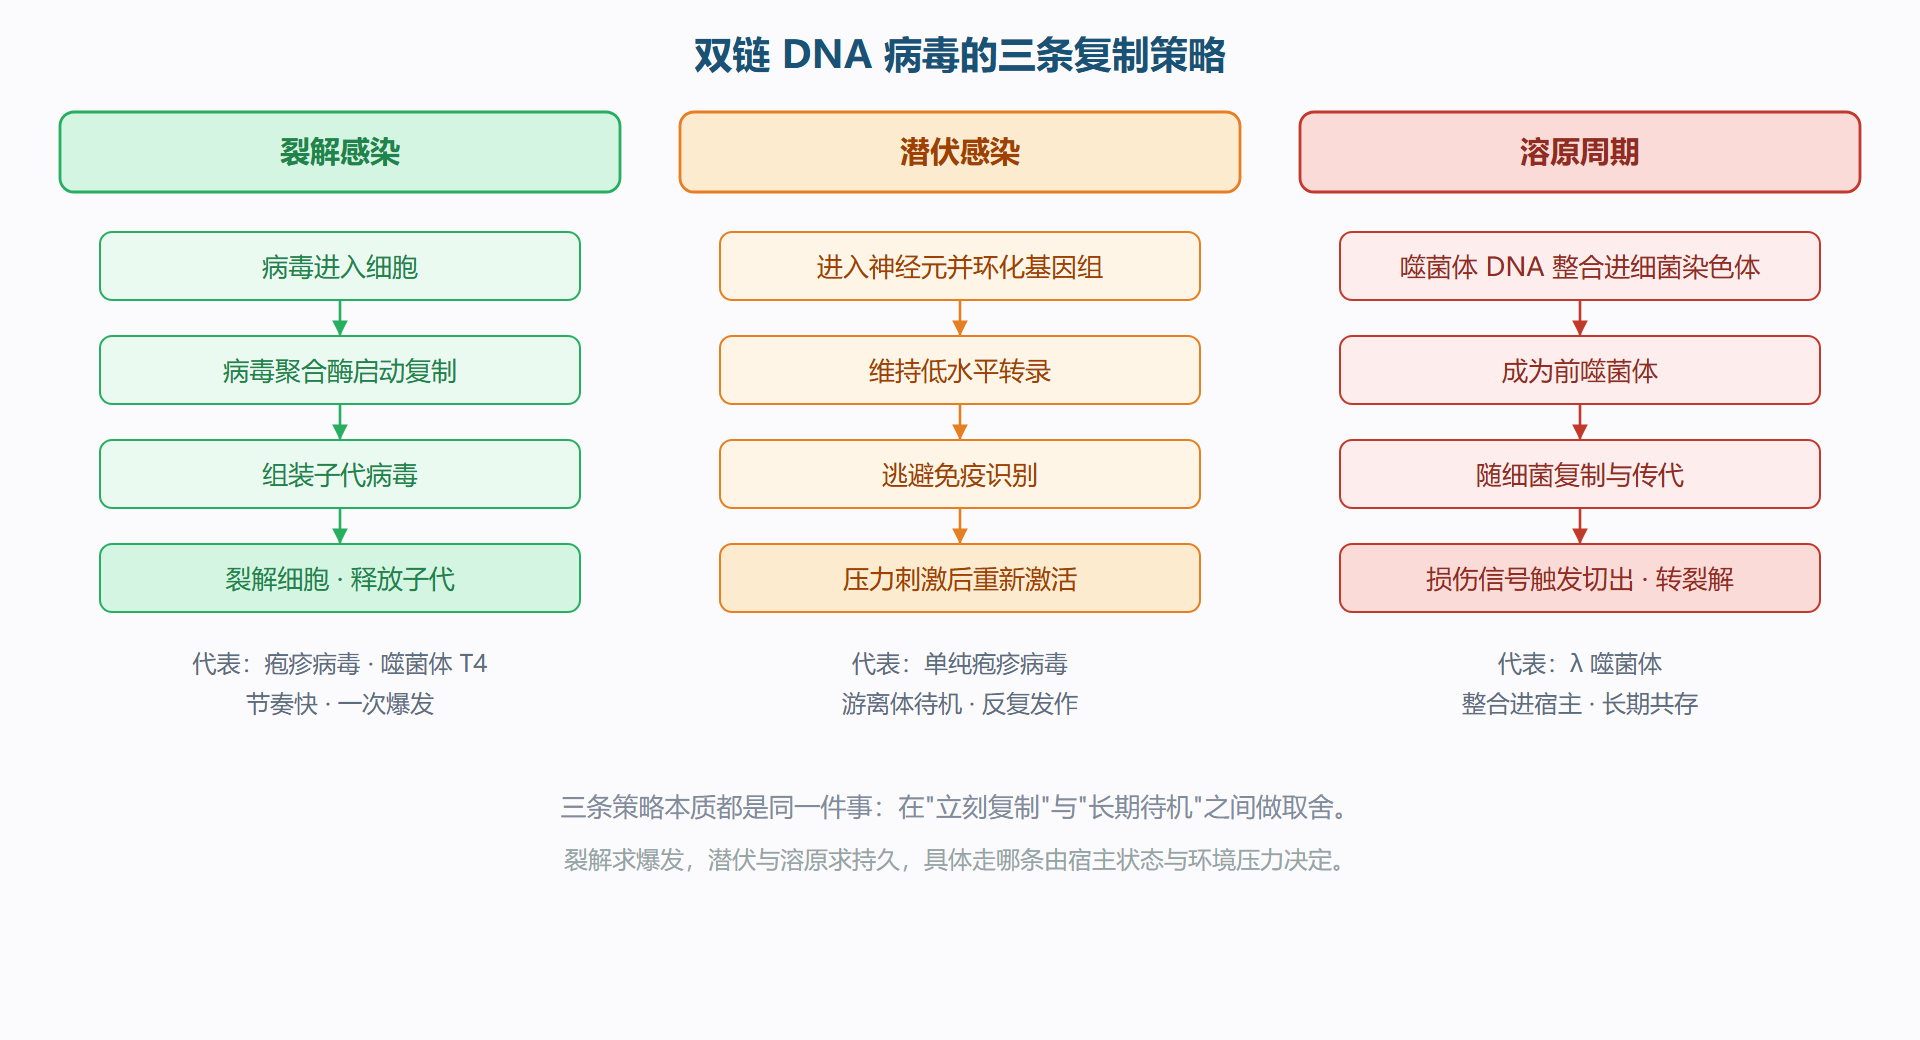
双链 DNA 病毒里最值得琢磨的,是它那套"裂解与潜伏"的开关。以单纯疱疹病毒为例,它感染口唇或生殖器后,病毒粒子裂解细胞、大量释放,这是裂解感染;但它还能顺着神经轴突逆行钻进三叉神经节或骶神经节,在那里把基因组环化、只维持极低水平的转录,进入潜伏状态。潜伏期里几乎没有病毒蛋白表达,免疫系统拿它没办法,等宿主免疫力下降、受凉、劳累,潜伏基因组才重新激活,沿神经回到皮肤再发一轮疱疹。这个"平时藏、压力大时跳出来"的节奏,是疱疹病毒终身携带、反复发作的根子。
感染细菌的 λ 噬菌体走的是另一条"待机"路线,叫溶原周期。它感染大肠杆菌后有两种选择:要么立刻裂解宿主,把子代噬菌体放出去;要么把自己的 DNA 整合进细菌染色体,变成一段"前噬菌体",跟着细菌一起复制、传代,宿主活得越久它传得越多。只有当细菌受到紫外线、DNA 损伤等信号刺激时,前噬菌体才从染色体上切出来,重新进入裂解。裂解是"打一枪就跑",溶原是"住下来慢慢分账",两种策略对应不同环境压力——宿主多的时候裂解划算,宿主少、环境恶劣的时候溶原更稳。
三、单链 DNA 病毒:只带图纸,借房东工具
单链 DNA 病毒是另一副性子。它的基因组往往只有几个 kb,细小病毒科普遍在五 kb 上下,而疱疹病毒动辄上百 kb。基因组压这么小是有代价的——它塞不下完整的复制酶,只能把最关键的工序外包给宿主。
细小病毒的复制分两步。第一步,单链 DNA 进入细胞后,被宿主 DNA 聚合酶补成双链,形成所谓的复制型中间体,这一步完全借宿主的酶;第二步,病毒自己的 NS1 蛋白(也叫 Rep 蛋白)上场,它在复制起点切一刀,启动滚环复制,像复印机一样沿着环状模板一圈圈往外吐单链拷贝,再切下来包装成新病毒。NS1 同时充当位点特异性核酸酶和 DNA 解旋酶,是单链 DNA 病毒少数必须自己编码的关键蛋白之一。
滚环复制的效率很高,代价是它对宿主细胞周期有依赖。细小病毒普遍要在细胞进入 S 期、宿主 DNA 合成机器开动时才能高效复制,所以它更偏爱分裂活跃的细胞。这也解释了腺相关病毒的一个特性——它是一种依赖腺病毒或疱疹病毒"帮忙"才能完整复制的细小病毒,本身致病性极低,但因为能定点、长效地待在细胞里,反而成了基因治疗里最常用的载体。
四、两条路线并排看
两条路线可以画成一张分叉图。病毒进细胞后,先看基因组是双链还是单链,再决定走哪条道:
把两条路线摆在一起,差别一目了然。
| 维度 | 双链 DNA 病毒 | 单链 DNA 病毒 |
|---|---|---|
| 代表成员 | 疱疹病毒、痘病毒、噬菌体 | 细小病毒、腺相关病毒、环状病毒 |
| 基因组大小 | 较大,几十到上百 kb | 很小,普遍几个 kb |
| 复制酶来源 | 多为病毒自带 | 主要借宿主,仅 NS1 等少数自编码 |
| 复制方式 | 常规 DNA 复制,或细胞质内自成工厂 | 先补双链,再滚环复制 |
| 对宿主周期的依赖 | 相对较低 | 较高,偏向分裂期细胞 |
| 典型生存策略 | 裂解、潜伏、溶原 | 快速增殖、依赖辅助病毒 |
这张表里最值得记的一点:复制越自主,基因组往往越大,装备越重;复制越依赖宿主,基因组就越小,走得越"轻"。病毒不是越大越厉害,而是在"重装备"和"轻骑兵"之间各有取舍。
五、从病原体到工具箱
理解 DNA 病毒的两条路线,不只是为了防病。这一支病毒正在被大量改造成工具。
腺相关病毒是单链 DNA 病毒的成员,本身几乎不致病。去掉它的复制基因、塞进治疗基因,再把衣壳做点定向改造,它就能把基因送进特定组织,而且不整合进宿主染色体、免疫反应弱。脊髓性肌萎缩症的一次性基因疗法,就是靠腺相关病毒 9 型把正常的 SMN 基因送进运动神经元。选择它而不是双链 DNA 病毒做载体,核心就是看重它基因组小、致病性低、载体设计简单。
痘苗病毒走的是疫苗路线。它作为双链 DNA 病毒,基因组大、能装下外源抗原基因,又在细胞质复制、不碰宿主染色体,安全性好。改良型痘苗病毒 MVA 就是删掉了一部分宿主范围基因后得到的减毒株,被广泛用作新冠、猴痘等疫苗的载体平台。
还有一个意外收获。现在基因编辑里无处不在的 CRISPR 系统,最初就是在细菌与噬菌体的攻防里被发现的——细菌用 CRISPR 记录入侵噬菌体的 DNA 片段,再靠 Cas 蛋白去切割再次入侵的双链 DNA。噬菌体这边又演化出 anti-CRISPR 蛋白来反制。这场围绕双链 DNA 的军备竞赛,最终变成了人类手里的基因剪刀。
⚠️ 常见坑:别把"潜伏感染"和"溶原周期"混为一谈。前者发生在疱疹病毒与真核宿主之间,基因组环化后以游离体形式待在细胞核里;后者发生在噬菌体与细菌之间,噬菌体 DNA 是整合进细菌染色体里的。一个是"租房待机",一个是"户口迁进人家家谱"。
💡 关键直觉:看一个 DNA 病毒,先问它"复制酶是谁家的"。自带复制酶的偏向自主、装备重;借宿主酶的偏向轻巧、依赖强。这个判断几乎能预判它后面的致病性、潜伏能力和做载体的潜力。
图:DNA 病毒复制策略对比
六、载体选型:一张工程账本
把 DNA 病毒当工具,本质是在做工程取舍,账要一笔笔算。腺相关病毒用得多,是因为它把几项指标平衡得好:基因组小、本身不致病、免疫原性低,重组载体又几乎不整合进宿主染色体,长期表达的安全性高。但它不是没有短板,最大的硬限制是容量。腺相关病毒的单链基因组本身约 4.7 kb,塞进治疗基因再刨去两端的反向末端重复序列,能装的货物只有 4 kb 出头。碰到更大的基因就装不下,要么拆成几段、靠细胞内重组再拼回来,要么干脆换载体,这条路至今没有完美解法。
还有两个实际坑。一是双链化延迟:单链 DNA 进细胞后要先补成双链才能表达,基因要等上一阵子才开动;自互补型载体能绕过这一步,代价是容量再砍掉一半。二是预存抗体:不少人感染过天然的腺相关病毒,体内早有中和抗体,一针载体打进去可能直接被清掉,所以治疗前要筛抗体,必要时换血清型或做免疫抑制。
对比着看,慢病毒载体走的是另一条路——它主动整合进宿主基因组,适合需要随细胞分裂长期保留基因的场景,但整合位点随机,有插入致突变的隐忧。腺相关病毒和慢病毒的选择,本质是在"不整合但可能丢"和"整合但可能插错"之间做权衡。理解单链与双链两条复制路线,再回头看这张账本,取舍就都有了出处。
重点提炼
- 两大支划分:DNA 病毒域按基因组结构分为双链 DNA(Duplodnaviria)与单链 DNA(Monodnaviria),前者复制偏自主,后者偏依赖宿主。
- 双链复制自主:疱疹病毒、痘病毒自带复制酶,痘病毒甚至能在细胞质里复制,不碰宿主染色体。
- 裂解与潜伏:疱疹病毒在神经元里以低转录状态潜伏,压力刺激后重新激活,这是它反复发作的根子。
- 溶原周期:λ 噬菌体把 DNA 整合进细菌染色体成为前噬菌体,随宿主传代,损伤信号触发后才转回裂解。
- 单链两步复制:细小病毒先把单链补成双链,再靠 NS1 蛋白启动滚环复制,高效但依赖细胞周期。
- 工具价值:腺相关病毒做基因治疗载体,痘苗病毒 MVA 做疫苗载体,CRISPR 起源于噬菌体与细菌的攻防。
下一节我们把镜头转向 RNA 病毒域——那里的基因组自己就是信息,靠一个易错的 RNA 聚合酶不断制造变异,麻烦和机会都比 DNA 病毒更直接。