2.2 RNA病毒域
2.2 RNA病毒域
本节摘要:RNA 病毒域(Riboviria)的共同点是靠 RNA 依赖的 RNA 聚合酶(RdRp)来复制基因组,按"基因组能不能直接当信使"可分成四类:正链 RNA 到手就能翻译,负链 RNA 要先转录成正链,双链 RNA 关在衣壳里复制,逆转录病毒则把 RNA 抄回 DNA。这个域是新发传染病的主力,新冠、流感、艾滋病、脊髓灰质炎都在其中。它的看家本领是 RdRp 低保真带来的高突变率——这一方面让病毒快速逃逸疫苗和药物,另一方面又成了 mRNA 疫苗、致死诱变药物等新工具的起点。
核心问题
阅读完本节,你应当能够:
- 说清 RNA 病毒域靠什么共同机制复制,以及它为什么比 DNA 病毒更容易突变
- 区分正链、负链、双链、逆转录四类 RNA 病毒,并各举一个代表成员
- 解释流感病毒的"分段重配"和抗原漂移为什么让疫苗年年要更新
- 说明准种和错误阈值这两个概念如何解释 RNA 病毒的适应性与脆弱性
- 举出至少两个从 RNA 病毒机制里长出来的疫苗或药物思路
一、高突变是从哪来的
RNA 病毒和 DNA 病毒最直观的区别,不在大小,而在"犯错率"。DNA 病毒借宿主的 DNA 聚合酶,这套酶自带校对功能,复制一个碱基错配的概率大约是一亿分之一;RNA 病毒用的 RdRp 大多没有校对,错配率一下跳到万分之一上下。差了四个数量级,后果很直接:一个 RNA 病毒基因组复制一遍,几乎必然带上几个新突变。
这听着像是进化失误,其实是 RNA 病毒活下来的本钱。病毒在宿主体内面对的是免疫系统的围剿,一个基因组序列太"干净"反而危险——只要宿主记住它、清掉它,整个种群就没了。高突变让病毒每一代都产出一批略有差异的个体,形成一个"准种"云,免疫系统刚认得昨天的样子,今天病毒已经换了个样。所以对 RNA 病毒来说,错得恰到好处是种生存策略,错得太多才是灾难。
这个"恰到好处"有个边界。基因组越长,能容忍的每代突变就越少,否则致命错误会累积到整个种群崩溃。RNA 病毒的突变率乘上基因组长度,长期维持在一个临界值附近——再高一点就灭绝。这个平衡解释了为什么 RNA 病毒基因组普遍偏小,也解释了为什么用"致死诱变"药物把突变率逼过临界点,就能把病毒整群压死。
这张图里藏着 RNA 病毒的全部张力:变异既是它逃逸免疫、持续适应的燃料,也是它随时可能把自己烧光的风险。理解这个临界点,就理解了为什么"适度出错"是 RNA 病毒的核心生存法则。
二、正链 RNA 病毒:到手就能读
正链 RNA 病毒的基因组本身就相当于一条信使 RNA。它进细胞后不用先转录,直接套上宿主核糖体就能翻译出蛋白,包括它最急需的 RdRp。这个"即插即用"让它能极快地启动感染。冠状病毒、脊髓灰质炎病毒、丙型肝炎病毒、肠道病毒 71 型都走这条路。
它的精巧之处在"一稿多用"。正链 RNA 病毒基因组里,下游的结构蛋白基因平时不被翻译,病毒先让 RdRp 抄出一条反义链,再从反义链上抄出几段较短的亚基因组 RNA,专门用来表达刺突、衣壳这些结构蛋白。用一套基因组按需抄出多段信使,就像一卷胶片上同时刻着多部片子,播放到哪一段放哪一段。这个亚基因组机制,也是后来 mRNA 疫苗设计时参考的思路之一。
正链 RNA 病毒还有个特点:基因组两端常带着帽结构和 polyA 尾巴,伪装得和宿主信使 RNA 几乎一样,好让核糖体毫无防备地开工。mRNA 疫苗做的正是同一件事——把一段人工设计、经过修饰的正链 RNA 送进细胞,让它借宿主的翻译机器生产抗原蛋白,激发免疫反应。可以说,mRNA 疫苗在本质上就是一条被人为驯化了的正链 RNA。
三、负链 RNA 病毒:反写的稿子
负链 RNA 病毒的基因组是反义链,不能直接翻译,必须先由它自带的 RdRp 抄出一条互补的正链,才能当信使用。所以负链 RNA 病毒必须把 RdRp 一起装进病毒粒子带进细胞,否则一进来就是条读不动的死链。流感病毒、狂犬病毒、埃博拉病毒、麻疹病毒都属这一类。
流感病毒把这套机制玩到了极致。它的基因组是分段的一共八条负链 RNA,每条编一到两个蛋白。八段各自独立,好处是当两种流感病毒同时感染同一个细胞时,这八段可以在子代里重新洗牌组合,这就是"分段重配"。禽流感病毒和人流感病毒在猪体内一碰,可能重组出一个既能在人里传、又带着禽流感抗原的新亚型。历史上几次流感大流行,大多是这种重配搞出来的,而不是靠点突变慢慢磨。
负链 RNA 病毒还有个"抢帽子"的细节。宿主信使 RNA 头上都戴着一顶帽子,细胞靠它识别"这是自己的 RNA"。流感病毒的聚合酶能从宿主信使 RNA 上把帽子切下来,接到自己刚抄出的病毒信使上,让病毒的 RNA 也显得像自己人。这个机制叫抢帽,是它逃避免疫识别的关键一步。
四、双链 RNA 病毒:关起门来复制
双链 RNA 对宿主细胞来说是个危险信号,因为正常细胞里不该有长片段的双链 RNA,免疫系统一看到就拉响干扰素警报。所以双链 RNA 病毒想出了一个办法:把复制这件事关在衣壳里做。
轮状病毒是典型。它有十一段双链 RNA,被层层衣壳包着,最内层衣壳里嵌着它自己的 RdRp。复制时,RdRp 在衣壳内部把负链抄成正链,再通过衣壳上的通道把新合成的正链送出去当信使翻译蛋白,双链本身从不裸露在细胞质里。呼肠孤病毒更直接,它在细胞里圈出一块"病毒工厂",把双链 RNA 的复制和转录都圈在里面,像给危险品搭了个隔离舱。
这套"封闭式复制"牺牲了一点速度,换来了在免疫健全宿主里长期存活的能力。代价也清楚:双链 RNA 病毒的结构普遍更复杂,衣壳要同时承担保护和转运两个任务。轮状病毒引起婴幼儿腹泻,靠的就是这种高稳定结构——它耐得住胃酸,才能在肠道里站稳脚跟。
五、逆转录病毒:把 RNA 抄回 DNA
逆转录病毒走的是最反直觉的一条路:遗传信息本该从 DNA 流向 RNA,它偏要倒着来。人类免疫缺陷病毒(HIV)把两条正链 RNA 带进细胞后,先用逆转录酶把 RNA 当模板抄成 DNA,再把这 DNA 送进细胞核、由整合酶插进宿主染色体,从此变成宿主基因组里一段"前病毒",跟着细胞一起复制传代。
逆转录酶也是个爱犯错的酶,而且它在抄写时还容易从一条模板跳到另一条,造成高频重组。HIV 的重组率甚至比突变率还高,这让它极难被单一药物压住——一种药卡住一个位点,病毒靠重组很快绕过去。这也是艾滋病抗病毒治疗要多种药联用的根本原因。
前病毒一旦整合,就成了"删不掉"的存在。即使药物把血液里的病毒压到测不出,潜伏在静息 T 细胞里的前病毒还留着,随时可能重新激活。艾滋病之所以难根治,难点不在复制快,而在这个整合进基因组、删不掉的阶段。理解这一点,才能明白为什么"功能性治愈"比"彻底清除"现实得多。
六、四类并排看
| 类型 | 复制起点 | 代表成员 | 拿手本事 | 主要麻烦 |
|---|---|---|---|---|
| 正链 RNA | 基因组直接翻译 | 冠状病毒、脊髓灰质炎病毒 | 启动极快 | 基因组相对易降解 |
| 负链 RNA | 先转录成正链 | 流感病毒、狂犬病毒 | 分段重配出新亚型 | 必须自带聚合酶 |
| 双链 RNA | 衣壳内封闭复制 | 轮状病毒、呼肠孤病毒 | 结构稳定、躲过免疫 | 复制速度偏慢 |
| 逆转录病毒 | RNA 抄回 DNA 再整合 | 人类免疫缺陷病毒 | 长期潜伏 | 高频重组、难清除 |
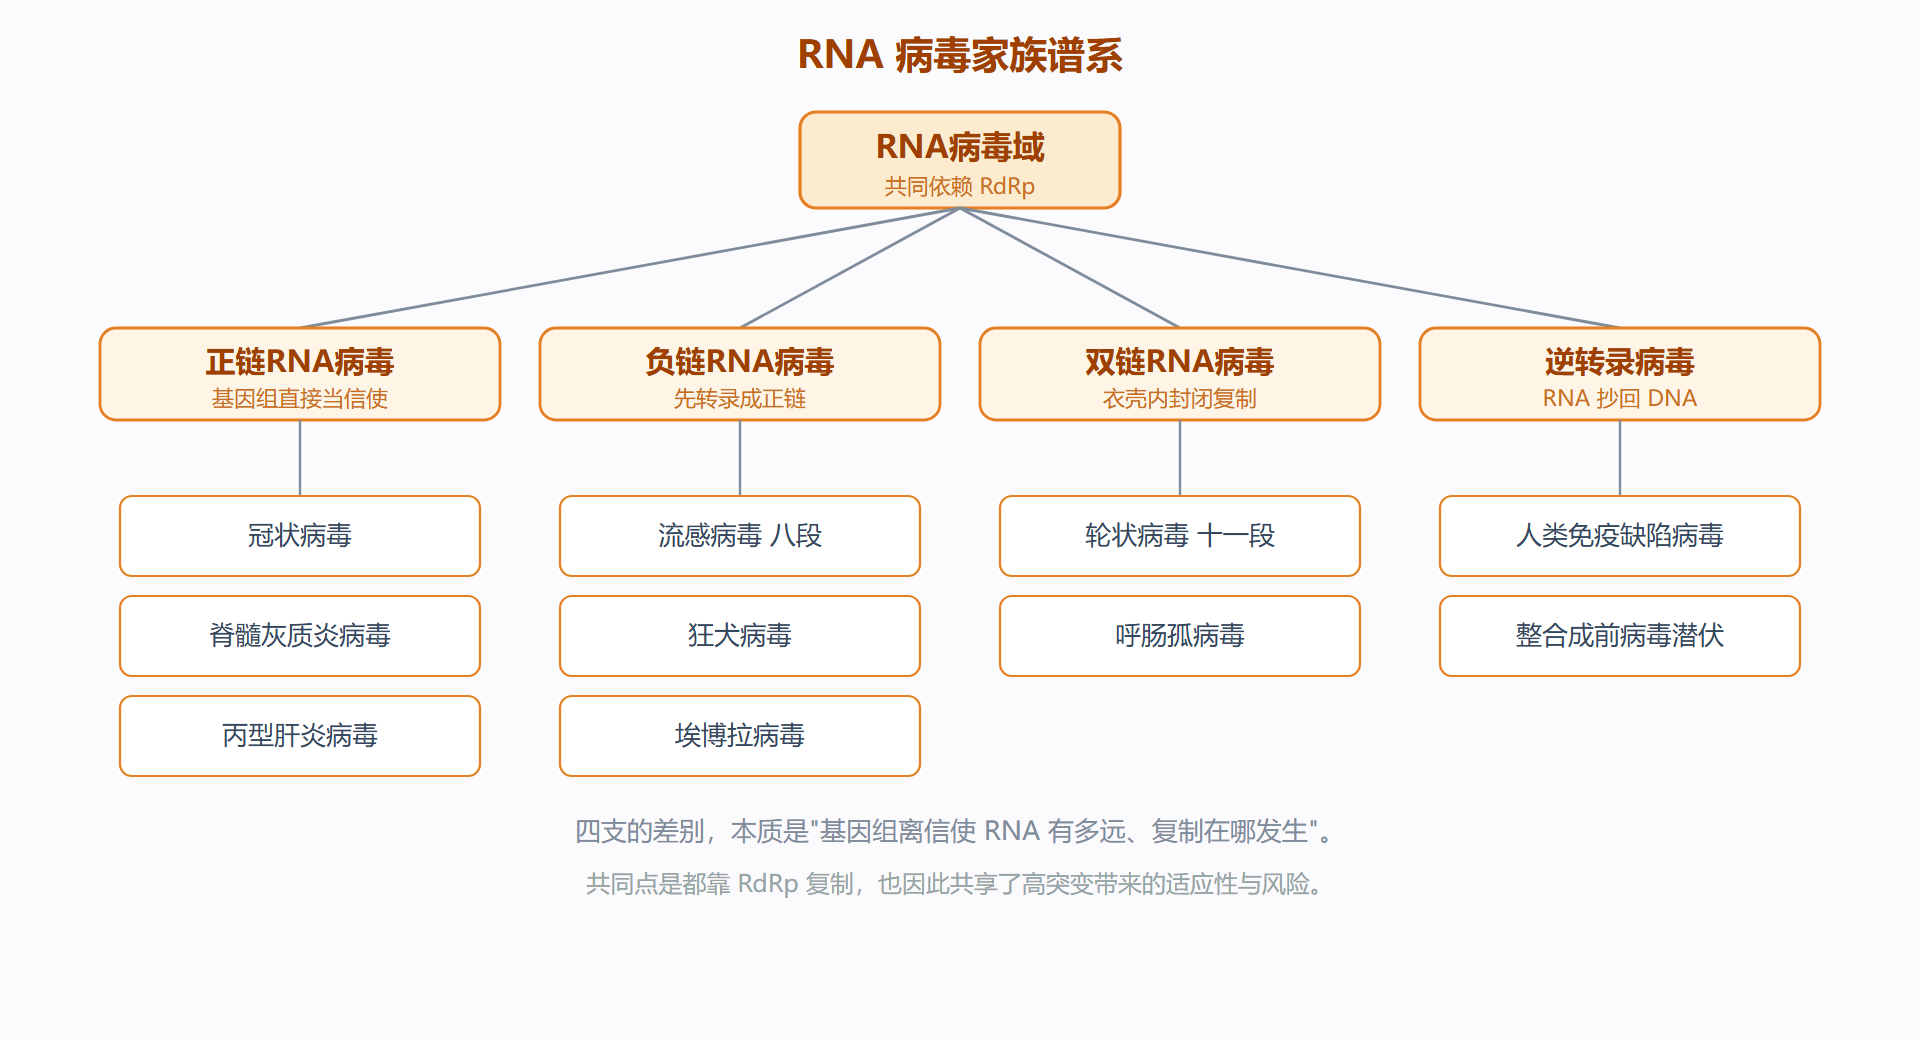
这张表记一个主轴就够:四类病毒的区别,本质是"基因组离信使 RNA 有多远"以及"复制在哪发生"。距离越近启动越快,越远越要自己多带装备。
这些复制机制同时也就是药物和疫苗的靶点。瑞德西韦是一类核苷类似物,把自己伪装成原料掺进正在延长的 RNA 链,掺进去后让聚合酶卡壳、链条停摆,属于直接卡住 RdRp 的复制抑制剂。流感减毒活疫苗走的则是另一条路:选一株对温度敏感的毒株,让它在鼻腔这种相对低温的地方还能复制、诱导黏膜免疫,到了肺部体温下却因聚合酶失活而复制不动,于是"只提醒、不致病"。看清楚四类病毒各自的复制起点,再去看这些药和疫苗为什么有效,就顺理成章了。
⚠️ 常见坑:把"高突变"当成 RNA 病毒百利无害。突变率一旦越过错误阈值,种群会因致命突变累积而崩溃。致死诱变药物(如莫诺拉韦)正是利用这一点,故意把突变率逼过临界点,让病毒自己把自己抄死。
💡 关键直觉:看一个 RNA 病毒,先问"它的基因组能不能直接当信使读"。能直接读的是正链,要反着抄一遍的是负链,关起来抄的是双链,倒着抄成 DNA 的是逆转录。这一问基本就锁定了它的复制套路。
图:RNA 病毒家族谱系
本章回顾
- 共同机制:RNA 病毒域靠 RdRp 复制基因组,这个酶缺乏校对,是它高突变率的根源。
- 高突变双刃剑:突变让病毒形成准种、快速逃逸免疫,但突变率越过错误阈值会让种群崩溃。
- 正链即信使:正链 RNA 到手就能翻译,冠状病毒、脊髓灰质炎病毒据此快速启动感染。
- 负链要反抄:负链 RNA 必须自带 RdRp 先转录成正链,流感病毒还靠八段基因组重配出新亚型。
- 双链关起来抄:双链 RNA 在衣壳内封闭复制,避免触发宿主对双链 RNA 的免疫警报。
- 逆转录倒着抄:HIV 把 RNA 抄成 DNA 并整合进宿主染色体,形成删不掉的前病毒,这是它难根治的原因。
- 机制反哺工具:mRNA 疫苗本质是人工正链 RNA,莫诺拉韦靠致死诱变压垮病毒,都从这些机制里长出来。
下一节我们要看的,是连"完整病毒"都算不上的存在——类病毒只有一段裸 RNA,卫星核酸要搭别人的车,朊病毒干脆没有基因。它们把本章的分类逻辑推到了极限。