2.3 亚病毒因子与边缘实体
2.3 亚病毒因子与边缘实体
本节摘要:亚病毒因子是比病毒还精简、游离在经典病毒定义之外的传染因子,包括类病毒、卫星核酸和朊病毒三类。类病毒只有一段 246 到 401 个核苷酸的裸环状 RNA,不编码任何蛋白,靠核酶自剪切和宿主酶完成复制;卫星核酸必须搭辅助病毒的复制机器才能增殖;朊病毒更极端,连核酸都没有,只靠错误折叠的蛋白把正常蛋白"带坏"来传播。它们把"复制、遗传、传染"这三件事从"完整病毒"里拆了出来,逼着我们重画生命的边界。
本节地图
阅读完本节,你应当能够:
- 说清类病毒、卫星核酸、朊病毒各自靠什么完成复制或传播
- 解释类病毒不编码蛋白却仍能致病和复制的原因
- 说明卫星核酸与辅助病毒之间的依赖关系
- 讲清朊病毒的构象模板化传播机制,以及它为什么不需要核酸
- 用自己的话解释这三者为何被称为"边缘实体"
一、比病毒还"小"的传染因子
病毒已经够精简了——一段核酸加一层蛋白壳。但还有一批存在,连这套基本装备都凑不齐。它们被统称为亚病毒因子,是病毒学研究里最"边缘"的一群:有的没有蛋白衣壳,有的没有自己的复制酶,有的干脆连核酸都没有。
把它们单拎出来讲,不是分类学洁癖,而是因为它们每一条都在挑战"病毒是什么"这个前提。经典定义说,病毒是有核酸基因组、能借宿主复制的感染性颗粒。类病毒没有蛋白衣壳,卫星核酸没有自主复制能力,朊病毒没有核酸。三条里各缺一条,于是都不算"完整病毒",只能算边缘实体。
理解它们还有一个实用理由:这些家伙照样能惹事。类病毒能让马铃薯、柑橘、椰子大面积减产,朊病毒引起的疯牛病和克雅氏病都是致死性神经退行性疾病。它们虽然结构简单,病理后果一点不轻。
二、类病毒:一段裸 RNA 也能致病
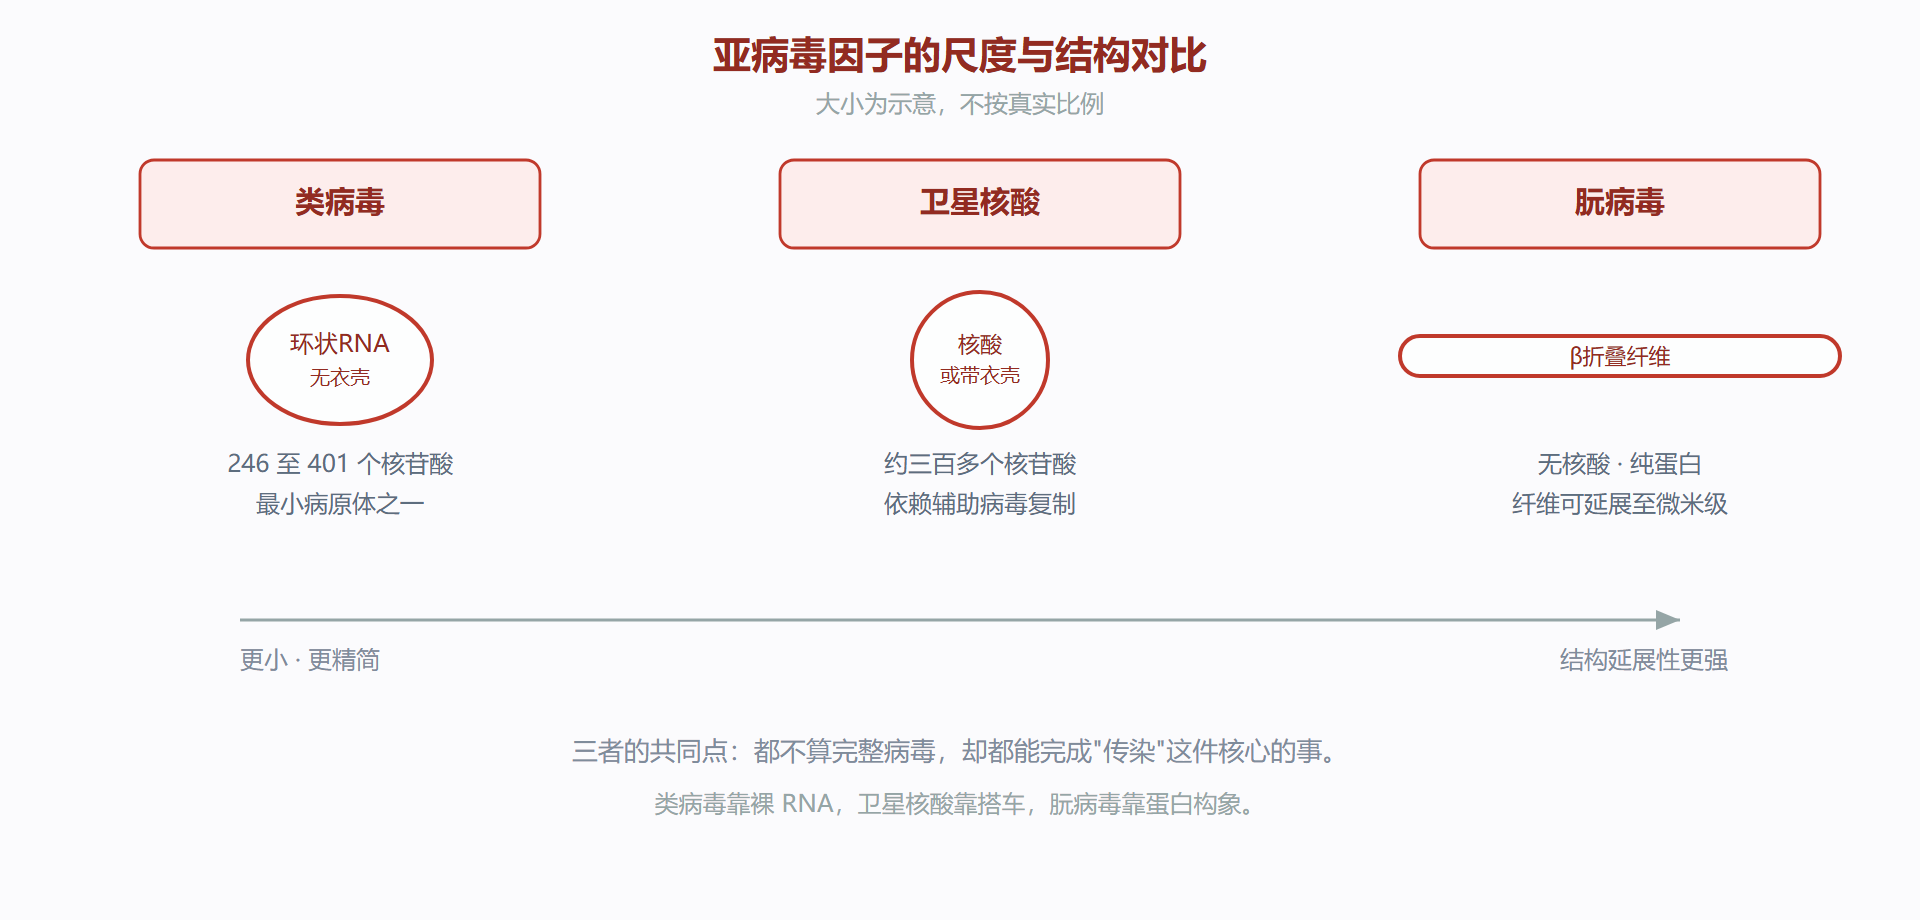
类病毒是目前已知最小的病原体之一,只是一段环状单链 RNA,长度从 246 到 401 个核苷酸不等,连编码一个蛋白的容量都不够。它没有衣壳,进入植物细胞时就是一条"裸"的 RNA。最典型的代表是马铃薯纺锤块茎类病毒,它能让马铃薯块茎长得细长畸形成纺锤状。
不编码蛋白,靠什么复制?类病毒把活全外包给宿主。它进入细胞核后,冒充宿主基因,让宿主的 RNA 聚合酶 II 把它当模板反复转录,滚环式地产出一长串重复拷贝。这串多聚体再靠 RNA 自身的核酶活性——一段叫锤头状结构的序列能自我切割——切成单个环状分子,接上口就成了新类病毒。整个流程里,切割这一步不需要任何蛋白酶的参与,是 RNA 自己催化自己。
光会复制还不够,还得躲过宿主的清除。宿主会用核糖核酸酶去切双链 RNA,类病毒就长成高度配对、紧密的杆状结构,让酶没处下嘴。它把"既是遗传物质、又是酶、还是结构"三件事压缩在一条几百核苷酸的 RNA 里,是"少即是多"的极端样本。
类病毒还有个实用层面的麻烦:它极耐热、耐干燥,靠农具机械摩擦、嫁接、种子就能传播,一旦进了一片田很难清干净。研究类病毒也顺带推动了 RNA 沉默这条路的发现——植物靠 RNA 沉默来防御它,人类现在又借用 RNA 干扰来做基因沉默工具。边缘实体不但让人头疼,还常常是科学发现的引子。
⚠️ 常见坑:别以为类病毒不编码蛋白就没有致病性。它通过自身的二级结构去干扰宿主基因表达和 RNA 沉默通路,照样能让作物发病。病不病,和"编不编码蛋白"是两回事。
三、卫星核酸:搭辅助病毒的顺风车
卫星核酸是一类必须依赖另一个"辅助病毒"才能复制的核酸分子。它自己没有 RdRp,进不了复制环节,只能趁辅助病毒复制时搭个便车,让辅助病毒的聚合酶顺便把它也抄了。拟病毒是其中一类,常与植物病毒共感染。
黄瓜花叶病毒的卫星 RNA 是个经典例子。它长度只有三百多核苷酸,本身带一段核酶结构,能自我切割。它感染植物时,必须和黄瓜花叶病毒同时在场:辅助病毒提供聚合酶,卫星 RNA 借机扩增。有意思的是,这段"搭车的"反过来还能影响"开车的"——卫星 RNA 的某些变体能抑制辅助病毒复制,让宿主症状减轻,从而延长宿主寿命,间接给自己争取更多传播时间;另一些变体则加重症状。宿主、辅助病毒、卫星核酸三方,构成一个微妙的动态平衡。
卫星核酸和卫星病毒还有一层差别:卫星核酸是裸核酸,卫星病毒则自己带一层衣壳、还编码自己的衣壳蛋白,只是复制酶仍要靠辅助病毒。不管哪种,它们共同点都是"离开辅助病毒就彻底失活",是分子世界里的专性共生。
人类病原里也有一个典型的"搭车客"——丁型肝炎病毒。它自己包不了外壳,必须借乙型肝炎病毒提供的表面抗原来装配和传播,所以人只有在感染乙肝病毒的前提下才会再感染丁肝。这个例子说明,卫星核酸那套"离开辅助病毒就失活"的逻辑,不只发生在植物里,在人类病毒性肝炎的防治里同样重要:控制住乙肝,丁肝也就跟着被挡住了。
四、朊病毒:没有基因也能传染
朊病毒把"边缘"推到了极限——它连核酸都不要,传染因子纯粹是一种错误折叠的蛋白质。
它的机制叫构象模板化传播。正常细胞里有一种朊蛋白,折叠成以 α 螺旋为主的构象;一旦遇到病理性朊蛋白——同一条多肽链,但折叠成以 β 折叠为主的另一种构象——正常蛋白就会被"说服",转成同样的病态构象。一个病态分子带一个正常分子,正常分子也变成病态,如此链式放大,最终在神经组织里堆成不溶的淀粉样纤维,把神经元逐步杀死。
这套逻辑的关键在"模板"二字:病态蛋白的构象本身就是信息,不需要基因来传递。上世纪八十年代,研究者用实验证明,把朊病毒制剂里的核酸全部降解掉,它照样有传染性;反过来用蛋白酶把蛋白破坏掉,传染性就没了。这直接推翻了"遗传信息必须由核酸携带"的旧假设。疯牛病、羊瘙痒症、人类的克雅氏病,都由这条路径引起。
跨物种传播还有道"种间屏障"。不同物种的朊蛋白氨基酸序列略有差异,病态构象要"说服"异种正常蛋白没那么容易。但一旦某个突变降低了这道屏障,跨种传播就可能发生——疯牛病传给人的变异型克雅氏病,就是这条屏障被突破的结果。
朊病毒还打开了一扇更大的门。类病毒被不少研究者看作 RNA 世界的"活化石"——在那个还没有 DNA 和蛋白质酶参与复制的远古阶段,RNA 可能就是这样靠自我催化和构象来完成信息传递的。而"错误折叠蛋白诱导正常蛋白变坏"这条路径,如今在阿尔茨海默病、帕金森病里也反复出现,被统称为类朊机制。边缘实体之所以值得认真对待,正因为它们揭示的规律常常超出病原学本身。
💡 关键直觉:朊病毒之所以是边缘实体,不是因为它更"弱",而是因为它证明了一件事——在极端情况下,蛋白的折叠构象本身就能充当可传播的信息,绕开核酸这层传统意义上的"遗传物质"。
五、三者并排看
| 维度 | 类病毒 | 卫星核酸 | 朊病毒 |
|---|---|---|---|
| 遗传物质 | 环状单链 RNA | RNA 或 DNA | 无核酸 |
| 蛋白衣壳 | 无 | 卫星核酸无,卫星病毒有 | 无 |
| 复制/传播方式 | 借宿主酶 + 核酶自剪切 | 借辅助病毒聚合酶 | 构象模板化传播 |
| 是否编码蛋白 | 否 | 卫星核酸多数否 | 否 |
| 代表 | 马铃薯纺锤块茎类病毒 | 黄瓜花叶病毒卫星 RNA | 疯牛病、克雅氏病朊病毒 |
这张表最扎眼的一行是"遗传物质":从 RNA 到"借别人的复制机器",再到"完全没有核酸",三类边缘实体一路把传统遗传观拆得七零八落。
图:亚病毒因子尺度对比
六、边缘实体给生命起源的启示
研究亚病毒因子,一半是为了防病,另一半是为了回答一个更根本的问题:生命是怎么从无到有的。这里的关键线索是核酶。类病毒不编码任何蛋白,却靠 RNA 自身的锤头状结构完成自我切割,等于现场演示了"RNA 既能当遗传物质、又能当酶"。这正是 RNA 世界假说的核心——在地球生命早期、蛋白酶还没出现之前,RNA 可能同时承担了储存信息和催化反应两件事。类病毒因此常被看作那个远古 RNA 世界的"活化石":它不是现代病毒的退化,更像一扇还开着的、通往化学进化的窗。
朊病毒则从相反方向补了一刀。它证明蛋白质的构象本身就能携带可传播的信息,一条多肽链换个折叠方式就能自我延续。这让"遗传信息必须由核酸承载"这条旧教条不再绝对,也让人重新去想:在核酸主导之前,是不是还有过一段"蛋白先行"或"构象先行"的阶段。当然,这里要划清界限——说类病毒、朊病毒"像"生命起源的中间产物,不等于说它们就是祖先。它们更像现存的参照物,让我们有机会在实验室里直接观察那些接近生命边界的行为,而不是只靠化石和推测。
要点串联
- 边缘实体的定义:亚病毒因子缺了经典病毒定义里的至少一环——无衣壳、无自主复制、或无核酸。
- 类病毒是裸 RNA:246 到 401 个核苷酸的环状 RNA,不编码蛋白,靠宿主酶复制、靠核酶自剪切。
- 核酶自剪切:类病毒 RNA 上的锤头状结构能自我切割,把滚环复制的多聚体切成单个环状分子,无需蛋白酶。
- 卫星核酸搭便车:没有自己的聚合酶,必须借辅助病毒复制,还可能反过来调节辅助病毒的致病性。
- 朊病毒无核酸:错误折叠的蛋白以自身为模板,诱导正常蛋白转成病态构象,链式放大成淀粉样纤维。
- 构象即信息:朊病毒证明蛋白折叠构象本身就能传递可传播的信息,绕开了核酸这层遗传物质。
- 边缘不等于无害:类病毒致作物减产,朊病毒致致死性神经退行性疾病,简单结构与严重后果并不矛盾。
到这里,三大类群的静态样貌已经立起来了:DNA 病毒规整、RNA 病毒善变、亚病毒因子在边界上试探。下一章我们转向它们的动态一面——这些类群如何突变、重组、跃迁宿主,把"静态分类"变成"活的演化"。