2.2 分子系统学重构:标记基因与物种界定
2.2 分子系统学重构:标记基因、多基因树与物种界定
本节摘要:分子系统学不是给传统分类"补充数据",而是换了一套证据标准——以突变速率定义的演化时钟与以共祖概率定义的同源性标尺。本节拆解其三级技术骨架:ITS/SSU-LSU/RPB 三级标记基因构成的分级滤波系统,多基因联合建树的分区建模与冲突检测能力,以及 PTP、GMYC 两类把物种边界变成可计算假说的界定模型。理解这套框架,就理解了当代真菌学如何重写"亲缘"的定义。
核心问题
阅读完本节,你应当能够:
- 说出 ITS、SSU/LSU、RPB1/RPB2 各自最佳适用的分类层级与原因
- 解释"分区建模"为何优于把所有基因放进同一个统计模型
- 描述基因树冲突如何成为杂交与不完全谱系分选的检测信号
- 比较 PTP 与 GMYC 模型的原理、优势与脆弱性
- 说明系统发育网络为何是"树"的必要升级
一、问题与直觉
要绘制一张跨越数亿年的真菌家谱,你手里只有一支笔,而这支笔的笔尖粗细必须随绘图尺度切换:画家族合影需要纤毫毕现的工笔,勾勒洲际迁徙需要概括山川的写意。分子标记基因就是这支笔的核心组件——它们不是随机选取的 DNA 片段,而是在不同时间尺度上承载稳定信号、经自然演化千锤百炼的"分子化石"。
传统分类的困境(上一节)在于表型信号会被趋同演化与可塑性污染;分子系统学的力量,则在于提供了一个不可伪造的参照系:序列差异的模式忠实记录了替换、插入与缺失的累积历史,而且可以被任何人重新检验。这不是数据量的胜利,是证据标准的更换。
二、三级标记:演化信号的分级滤波器
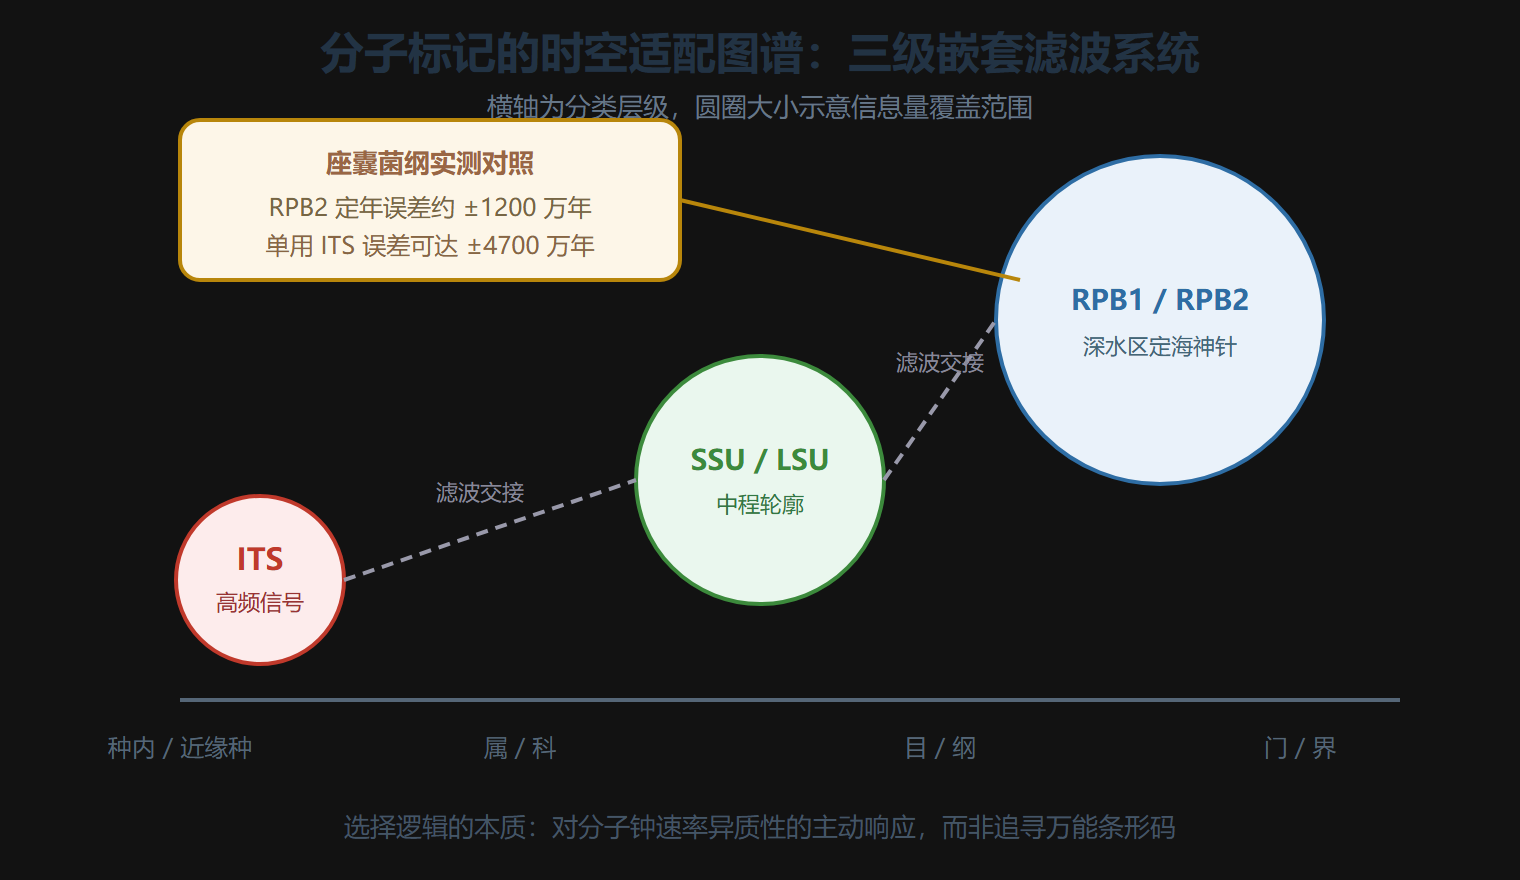
ITS:种级的金标准。 内转录间隔区位于核糖体 RNA 基因簇中,不参与翻译,免受强烈选择压力,突变速率显著高于编码区。它长度适中(通常 500 到 700 碱基对),变异集中于两个间隔区,中间夹着一段高度保守的序列构成天然锚定点——两端可变、中间稳固,像一把游标卡尺。大规模评估显示,ITS 能在约 93% 的已知真菌种对之间实现无歧义区分。但它的局限同样明确:在属级以上,位点突变趋于饱和,分辨力骤降——用放大镜看星系,只剩一片光晕。
SSU 与 LSU:中长焦镜头。 小亚基(约 1800 碱基对)与大亚基(约 900 碱基对)核糖体基因是核心功能元件,承受强烈纯化选择,突变速率缓慢而恒定,擅长解析门纲级别的深部分支——厘清壶菌门与毛霉门在真菌界根部的拓扑关系就靠它们。两者常以串联形式使用,如同双筒望远镜的左右目镜,通过互补校验抑制单基因建树的长枝吸引误差。
RPB1 与 RPB2:深水区的定海神针。 RNA 聚合酶亚基基因在真核生物中高度保守、外显子内含子结构清晰,携带的同义与非同义替换信息蕴含更丰富的选择历史。在纲目级这一"演化迷雾地带"——既有快速辐射留下的短内部枝,又有古老谱系间的伪相似性——蛋白编码基因的统计支持率远超核糖体标记。对座囊菌纲的研究显示,仅用 RPB2 就能把两个目级类群的分歧时间估算误差压缩到约正负 1200 万年,而单独使用 ITS 时误差高达 4700 万年。
三级标记不是并列选项,而是嵌套的滤波系统:ITS 滤出高频信号凸显近期分化,SSU/LSU 滤掉高频抖动呈现中程轮廓,RPB 系列进一步抑制背景杂波让古老分支显影。选择逻辑的本质是对分子钟速率异质性的主动响应,而非对"通用条形码"的徒劳追寻。
分子标记的时空适配图谱
三、多基因联合建树:从单一线索到证据网络
单基因树是盲人摸象:ITS 树可能把两个生态趋同的腐生种错误聚为一支,RPB2 树或许因个别位点饱和扭曲古老分支顺序。真相往往藏在多个独立基因座信号的交集里。
技术内核有两层。第一层是分区建模:贝叶斯推断软件允许为不同基因分区设定独立的替换模型、进化速率与碱基频率——ITS 的高变位点被赋予更高的状态转换概率,RPB2 保守域的替换被约束于更严格的参数空间。这避免了把苹果和橙子放在同一统计天平上称重的谬误。第二层更有意思:冲突本身就是信号。当 ITS 强烈支持分支 A 而 RPB2 强烈反对时,这个冲突不是噪声,而是生物学事件的红灯——提示可能存在杂交渐渗、不完全谱系分选或水平基因转移。一个青霉属案例:ITS 把某分离株归入产黄青霉组,RPB2 与 β-微管蛋白联合分析却把它推向岛青霉组;全基因组重测序证实,该菌株是一次古老种间杂交的产物——核糖体基因组被"俘获"固定,而大部分编码基因忠于另一个祖先。若只依赖 ITS,这个演化事件将永远湮没在表型相似性的假象之下。
在这套逻辑的顶端是系统基因组学:用直系同源基因识别工具在数百个基因组中筛选单拷贝基因构建超级矩阵,大幅削弱长枝吸引误差。真菌生命之树项目正是以此整合了超过八百个物种、九十余个保守蛋白编码基因,首次以高支持率确立了真菌界高阶框架,把壶菌门置于基部,并为长期身份不明的隐真菌类群赋予了明确位置。这类成果说明:当基因数量从个位数跃升到近百,噪声被抑制的不只是线性叠加,而是统计意义上的质变——单基因时代的许多"顽固分歧",在超级矩阵面前自动瓦解。
| 建树策略 | 优点 | 风险 |
|---|---|---|
| 单基因 ITS 树 | 快速、数据库覆盖最全 | 杂交与俘获事件会被系统性误判 |
| 双基因验证 | 成本与稳健性的折中 | 仍可能被不完全谱系分选欺骗 |
| 多基因分区联合 | 冲突检测、支持率可靠 | 计算与取样成本高 |
| 系统基因组学超级矩阵 | 削弱长枝吸引、 resolves 深层关系 | 依赖基因组资源,稀有种难覆盖 |
四、物种界定:把直觉变成模型
分子树矗立之后,一个更根本的问题浮现:树上的每个终端分支对应一个物种,还是一个地理种群?传统形态学靠"可观察差异阈值",分子系统学则发展出模型驱动的界定方法。
PTP 模型的哲学直白有力:把一棵已建好的分子树视为谱系分化的事件流,假设种内变异符合泊松过程、种间分化是突变跃迁,通过最大似然在分支长度分布中找出最优阈值——阈值一侧的短枝是种内共祖时间,另一侧的长枝是种间分歧时间。它计算高效、无需预设种群参数,特别适合缺乏种群采样信息的宏条形码数据。脆弱性在于:采样偏差或未被检测的隐存种容易让它把长枝误读为种间事件,造成过度分割。
GMYC 模型更具演化深度:它把系统树视为两种随机过程的混合——种内层面基因谱系遵循溯祖过程,分支模式由有效种群大小决定;种间层面新种形成服从纯出生过程。模型在树的根部附近寻找两个过程的交接点,即物种形成的临界时刻。对全球土壤真菌 ITS 数据的 GMYC 分析曾揭示,子囊菌中高达 43% 的操作分类单元实际对应未被描述的隐存种——这一发现直接推动了全球真菌物种普查类计划的启动。
必须清醒:两者都不是物种定义的终极法官,而是演化裂隙的探测器。它们输出的是假说性的物种界限,最终确认仍需生态位分化、生殖隔离实验、基因组共线性等多重证据。正如一位真菌系统学家的比喻:模型告诉你"这里可能有一道墙",但唯有走进去触摸砖石,你才能确信它是否真的隔开了两个世界。
⚠️ 常见坑:把 ITS 分歧度超过某个百分比(如 3%)直接当作分种标准套用。阈值在不同类群间漂移,替换单个标记就可能改变结论——任何阈值都必须与树拓扑、形态特征与生态数据交叉验证。
💡 关键直觉:基因树之间的"不一致"不是失败,恰恰是信息最密集的角落——杂交、渗入、谱系分选都藏在那里。读树要读支持率低于 70% 的节点,那里往往正上演演化史上最戏剧性的转折。
五、从静态树到动态网络
框架的 latest 升级,是承认"树"本身只是一种简化假设。当水平基因转移、古杂交、胞质基因渗入被频繁检出,演化关系更像网而非树。SplitsTree、PhyloNet 等工具已能基于多基因位点的冲突模式推断网状关系强度,量化杂交的贡献比例。当一片热带雨林凋落物中的序列既匹配已知腐生种、又在 RPB2 上携带植物病原菌的毒力基因模块时,分子系统学框架给出的已不仅是分类标签,而是一份指向共生与致病转化关键节点的演化路线图。
本章回顾
- 三级滤波:ITS 主战种级(约 93% 区分率)、SSU/LSU 负责属级以上、RPB 系列攻坚纲目深分歧,尺度错配即结论错配
- 分区建模:给不同基因分区配独立演化参数,避免统计天平上的苹果与橙子谬误
- 冲突即信号:基因树不一致指向杂交渐渗、不完全谱系分选或水平转移,青霉杂交案例是教科书级演示
- 界定模型:PTP 高效但易过度分割,GMYC 溯祖框架更深但依赖种群信息;二者输出的是假说,不是判决
- 隐存种规模:GMYC 分析显示子囊菌中约 43% 的操作分类单元可能对应未描述隐存种
- 树的升级:网状演化关系正把静态生命之树推向系统发育网络
分子系统发育建树流程(可复算) ───────────────────────────────────────────── 阶段 工具/方法 输出 ───────────────────────────────────────────── 取样 多基因(ITS+TEF1+ 矩阵 RPB1/RPB2) 比对 MAFFT + 手工校验 比对块 模型选择 ModelFinder 最佳替代模型 建树 IQ-TREE 最大似然 保守树 自展 ultrafast 1000 次 支持率 分化时间 化石校准 BEAST 时间树 ───────────────────────────────────────────── 报告规范:披露全部 accession 编号, 负结果与冲突基因树一并入库
自展支持率与分类处置对照 ───────────────────────────────────────────── 支持率区间 解读 分类处置 ───────────────────────────────────────────── 95–100 骨干节点 可立新属/新科 85–95 稳固 种级调整允许 70–85 姑且接受 仅作组合参考 50–70 存疑 禁止新分类单元 <50 噪声 重补基因数据 ───────────────────────────────────────────── 红线:任一新分类单元的成立节点 自展值不得低于 70%
下一节看这套框架结出的果实与遗留的争端:七大门共识如何收敛,微孢子虫为何让"什么是真菌"重新成为悬案。