2.3 当代共识与争议前沿:七大门与命名新规
2.3 当代共识与争议前沿:七大门与命名新规
本节摘要:分子证据的持续冲击已沉淀为稳定共识——真菌界由七个单系门级单元构成,子囊菌与担子菌组成的双核亚界占据已描述物种的九成半。但共识边缘争议不断:基因组极度精简的微孢子虫挑战"真菌"定义的边界;属级拆分引发工业界的命名恐慌;新规强制要求新种描述附分子数据,把分类学推入"可验证"时代。本节同时给出这套框架的实践回报——从生物防治到传染病溯源,分类共识直接改写应用决策。
本节地图
阅读完本节,你应当能够:
- 列出真菌界七大门并说明双核亚界的含义
- 复述接合菌门被解构、球囊菌门独立的过程
- 解释微孢子虫带来的本体论难题
- 描述"一菌一名"新规与多标记强制要求的背景
- 举出分类共识改变应用决策的至少三个案例
一、共识之基:七大门框架
经过多基因座联合分析、全基因组共线性比较与超微结构特征三重证据的收敛,当前学界公认的真菌界门级框架稳定为七个单系群:壶菌门、接合菌门(毛霉门)、子囊菌门、担子菌门、球囊菌门、捕虫霉门与微孢子虫门。
其中子囊菌门与担子菌门构成"双核亚界"——共享双核阶段、减数分裂发生于特化子实体(子囊或担子)内的核心发育逻辑,二者合计占已描述真菌物种的 95% 以上,是生态功能与经济价值的绝对主力。壶菌门作为唯一保留游动孢子与鞭毛的类群,长期占据演化树的基部位置。这个框架甚至收编了长期身份不明的"隐真菌"类群——那群以环境序列形式存在、一度被怀疑不属于真菌界的神秘分支,如今在系统基因组学的超级矩阵里有了座位,它们与微孢子虫的相对位置仍是活跃的研究前沿。
这份清单里藏着两次教科书级的重构。旧"接合菌门"已被拆散:早期分类中庞杂的接合菌因并系性被弃用,如今的毛霉门聚焦毛霉目、被孢霉目等类群;而原属其中的内生菌根类群(如球囊霉属)经分子数据证实与毛霉类并无紧密亲缘,被确立为独立的球囊菌门。这一调整厘清了菌根共生演化的独立路径,也让农业土壤健康评估有了明确的系统发育锚点。微孢子虫被钉入真菌界:这群专性胞内寄生者曾被划归原生动物,直到核糖体蛋白序列、几丁质合成酶基因等证据无可辩驳地显示其真菌亲缘——尽管它同时保留着最大的争议(见下文)。
七大门概览
| 门 | 标志特征 | 生态角色 | 代表属 |
|---|---|---|---|
| 子囊菌门 | 子囊内 8 孢 | 分解先锋、地衣共生、病原 | 酵母属、青霉属、曲霉属 |
| 担子菌门 | 担子外生 4 孢、锁状联合 | 木材腐朽、外生菌根 | 香菇、蜜环菌、锈菌 |
| 壶菌门 | 游动孢子带后生鞭毛 | 水生寄生、两栖病原 | 蛙壶菌 |
| 球囊菌门 | 丛枝菌根、脂肪酸合成缺失 | 80% 维管植物的共生者 | 根内根生菌 |
| 毛霉门 | 无隔多核菌丝、接合孢子 | 腐生发酵、机会感染 | 毛霉属、被孢霉属 |
| 捕虫霉门 | 捕食结构特化 | 线虫捕食、昆虫病原 | 捕虫霉 |
| 微孢子虫门 | 极简基因组、mitosome | 胞内寄生 | 兔脑炎微孢子虫 |
二、张力之核:微孢子虫的哲学拷问
七大门里,微孢子虫是投下最长阴影的争议源。这群专性胞内寄生者的基因组证据无可辩驳地指向真菌——核糖体蛋白、转运 RNA 加工酶、几丁质合成酶基因都与真菌同源。但正是"高度真菌化"的基因组,包裹着一个惊人悖论:它是真核生物中基因组缩减最极端的类群之一。
典型代表兔脑炎微孢子虫基因组仅 2.9 兆碱基对、编码约 2000 个蛋白,不足酿酒酵母的三分之一;它彻底丢失了线粒体基因组,把线粒体本身退化为仅保留铁硫簇组装功能的残迹细胞器,能量代谢完全依赖从宿主细胞"窃取"三磷酸腺苷。
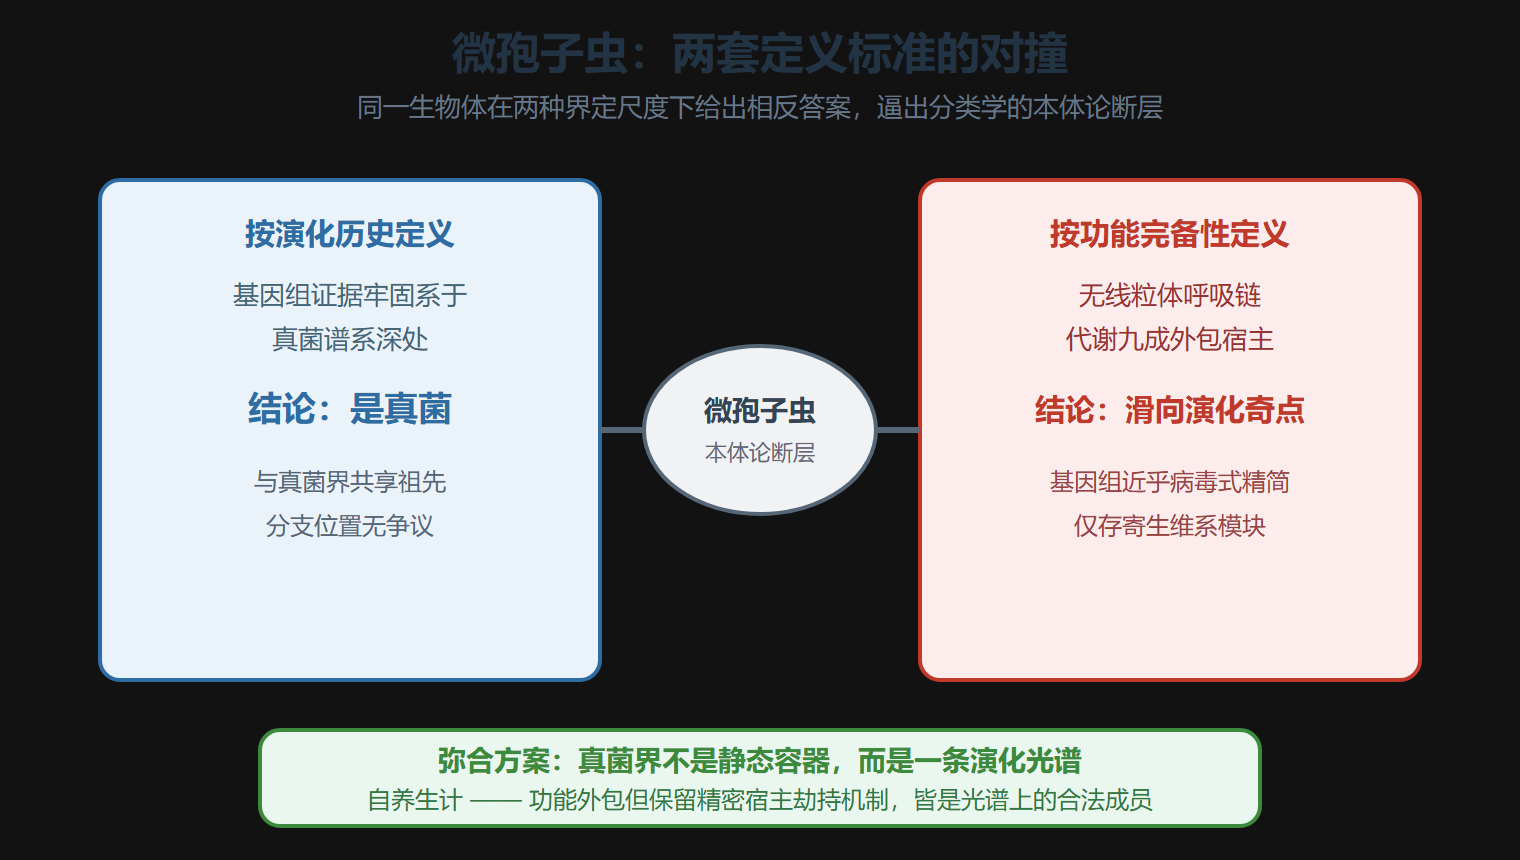
刺骨的诘问由此而来:当一个生物体丧失了真核细胞最标志性的产能引擎、代谢网络九成以上外包给宿主、基因组精简到近乎病毒式密度——它还能否承载"真菌"这一分类范畴的生物学内涵?分类学在此遭遇本体论断层:按演化历史定义,微孢子虫牢固系于真菌谱系;按功能完备性定义,它已滑向寄生驱动的演化奇点。
弥合裂隙的工作正在进行。2023 年发表于《细胞》的研究发现,微孢子虫虽缺失呼吸链,却保留一套特化的厌氧能量代谢模块;其残迹细胞器虽不产能,分泌的效应蛋白却能直接干扰宿主炎症小体组装。它的"简约"不是退化,而是极致的功能重编程——把全部遗传资源聚焦于寄生维系与宿主操控。这意味着真菌界并非静态容器,而是一条演化光谱:一端是代谢自足的自由生活子囊菌,另一端是功能外包却进化出精密宿主劫持机制的微孢子虫。接受这条光谱,正是当代分类学成熟的标志。
微孢子虫:两套定义标准的对撞
三、命名规则的重写:从描述即完成到数据可验证
共识生成的另一战场是规则本身。2022 年前后,全球真菌分类学界推动了影响深远的新规范:新种描述必须包含至少两个分子标记,并提交至国际核苷酸序列数据库;"一菌一名"原则逐步收紧,有性型与无性型的双名并行体系走向终结。
规则变革直接触发了一场产业焦虑:当分子证据显示曲霉属等传统大属为多系群,是果断拆分以忠于系统发育,还是保留其实用价值?拆分派与保留派的分歧背后是真金白银——数十年积累的菌株库、安全评估数据、生产工艺参数都挂在旧属名之下,属名一变,合规文件全部需要重置。这类争论没有纯科学答案,它混合了演化哲学与产业利益的考量,也是分类学作为"活协议"的日常状态。
⚠️ 实务提醒:查阅较老的工业或临床文献时,务必核对属名是否经历了重组——很多"曲霉"旧文献里的种,如今已划入不同属。命名体系仍在动态调整期。
💡 关键直觉:分类学的不稳定不是缺陷,是健康的信号——一个仍在被新数据持续扰动的框架,远比一个僵化的框架更接近真相。
四、共识的实践回报
分类共识绝非书斋里的游戏,它直接重塑真菌学的应用地貌。
生物防治的靶向升级。 明确毛霉门中被孢霉类与植物根系的特定互作(如促进磷吸收),让农学家得以开发针对性菌剂,替代广谱杀菌剂,实现病害防控与养分活化双重目标。
传染病溯源的范式转换。 当免疫缺陷患者肺部检出未知病原体,宏基因组测序一旦显示微孢子虫特征基因,临床即可直接启动特异性检测与电镜验证,跳过传统真菌培养的漫长等待——分类共识在此刻是救命的诊断罗盘。
工业酶库的理性挖掘。 知道壶菌门某属与捕虫霉门亲缘密切,而后者包含大量捕食线虫的真菌,研究者便有理由推测其几丁质酶与蛋白酶具有极端酸碱稳定性,从而定向筛选该分支基因组,加速新型生物农药酶的发现。药物发现同样受益:次级代谢基因簇的共进化分析能预判哪个分支最可能藏着新型抗生素骨架,把随机筛选的命中率提高一个量级。
地球微生物组建模的参数校准。 全球土壤宏基因组项目若仍把"接合菌"当作单一操作单元,功能预测必然失真;采用七大门框架后,球囊菌门丰度得以与土壤有机碳储量精确关联——分类学精度直接转化为生态模型的预测力。
五、余响:在不确定性中锚定确定性
当代真菌分类的前沿恰如一片星云:中心是七大门构成的致密核心,光芒稳定;边缘是尚未凝聚的尘埃——环境 DNA 中高频出现却无法培养的暗物质真菌、疑似壶菌与微孢子虫之间的过渡类群、宏基因组组装中挑战现有门界定义的嵌合片段。
但正是这些模糊地带孕育着下一次范式革命。分类学的尊严不在于宣称掌握终极真理,而在于用最锋利的工具切割混沌、用最审慎的逻辑编织证据、用最开放的心态拥抱颠覆。当我们凝视那张七大门系统发育图,看到的应是七股从远古混沌中分流而出的生命长河——它们各自携带独特的遗传密码与生存策略,在数十亿年时光中冲刷、沉淀、偶有交汇。测绘这些河流,正是本学科持续至今的使命。
要点串联
- 七大门共识:壶菌、毛霉、球囊、捕虫霉、微孢子虫加上双核亚界的子囊菌与担子菌,构成当代框架的稳定内核
- 两次重构:旧接合菌门因并系被拆散,球囊菌门独立;微孢子虫从原生动物迁入真菌界
- 本体论难题:微孢子虫以 2.9 兆碱基对基因组与外包代谢挑战"真菌"边界,光谱式的界定义是当前出路
- 规则变革:新种描述强制双分子标记与数据库提交,命名进入可验证时代
- 拆分之争:属级多系群的拆分与保留牵动产业合规成本,科学判断与实用考量持续角力
- 应用回报:生防靶点、临床溯源、酶库挖掘、碳循环建模四大场景均以分类精度为前提
物种概念在真菌中的适用性评分 ───────────────────────────────────────────── 概念 适用度 典型困境 ───────────────────────────────────────────── 形态学种概念 ★★ 隐存种大量存在 生物学种概念 ★★★ 无性支系无法检验 系统发育种 ★★★★ 阈值 arbitrarily (GC) 设置引争议 基因组种概念 ★★★★★ 正在积累参照 (ANI/全基因组) 数据库 生态种概念 ★★★ 共生体系好用 ───────────────────────────────────────────── 现行做法:以系统发育种为主干, 多概念交叉验证(整合分类学)
命名法规近年关键修订要点 ───────────────────────────────────────────── 修订项 内容 生效 ───────────────────────────────────────────── 一菌多名废止 一个种名适用其 2011墨尔 (仅限真菌) 全部生活型 本法规 分子型命名 DNA 序列型可 2019深圳 登记为模式 法规附则 登记真菌名录 唯一有效名录 Shenzhen (Fungal Names) 在线裁决 声明 传统型/分子型 电子出版+ 逐年 电子出版 ISSN 注册 更新 ───────────────────────────────────────────── 争议焦点:仅凭序列能否描述新种 ("序列种"边界仍在拉锯)
下一章进入全书主体:把这套框架用起来,逐一拆解各核心门类的结构、功能与生态三重身份,先从物种数占七成半的子囊菌门开始。