3.1 子囊菌门:多样性引擎
3.1 子囊菌门:多样性引擎
本节摘要:在已获得正式描述的真菌物种里,隶属子囊菌门者逾 6.4 万,超过全界总数的四分之三。这份统治力并非来自某个单一优势性状,而是三套系统叠加的复利:作为单细胞"高压反应器"的子囊、可在不同谱系间横向搬运的功能模块库,以及门类内部远比近缘类群繁复的表达调控语法。从咸水中的木质素分解,到洞穴黑暗里的氨氧化产能,再到酵母、地衣、白粉菌与稻瘟病菌的天壤之别——用一个词概括这个门,"引擎"再合适不过。
本节导读
读完这一节,请检验自己能否做到:
- 复述子囊内部"3+1"式的核相编排,并说明渗透压弹射如何被环境信号点燃
- 讲清功能模块库与调控语法这两套系统各自负责什么、如何配合
- 以白粉菌为例,把一次功能创新拆解到四个生物学尺度上
- 举两例子囊菌分别切入碳循环与氮循环的独特路径
一、问题与直觉
把真菌界的大门数一数,七八个门里为何偏偏是子囊菌独占鳌头?"繁殖得快"这类答案站不住脚——论孢子产量,担子菌一点不输。值得追问的是架构层面的差异:这个门装配出了一台能把有限基因组兑换成近乎无限功能组合的机器。换句话说,子囊菌并非安静地住进现成的生态空位,它们更像改建工地的承包商,自己动手把微环境造出来。
这个门的内部跨度本身就是证据。同门之内:酿酒酵母把糖液发酵成乙醇;青霉在柑橘果皮上分泌抑菌物质;地衣化的子囊菌与光合生物签下以亿年计的共生合同;白粉菌过着离开活体植物细胞就无法存活的寄生日子;稻瘟病菌则在每一年里卷走够数千万人吃一年的稻谷。底层零件高度通用,产出形态却千差万别——这正是"引擎"的定义。
二、结构基石:子囊不止是孢子囊
门级共有标志物只有一个:子囊,一枚囊状细胞。乍看不过是装孢子的小房间,但把时间尺度放大,它其实是真菌界最紧凑的时空压缩设计——减数分裂、孢子后熟、释放时机判断和外部环境感知,四件事被压进了同一个细胞周期。
核相编排是标准化的:两枚单倍体核先行融合,成为二倍体合子核;紧接的减数分裂给出 4 枚单倍体核;再来一轮有丝分裂,数目翻倍至 8,最终一一对应装入 8 枚直线排布的子囊孢子。这套流程绝非简单的复制粘贴,而是带着空间信息的程序输出——孢子在囊内的排布样式(直线、分叉抑或螺旋)忠实记录了减数分裂纺锤体当时指向哪里,因而成为系统发育工作者眼中含金量极高的形态特征。
触发机制同样讲究。麦角菌的子囊壳顶端长着毛状感光组织,一旦光强与日照时长双双越过阈值,钙通道打开,胞内钙浓度骤升启动级联反应,顶孔的环状细胞按计划裂开——此时囊内早已蓄满的渗透压(实测可达 2–3 MPa,与 200 米深海的水压同级)在瞬间倾泻,把孢子抛出数厘米开外。微流控成像还原了毫秒级的细节:囊壁并非四处乱炸,而是顺着预先布置的应力薄弱线螺旋状松开,让孢子云以理想的涡旋形态散开。物理蓄能、生化扳机、几何设计与生态收益四者被焊接在同一枚细胞内——"结构即功能"这个命题在此得到近乎完美的演示。
子囊内核相事件编排(模式八孢型) ───────────────────────────────────────────── 阶段 核倍性变化 关键事件 ───────────────────────────────────────────── 质配后 n + n(双核期) 两核并立,暂不融合 核配 2n(合子核) 两单倍体核融合 减数分裂 I 2n → n + n 同源染色体分离 减数分裂 II n → n × 4 四分体时期 有丝分裂 n × 4 → n × 8 核数翻倍,匹配孢位数 孢子成形 8 × 单孢 直线排布,纺锤体取向 (序即基因型,可作 四分体分析材料) ───────────────────────────────────────────── 孢子排列样式:直列型 / 叉状型 / 螺旋型 → 系统发育标记
三、演化逻辑:功能模块库加调控语法
不妨把子囊菌门想象成一座活体图书馆,但它的目录体系不是一排排直线排列的书架,而是一张允许任意跳转的超文本网络。分子系统发育给出的结论曾令形态学派措手不及:酵母类、盘菌类这些耳熟能详的形态单元压根不是单系分支,而是不同谱系各自长出相似外貌后凑成的"功能俱乐部"。真正能解释演化走向的,是一批跨纲保守、随时可以拔插复用的功能模块。
产毒性状是头号案例。赭曲霉毒素由聚酮合酶与非核糖体肽合成酶组成的杂合基因簇负责编码,同样的簇在曲霉属、青霉属以及若干炭角菌目成员中均有记录;然而三者的基因排布、调控元件乃至侧翼残留的转座子痕迹互不相像——全基因组共线性比较把 verdict 交待得明明白白:垂直遗传不是答案,至少三次独立的水平转移才是。植物病原效应子的分布同样呈"乐高式":稻瘟病菌与油菜病原菌的效应子共享高度同源的蛋白折叠域,可启动子序列与甲基化修饰各走各路——同一枚功能零件,被不同后代谱系抓去组装针对不同宿主的识别策略。
于是可以把这套体系压缩成两套子系统的配合:其一,功能模块库,供应可调用的生化能力——降解酶系、次生代谢骨架、效应子折叠域;其二,调控语法集,决定某个模块在什么组织、什么时刻、以多大强度开工。跨门比较给出的量化结论是:以启动子顺式元件密度为标尺,子囊菌的调控语法复杂度明显高于担子菌和壶菌,落差最大的正是胁迫应答与发育转换这两类基因的上游区域。换言之,这个门取胜的筹码不是基因数量,而是写在基因前面的"编程语言"——有限的基因组因此兑换出指数级的功能出口。举一个具体场景:一株土壤里的腐生炭角菌碰到植物根系渗出物后,几个小时内就能重写自己的调控配置,让原本沉默的植物激素合成基因与根面黏附素同步上线,从分解者一转身变成潜在的内生共栖者。
产毒基因簇的跨谱系分布检验(示意数据) ───────────────────────────────────────────── 类群 簇结构 调控元件 侧翼转座子 共线性 ───────────────────────────────────────────── 曲霉属 A PKS-NRPS Pa_1 型 有(Tad1) 基准 青霉属 P PKS-NRPS Pc_2 型 无 断裂 炭角菌目 X PKS-NRPS Xyl_3 型 有(Mar1) 断裂 ───────────────────────────────────────────── 判读:簇结构同源但共线性断裂、侧翼转座子 各不相同 → 排除垂直遗传,支持 ≥3 次独立 水平转移
⚠️ 认知陷阱:看到某菌株"产毒"或"致病"就推断其近缘种也如此。次级代谢基因簇是可移动模块,黄曲霉毒素基因簇在曲霉属内多次独立起源与丢失——功能特征不能当谱系标签用。
💡 关键直觉:物种多样性的背后是功能模块的组合多样性。同一批乐高积木,换一套拼装说明书就能拼出截然不同的作品——子囊菌的高明在于说明书本身的演化速度比积木更快。
四、功能实现:白粉菌的多尺度耦合
把子囊菌的功能创新压缩成"一个突变点出一样新酶"的单线故事,是最常见的失真。真实的创新是四个尺度——亚细胞、细胞、菌落、菌群——上的同步跃迁。专性寄生的白粉菌,是解剖这场跃迁最合适的标本。
亚细胞尺度:代谢卸载与界面工程。 白粉菌弄丢了线粒体呼吸链复合体中的关键亚基,能量账本直接挂靠宿主——表面看是退化,实质是把基因组预算腾给了宿主界面工程。吸器膜上密布的转运蛋白以纳米级精度接管植物的磷酸盐、硝酸盐与糖转运体,架起单向的营养虹吸管道;它递出的小 RNA 被打包进囊泡送到界面另一侧,定点压制植物的免疫基因——免疫战被推到了表观遗传层面。
细胞尺度:自主导航。 菌丝顶端的蛋白聚合系统与微管末端结合蛋白组成闭环反馈,菌丝因此能在叶片蜡质层上走出毫米级的导航路线——绕开气孔保卫细胞这处机械堡垒,直插叶肉细胞间隙。原子力显微镜的原位记录显示,尖端碰到叶面微结构后,方向校准在毫秒内完成数次,落点误差角不超过 ±2°。
菌落尺度:几何策略。 分生孢子梗上的萌发位遵循斐波那契螺旋分布,让每一粒新生孢子在气流扰动下同时获得最大分离距离与最小自遮挡;数学建模的结果是,同等风速下,螺旋排布的孢子云覆盖面积是随机排布的 3.7 倍。
菌群尺度:化学联邦。 田间白粉菌群体依靠挥发性有机物互通消息;某一克隆遭遇杀菌剂压制时释放的应激挥发物,会促使相邻克隆上调外排蛋白,进而形成群体层面的抗性——"个体"与"群体"的分界线在这里开始变得模糊。
| 尺度 | 白粉菌的对应创新 | 工程学类比 |
|---|---|---|
| 亚细胞 | 代谢卸载、吸器转运、小 RNA 编辑 | 外包供应链与系统渗透 |
| 细胞 | 毫秒级方向校准的自主导航 | 自动驾驶的路径规划 |
| 菌落 | 斐波那契螺旋孢子排布 | 最优装箱算法 |
| 菌群 | 挥发性物质化学通讯与群体抗性 | 分布式预警网络 |
子囊菌生态位生成的三个维度
五、生态位生成:引擎的三维扩张
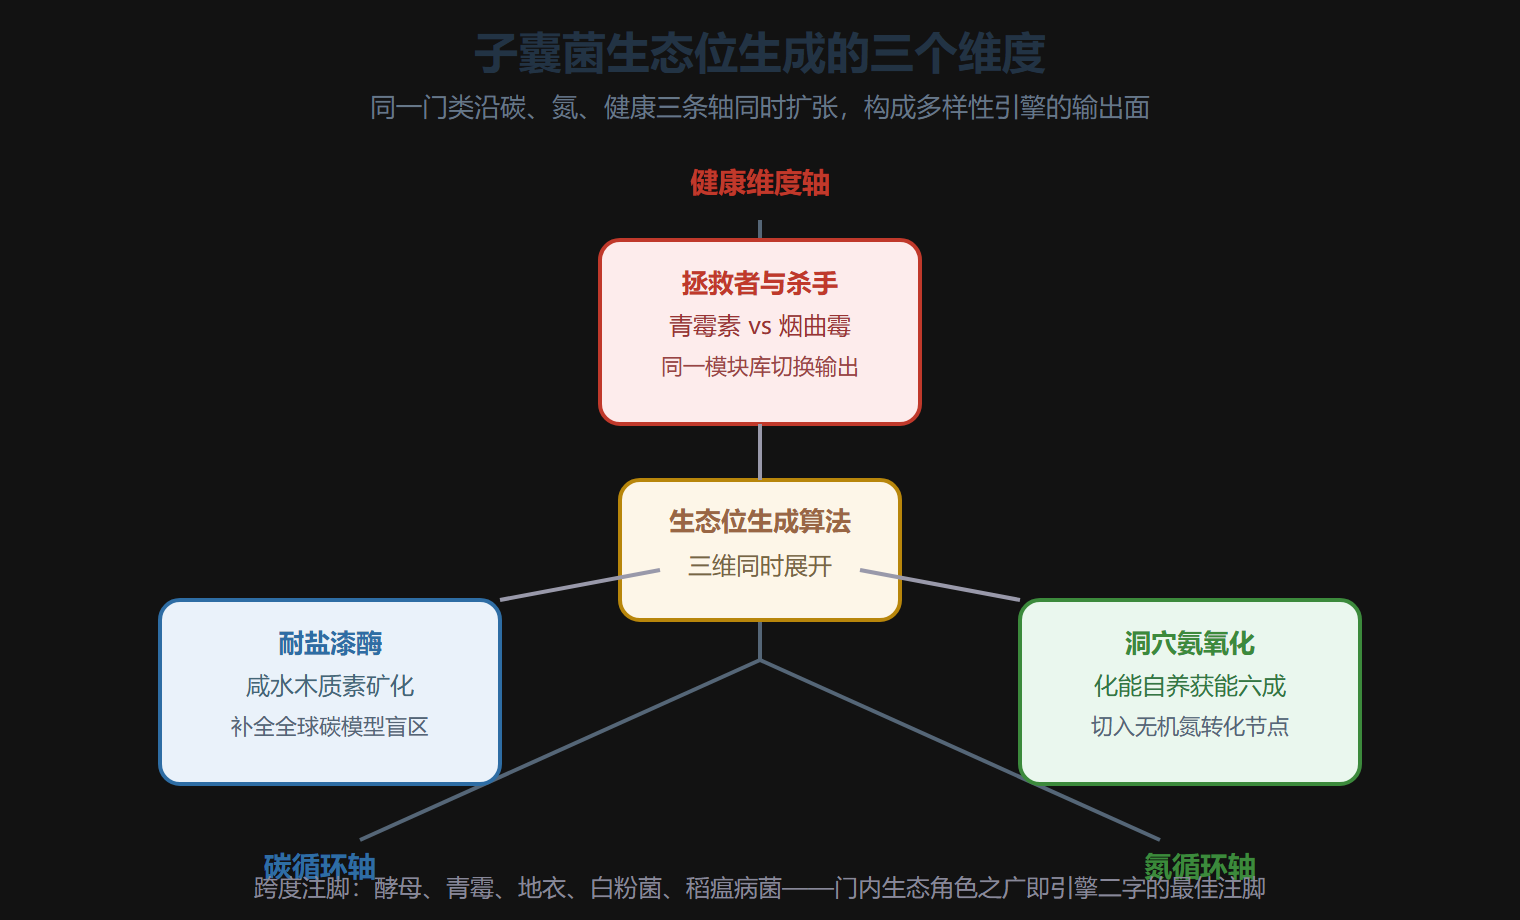
碳循环这一维,子囊菌的绝活是拆木质素与半纤维素之间的"分子胶水":漆酶借助介体循环制造高活性自由基,专挑木质素里最顽固的化学键下手。更超出意料的是海洋谱系手中的耐盐漆酶——即便身处高盐环境仍能保住约八成酶活,把木质素分解的本领一路带到河口与近海沉积物,也替全球碳循环模型补上了长期缺席的"咸水木质素矿化"条目。
氮循环这一维则改写了旧教科书。按传统说法,真菌只碰有机氮;而在广西白龙洞的硝化真菌群落里,多株分离物证明了相反的事实——在无光、有机质稀薄的条件下,它们能拿氨当唯一能源进行化能自养生长,能量代谢通量测定显示其六成以上的三磷酸腺苷直接产自氨氧化。真菌由此在氮循环的核心产能环节拿到了席位。
健康这一维上演的是一出悖论剧。青霉素的问世让子囊菌戴上拯救者的冠冕;可烟曲霉这类条件致病菌,又是免疫抑制病房里最令人头疼的威胁之一。宿主免疫稳态一旦崩塌,这些原本寄居呼吸道的腐生者会立刻调出它们在土壤里练成的铁螯合系统与热休克网络,把 37 摄氏度的体温读作应激信号,随即铺设生物膜——人体腔道在一夜之间被改造成适宜爆发的"人工土壤"。救星与杀手的角色由同一套模块库按宿主状态切换输出,这大概是生态位动态性最极端的注脚。
子囊菌门三维生态位扩张要点对照 ───────────────────────────────────────────── 维度 代表性状 生态后果 ───────────────────────────────────────────── 碳循环 耐盐漆酶(活性 木质素矿化范围扩至河口 保持约 80%) 与近海沉积物 氮循环 洞穴氨氧化产能 无光低有机质环境下 (>60% ATP) 化能自养生长 健康轴 铁螯合系统 + 腐生 ⇄ 条件致病双态 热休克网络 切换,生物膜定植 ───────────────────────────────────────────── 工程启示:单一模块库 + 状态依赖的表达 输出 = 生态位的可编程扩张
要点速记
- 结构基石:子囊把减数分裂编程、2–3 MPa 渗透压弹射与环境传感集于一身,螺旋解旋式释放堪称微尺度工程范本
- 模块库逻辑:产毒簇、效应子折叠域等模块在谱系间水平流动,物种多样性本质是模块组合多样性
- 语法优势:启动子顺式元件密度领先近缘门类,靠表达编程而非基因堆砌实现功能扩张
- 多尺度耦合:白粉菌在亚细胞到菌群四个尺度同时演化,功能创新是涌现现象而非单点突变
- 碳循环补缺:耐盐漆酶把木质素矿化延伸至咸水环境,修正全球碳模型盲区
- 氮循环切入:洞穴真菌以氨氧化获取六成能量,颠覆真菌不参与无机氮转化的旧范式
- 双重身份:腐生与致病是同一模块库在不同宿主状态下的输出切换
下一节转向另一位主角:担子菌如何把真菌从微观精度推向宏观形态的巅峰,让"形态本身成为生存算法"。