3.2 担子菌门:宏观形态主导者
3.2 担子菌门:宏观形态主导者
本节摘要:担子菌门的统治力不在物种数量(约占已描述种的两成),而在形态建构能力——它率先把真菌从隐匿菌丝推向生态舞台的视觉中心。本节沿三个层级拆解这套能力:锁状联合作为保证双核均等分配的"细胞宪法";子实体从水势梯度驱动破土到菌褶气流优化的工程学;菌管草酸钙晶体与疏水蛋白的微气候调控。最后看这套形态智能如何转化为菌丝皮革、形态驱动修复与病害预警三类应用。
本节导航
阅读完本节,你应当能够:
- 解释锁状联合如何解决双核系统的分配难题
- 描述子实体爆发式生长的水力驱动原理
- 说明菌褶排列的空气动力学意义
- 举出担子菌形态智能转化为生产力的三个应用范式
一、问题与直觉
如果子囊菌是执笔勾勒微观精妙的画师,担子菌就是挥毫泼墨的宏观造形师。一朵伞菌撑开菌盖的弧度,一簇珊瑚菌分枝的拓扑节奏,一片锈菌在麦叶背面掀起的橙色疱疹,一段蜜环菌地下菌索编织的森林互联网——这些不是偶然堆砌的形态,而是基因组、发育程序与生态位压力三重协奏下凝固的力学生长诗。
"宏观形态主导"不是指体型大——门内也有单细胞的红酵母属游走于叶际与冰雪——而是指它率先让真菌"被看见",并让形态本身成为功能实现与生态谈判的主动语法。担子菌每年主导全球约 170 亿吨木质残体降解的七成六,是森林碳库最主要的形态工程师;其外生菌根网络能在地下编织直径逾百米的跨植株养分通道。
二、第一层级:锁状联合的力学智慧
一切宏观形态的地基在细胞层面。担子菌的菌丝体普遍以双核状态存在——每个细胞携带两个遗传来源不同的细胞核。双核系统面临一个其他生物没有的工程难题:细胞分裂时如何保证每个子细胞都精确继承两个异质核,同时维持细胞壁连续性?
答案就是锁状联合。双核菌丝分裂时,顶端细胞先形成一个钩状突起,一个核进入钩内,另一个留在主干;随后钩尖与主干侧壁融合,形成新隔膜——每个子细胞稳定获得两个异质核。数学建模显示,锁状联合的曲率半径与菌丝直径接近黄金比例关系,这种几何构型使融合时的膜张力梯度最小化,避免细胞破裂。可以说,这是一套在微米尺度上解决了"质量控制和施工安全"双重难题的细胞工程方案,其精妙程度不亚于任何现代流水线上的同步装配机构。
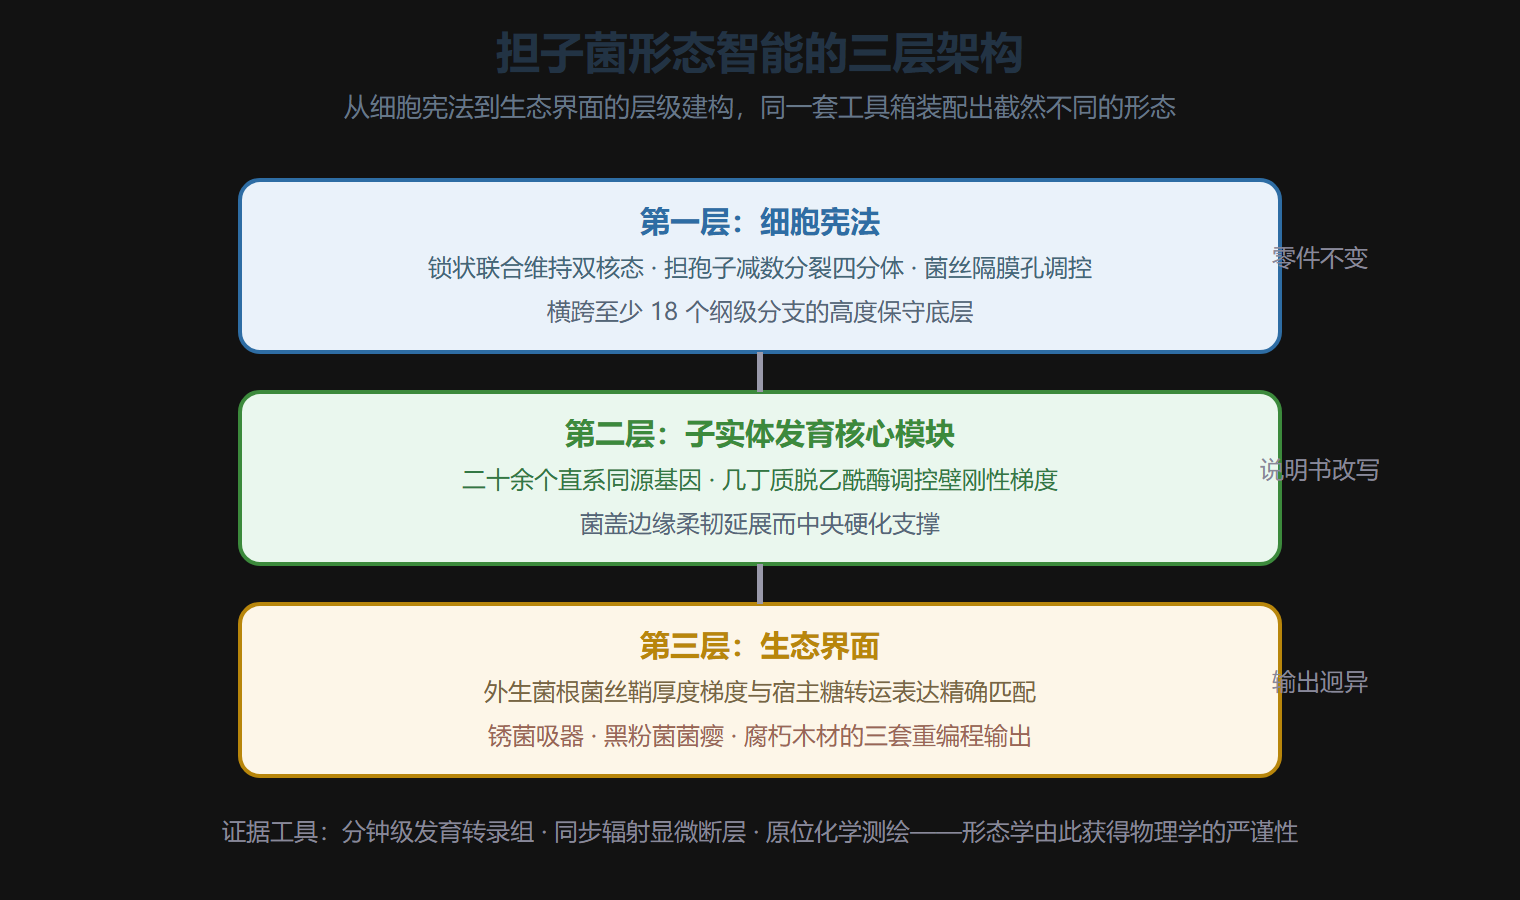
没有锁状联合,就没有稳定扩展的双核菌丝体;没有双核菌丝体,就没有大型子实体。把它称为担子菌的"细胞宪法"并不夸张。同一套遗传工具箱在不同谱系手里被改写出截然不同的输出:伞菌拿它搭子实体,锈菌把相关基因改装成侵染结构吸器,黑粉菌则调头去造塞满冬孢子的菌瘿。担子菌不发明新零件,擅长的是重写零件的装配说明书。
三、第二层级:子实体的水力与气动工程
某些伞菌能在 24 小时内增高 10 厘米,动力并非来自细胞分裂加速,而是水势梯度驱动的细胞膨压剧增。菌柄基部的贮水组织通过渗透调节积累高浓度甘露醇,形成强大吸水势;水分沿毛细管状菌丝束高速上涌,在菌盖下方形成膨压腔室;当腔室内压突破临界值,菌盖边缘的预置裂隙瞬间张开——"破土而出"的物理本质是一场水压驱动的定向爆裂。
菌褶的排列则是空气动力学的杰作。扫描电镜与流体模拟证实,平行菌褶阵列构成低雷诺数条件下的最优气流通道,使担孢子脱离菌褶后被微弱气流高效携带至远处,避免自交衰退。定量研究给出更精确的图景:标准菌褶阵列使孢子逃逸率显著提升,且菌褶间距与厚度之比近似常数,其数值恰好使结构共振频率避开常见环境湍流频段,防止结构疲劳。形态即流体力学,结构即生存算法。
一朵成熟香菇的菌盖每平方毫米分布着约 500 条菌褶,总孢子承载量超过十亿枚;菌柄基部的酶梯度分布带主动调节水分上行速率,使孢子释放窗口与晨间高湿期精准同步。从细胞器到器官尺度,担子菌完成了真菌界最强的结构整合。
| 结构层级 | 核心机制 | 生态功能 |
|---|---|---|
| 锁状联合 | 钩状突起保证双核均等分配 | 大型子实体的发育前提 |
| 菌丝束 | 毛细作用与渗透调节输水 | 长距离水分运输 |
| 膨压腔室 | 甘露醇积累形成水势梯度 | 破土与菌盖展开的动力 |
| 菌褶阵列 | 低雷诺数气流通道优化 | 孢子高效扩散 |
| 菌管晶体 | 草酸钙吸放湿 | 微气候湿度调节 |
四、第三层级:生态界面的多功能集成
以牛肝菌为例,其海绵状菌管表面覆盖数以万计的担子,菌管壁内嵌大量草酸钙结晶。这些晶体不只强化结构——雨季时它们吸收空气中水汽,缓慢释放以维持担子表面微环境的高湿度,确保担孢子顺利成熟与弹射。干旱胁迫下,菌管表皮细胞分泌疏水蛋白,自组装成纳米级防水膜防止过度蒸发。同一结构同时承担机械支撑、微气候调控、水分管理三重职能。
这种从细胞宪法到生态界面的层级建构,在系统发育上横跨了至少 18 个纲级分支的庞大谱系——从极端耐旱、能在低湿度墙体中持续代谢的墙霉属,到以类胡萝卜素合成通路充当光保护滤镜的红酵母,再到子实体高度分化的伞菌纲。宏观形态的"主导性",本质是发育可塑性的主导性。
支撑这种可塑性的是一套高度保守的"子实体发育核心模块":至少二十余个直系同源基因参与其中,涵盖信号通路同源物、同源框基因与特化的几丁质脱乙酰酶——后者精准调控菌丝细胞壁刚性梯度,使菌盖边缘保持柔韧延展而中央硬化支撑。同一套工具箱在锈菌中被重编程用于形成吸器,在黑粉菌中转向构建充满冬孢子的菌瘿:零件不变,装配说明书改写,输出便截然不同。解析这套说明书的手段也已成型:时间分辨发育转录组对子实体从原基到成熟做分钟级采样,灰盖鬼伞的研究发现菌盖展开前半小时,细胞壁松弛酶基因表达飙升数百倍,直接对应膨压释放的力学窗口;同步辐射显微断层扫描重建菌褶内部拓扑后做力学模拟,证实菌褶间距与厚度之比接近常数,恰好避开常见湍流频段的共振;原位化学测绘则把菌根界面的同位素流向与基因表达叠图,显示外生菌根菌丝鞘的厚度梯度与宿主糖转运蛋白表达强度精确匹配。形态学由此获得了物理学的严谨性。
担子菌形态智能的三层架构
⚠️ 观察误区:把子实体当作真菌的"本体"。你看到的蘑菇只是庞大地下菌丝体的繁殖结构,菌丝体才是常年经营的营养主体——子实体消失后菌丝体依然存活。
💡 关键直觉:担子菌证明了形态不是进化的被动副产品,而是功能得以实现的先决条件。理解一朵蘑菇的结构,等于读懂一份写了几亿年的工程方案书。
五、应用范式:形态智慧的产业转化
范式一:形态仿生材料。 受菌丝网络启发,菌丝皮革类材料以平菇菌丝在模具中定向生长约一周,形成具有真皮般纤维取向与孔隙梯度的生物材料,抗拉强度接近牛皮而碳足迹仅为其十几分之一。关键突破在于通过培养基中葡聚糖浓度梯度引导菌丝沿预设力学路径生长——形态即制造工艺:不需要切削与缝合,产品在培养室里直接长成。
范式二:形态导向的生态修复。 重金属污染土壤修复中,蜜环菌庞大菌索网络的表皮富含巯基蛋白,能特异性螯合镉离子并向子实体基部富集;通过人工诱导子实体形成,可实现重金属的"形态驱动式收割",效率较传统植物萃取提升数倍。
范式三:形态智能的农业预警。 锈菌夏孢子堆的橙色源于类胡萝卜素积累,其丰度与大气湿度正相关。部署图像识别系统分析无人机麦叶影像,通过孢子堆面积、密度、色度三参数建模,可提前 72 小时预测条锈病爆发风险,识别准确率达九成以上——宏观形态成为大气水文条件的生物传感器。三个范式合起来看更有意味:材料、修复、预警,分别把形态智能用于制造、环境与信息——担子菌的形态语法几乎可以在任何产业里找到对应的编译器。
一节小结
- 细胞宪法:锁状联合以黄金比例曲率解决双核均等分配与壁连续性双重约束,是一切大型子实体的前提
- 水力驱动:子实体爆发式生长源于甘露醇积累的水势梯度,破土本质是定向水压爆裂
- 气动优化:菌褶阵列构成低雷诺数最优气流通道,间距厚度比避开湍流共振频段
- 界面集成:牛肝菌菌管以草酸钙晶体与疏水蛋白同时完成支撑、调湿、防水三重职能
- 谱系广度:担子菌含至少 18 个纲级分支,宏观形态主导的本质是发育可塑性主导
- 产业转化:菌丝材料、形态修复、病害预警三范式证明形态智慧可直接变现
锁状联合过程分步记录(微分干涉观察) ───────────────────────────────────────────── 时序 事件 核分布 ───────────────────────────────────────────── t0 顶端出现钩状侧突 双核并立 t1 两核同步分裂(四核) 主干二、钩内二 t2 隔膜形成、钩尖弯向主干 主干子细胞单核 t3 钩尖与侧壁融合 子细胞恢复双核 t4 钩残余消解、继续伸长 顶端双核复立 ───────────────────────────────────────────── 意义:双核型在数以万计的细胞 分裂中零丢失——子实体发育的 遗传前提
伞菌扩张的水力气动参数(量级参考) ───────────────────────────────────────────── 参数 数值范围 来源方式 ───────────────────────────────────────────── 24h 增高 可达 10 cm 田间测量 驱动压 膨压 ~0.5–1 MPa 渗压计 上涌通道 菌丝束毛细流 染色示踪 甘露醇积累 贮水组织高浓 组织化学 开裂控制 菌盖预置裂隙 显微解剖 ───────────────────────────────────────────── 要点:细胞数几乎不增,全靠既 有细胞的液压伸长——工程学上 属"充气展开结构"
下一节把视野转向两位主角脚下的基座:壶菌、球囊菌与接合菌用三种截然不同的解法,回答"特化"这道演化题。