4.2 宏观分布格局:三重过滤器与四大引擎
4.2 宏观分布格局:三重过滤器与四大引擎
本节摘要:真菌不是地图上的墨点,而是活的拓扑结构——其"潜在分布"远大于"观测分布","观测分布"又远大于"功能分布"。宏观分布由嵌套的三重过滤器塑形:行星尺度的大气环流与板块遗产、区域尺度的气候梯度场、局域尺度的生物互作围栏;气候协变、宿主牵引、干扰重塑与人类世印记四台引擎则持续驱动分布的移动与重组。本节最后落在三大应用范式:生物地理预警、共生体设计导航与气候韧性育种接口。
阅读收获
阅读完本节,你应当能够:
- 区分潜在分布、观测分布与功能分布三个层次
- 复述三重过滤器模型及反馈嵌套结构
- 说明局域过滤器中"共生拓扑跃迁"的含义
- 举出人类世印记引擎的两个具体机制
- 描述宏观分布研究的四重技术透镜
一、问题与直觉
谈"分布",很容易滑入静态地图式想象:热带浓密、寒带稀疏。但真菌孢子可随西风急流横跨太平洋,休眠体在深海沉积物中存续逾万年,水平转移的代谢模块可跨门重组——真菌的扩散与存续能力远超直觉。
真正的矛盾在这三个层次之间:能被气流带到的范围(潜在分布)、实际被检出的范围(观测分布)、以及真正执行生态功能的范围(功能分布)逐级收缩。一克南极干谷土壤里可能检出某地衣真菌的序列,但它是否在代谢、是否参与氮固定、是否形成共生体,是完全不同的问题。分布格局研究的核心,就是解释三级收缩的每一级"卡"在哪里。
这个解释还横亘着一道尺度鸿沟:单个孢子直径仅数微米,潜在扩散范围却可达数千公里;菌丝日均延伸数毫米,一个菌落的生命周期却可持续数百年;种群遗传分化可能在数代内发生,物种形成却需数十万年。高通量测序给出的是群落"平均脸",抹去了单个菌丝尖端的代谢决策;遥感影像覆盖上百平方公里,却分辨不了零点一平方毫米土块中的共生界面。当代分布研究的全部技术设计,本质上都是在给这道鸿沟架桥。
二、三重过滤器模型
第一重:行星尺度过滤器。 地球物理边界设定绝对上限。大气环流对孢子输送产生通道化效应——赤道辐合带成为热带真菌基因流的超级高速公路;板块运动遗留古老隔离屏障——冈瓦纳古陆分裂造成南半球白蚁共生鸡枞菌属的谱系地理断裂;全球碳氮循环格局宏观调控资源供给——亚马逊雨林凋落物碳氮比约 42 比 1,北方森林达 85 比 1,直接塑造腐生真菌功能群组成。
第二重:区域尺度过滤器。 在行星框架内,地形与气候交互生成梯度场。典型例证是热带雨林的"热点悖论":单位面积真菌物种数超温带十倍,但超过八成为未培养类群。这不是采样偏差,而是区域过滤器的精准显影——热带的微生境异质性指数达到全球峰值,迫使真菌向极窄的功能特化方向演化,大量类群因此丧失在标准培养基上的生长能力,却在自然基质中占据不可替代的代谢位点。
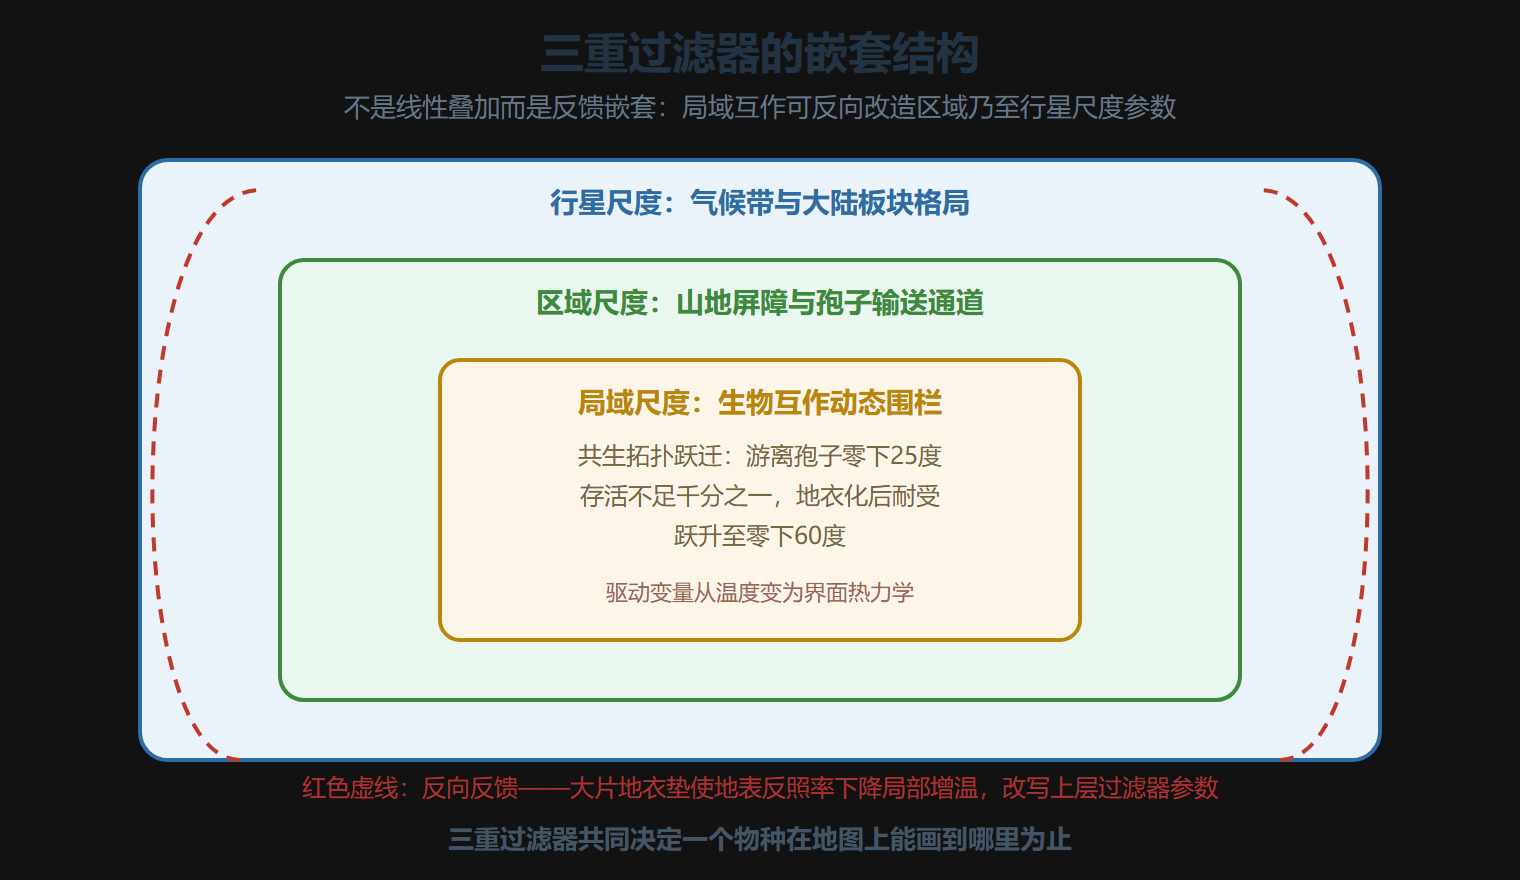
第三重:局域尺度过滤器。 最终决定定殖成败的是生物互作构成的动态围栏。此处发生关键的拓扑跃迁:当真菌从自由生活态转入共生或寄生态,其分布函数发生阶跃式重构。南极干谷地衣真菌的游离孢子在零下 25 度存活率不足千分之一,与蓝细菌形成地衣共生体后,整个复合体的冻融耐受阈值跃升至零下 60 度——真菌提供结构保护与水分捕获,蓝细菌提供还原力与固氮,共同分泌的胞外多糖形成纳米级冰晶抑制层。分布的驱动变量从单一温度转变为共生体界面热力学参数。
三重过滤器不是线性叠加,而是反馈嵌套:局域共生关系可反向改造区域微气候(大片地衣垫使地表反照率下降、局部增温),区域气候异常可触发行星尺度孢子输送脉冲,行星尺度的二氧化碳上升又正悄然平抑热带与温带间的蒸散梯度,重绘所有过滤器的参数边界。
三重过滤器的嵌套结构
三、四大驱动引擎
气候协变引擎。 真菌对温度与湿度的响应绝不独立:热带真菌的最适温度区间与高湿度构成强协变对;北极地衣真菌的冷适应则表现为温度敏感性与紫外耐受的负协变——低温下 DNA 修复酶活性下降,却同步上调黑色素合成屏蔽辐射。协变性使单一变量预测模型失效,必须用多元协方差地理加权回归建模。
宿主牵引引擎。 对专性共生菌而言,宿主分布即其分布——但牵引力分层级:植物根系分泌物构成一级牵引,根际细菌代谢产物构成二级牵引。热带雨林红菇属真菌的分布热点与龙脑香科树木重叠度达 89%,但其幼苗定殖成败还取决于邻近假单胞菌菌株是否分泌特定挥发性有机物。
干扰重塑引擎。 火灾、伐木、放牧不单清除现有群落,更重设生态位空缺的几何形态。温带森林火灾后,某些木霉种群在 48 小时内爆发——其几丁质酶基因簇受热激启动子强烈诱导;而未受扰动对照点同种种群常年低于检测阈值。干扰是分布格局的时空重置键,也是理解"灾后群落从哪里来"的钥匙。
人类世印记引擎。 最具颠覆性的新变量:城市大气颗粒物表面吸附的真菌孢子,萌发率比清洁空气样本高三倍多——金属离子催化了活性氧信号通路;农田三唑类杀菌剂在全球土壤中筛选出携带多重耐药基因拷贝的抗性镰刀菌克隆,其分布前沿正以每年约 17 公里的速度向原始森林渗透。人类活动已从背景噪音升格为分布格局的主导演。
⚠️ 建模警示:任何忽略人类世引擎的分布模型都会系统性低估真菌群落的变化速率——贸易物流、杀菌剂选择压与城市微气候正在以远快于自然过程的节奏改写分布版图。
💡 关键直觉:分布格局的本质是生态位在时空尺度上的可解性表达——环境参数向量落入某真菌功能基因型定义的约束域时,分布才从概率变为现实;而这个约束域本身也在协同进化中持续形变。
四、四重技术透镜
| 引擎 | 驱动变量 | 典型案例 | 管理含义 |
|---|---|---|---|
| 气候协变 | 温度湿度耦合响应 | 热带最适温区与高湿强绑定 | 用多元协方差回归建模 |
| 宿主牵引 | 宿主分布加根际细菌 | 红菇热点与龙脑香重叠 89% | 育林先育共生 |
| 干扰重塑 | 火灾伐牧 | 火后木霉 48 小时爆发 | 干扰是重置键也是风险 |
| 人类世印记 | 污染物与杀菌剂 | 抗性镰刀菌年进 17 公里 | 已成主导变量,须入模型 |
解析如此复杂的格局需要多模态技术栈。第一重,环境 DNA 宏条形码终结培养偏见,但要警惕扩增偏好——富含 AT 的嗜极真菌检出率系统性偏低,前沿方案转向长读长靶向测序以提升分辨力。第二重,空间转录组原位成像:某未培养担子菌的高丰度序列只说明"它在这里",切片定位其纤维素酶与锰过氧化物酶基因的表达热点并与根系标记叠图,才能区分活跃参与者与休眠孢子库。纳米二次离子质谱与荧光原位杂交的结合则把分辨率推到亚微米级——有研究捕获到菌根菌丝接触根毛的瞬间,氮同位素富集速率在半分钟内跃升数倍,这是化学对话即时性的直接影像证据。第三重,功能基因组溯因:通过调控因子结合位点与开放染色质图谱的跨群体比较,逆向推演出末次冰盛期的选择印记如何塑造今天的表达谱。第四重,多主体模拟:把菌丝视为具有感知与决策能力的智能体,嵌入真实地形与百年气象数据,模拟气候变化情景下的空间扩张轨迹——最新模拟显示,安第斯高山真菌群落将在 2050 年前发生六成以上组成更替,但新优势种的分布前沿严格沿特定苔藓宿主的迁移廊道延伸,再次印证局域过滤器对行星尺度变化的调制。
五、三大应用范式
生物地理预警系统整合环境 DNA 监测网、气象数据与模拟推演,对病原真菌的潜在入侵廊道实时风险评分——曾提前 11 周预警哥斯达黎加云雾林的两栖壶菌病暴发,为保护区启动孢子沉降拦截争取到时间;即便拦截只换来数月缓冲,也足以让保护种群完成一次应急转移。共生体设计导航不再盲目引入通用型菌根菌剂,而是依据目标植物基因型、当地金属含量与降水变率三参数,从全球共生数据库匹配最优组合——澳大利亚干旱牧场修复中,经导航选用的根生菌特定单倍型使牧草磷吸收效率提升远超常规菌剂。气候韧性育种接口把分布模型反向嵌入育种流程:分析历年病害分布的收缩扩张轨迹,识别与抗性位点紧密连锁的"气候稳定标记",使育种家能在温室筛选出未来气候情景下仍维持共生稳态的品系。
要点串联
- 三级收缩:潜在分布大于观测分布大于功能分布,解释每一级收缩是分布学的核心问题
- 三重过滤:行星设定上限、区域生成梯度、局域完成定殖裁决,三者反馈嵌套而非线性叠加
- 拓扑跃迁:自由生活转入共生态时分布函数阶跃重构,地衣的耐受阈值跃升是典型
- 四台引擎:气候协变、宿主牵引、干扰重塑、人类世印记——最后一台已升格为主导演
- 技术透镜:宏条形码给坐标、空间转录组注入活性、基因组溯因刻历史、多主体模拟预言未来
- 应用三式:预警系统、共生导航、育种接口——格局解码的终点是理性干预
真菌纬度多样性梯度(多项研究汇总量级) ───────────────────────────────────────────── 纬度带 相对物种数 备注 ───────────────────────────────────────────── 热带 1.6–2.2 × 腐生菌梯度 (<23.5°) 温带基准 陡峭 温带 1.0(基准) 数据最充分 北方带 0.6–0.8 × 外生菌根菌 (>50°) 反而回升 ───────────────────────────────────────────── 修正项:菌根菌在北方针叶林局 部多样性可反超温带——功能群 要分层统计,不可混算
分布模型(SDM)在真菌上的参数要点 ───────────────────────────────────────────── 环节 动物常用做法 真菌适配修改 ───────────────────────────────────────────── 出现记录 点位 加基质/宿主 协变量 背景点 随机 限采样基质 范围内抽取 预测变量 气候+地形 增加凋落物 碳氮比层 验证 独立点位 独立季节+ 孢子观测 外推 谨慎 隐存种致 低估校正 ───────────────────────────────────────────── 经验值:不做隐存种校正的模型, 暖室情景下灭绝风险被低估约 三至五成
下一节回答一个此前悬置的问题:通过了三重过滤器、挤进同一克土壤的两百个物种,为什么没有在竞争排除中崩塌成 monoculture?答案是三重缓冲。