4.3 多样性维持的三重缓冲:空间、时间与资源
4.3 多样性维持的三重缓冲:空间、时间与资源
本节摘要:竞争排除法则预言同一生态位只容一个物种存活,但热带一克腐殖土中可共存两百种近缘真菌——这个悖论的答案是"空间—时间—资源"三重缓冲机制。空间维度上,菌丝网络把微生境切成马赛克,同一克隆的不同分支因局部化学差异激活不同代谢通路;时间维度上,土壤孢子库如同沉睡的种子库,休眠数十年等待干扰事件触发复苏,构成生态恢复的时间保险;资源维度上,拮抗、偏利共生与代谢分工编织出负反馈主导的动态平衡网。多样性由此不是静态库存,而是扰动中自我修复的涌现属性。
先说结论
阅读完本节,你应当能够:
- 陈述竞争排除悖论在真菌群落中的具体表现
- 解释菌丝微生境马赛克如何实现"一菌多能"
- 说明孢子库作为"时间保险"的生态功能
- 区分拮抗、偏利共生与代谢分工三种资源关系
- 用三重缓冲框架评价一个群落的多样性韧性
一、问题与直觉
生态学有条经典教条:两个物种若占据完全相同的生态位,其中一个终将被排除。可真菌群落公然违反这条定律——热带雨林腐木中一个微小生态位内可共存超过两百种亲缘关系极近的腐生霉菌;同一片温带森林的根际,数十种外生菌根菌共享同几种植宿主。如果竞争排除是铁律,这些群落早该塌缩成单一优势种。
答案不是推翻竞争排除,而是看清真菌群落的"生态位"被三个维度同时拉伸了:空间被菌丝切成马赛克,时间被孢子库拉长成数十年,资源被种间关系重新分配。每一维缓冲都给"排除"设置了一道缓冲带——三重叠加,多样性便有了自我修复的韧性。这也解释了为什么人工单一栽培的农田土壤真菌多样性如此脆弱:耕作把空间马赛克压成均质平面,轮作间隔打断孢子库的休眠节奏,广谱杀菌剂则剪断了资源关系网——三重缓冲被同时拆除,塌缩只是时间问题。
二、空间缓冲:菌丝微生境的马赛克
第一重缓冲藏在菌丝网络自身的物理结构里。菌丝在土壤孔隙中的生长不是均匀铺开,而是沿养分梯度与孔隙通道蜿蜒——这就把一个看似均质的土体切成了无数微尺度的"格子":相邻两个毫米级微域之间的酸碱度、氧化还原电位、有机质组成可以相差悬殊。
更关键的是"一菌多能"现象:同一克隆菌丝的不同分支,因局部化学微环境的差异,激活截然不同的次级代谢通路。实验室里仅改变培养基中微量铜离子浓度,就足以使一个真菌种群在三代内发生表型分化与交配型频率偏移——环境异质性不仅是外在筛选,还是菌丝主动利用的资源分配界面:哪个分支走向纤维素降解、哪个分支转向抗生素生产,取决于它所在的微格子。
这解释了为什么近缘种可以共存:它们在宏观上共享"腐生"标签,在微观上各自占据了不同化学参数的格子。竞争排除需要生态位完全重叠,而马赛克化的空间让完全重叠几乎不可能发生——一克土壤里的化学梯度数量,远超任何两个物种的生态位重叠所需抹平的差异数量。
具体案例能让机制落地。同一腐烂苹果表面,不同青霉菌株因抗生素谱系差异自发划出微观"化学疆界"——拮抗物质的扩散梯度就是它们的国境线。青霉素工业菌种库里那数百株形态几无差异的产黄青霉,全基因组分析揭示分属至少七个深度分化谱系:它们在同一批培养皿上共存了数十年而没有互相淘汰,靠的正是各自占据的底物微域与抑制谱差异。更微观的证据来自单细胞层面:白色念珠菌在人体不同组织微环境中激活的代谢通路组合存在显著差异——同一物种在不同器官里过的其实是不同的"化学日子"。空间缓冲的"格子",小到可以被一个宿主器官的氧梯度定义。
| 缓冲维度 | 机制载体 | 时间尺度 | 韧性贡献 |
|---|---|---|---|
| 空间缓冲 | 菌丝微生境马赛克 | 当代 | 化解竞争排除 |
| 时间缓冲 | 土壤孢子库休眠 | 数十年 | 干扰后重播种 |
| 资源缓冲 | 拮抗-偏利-代谢分工网络 | 持续运转 | 防止任一物种独大 |
三、时间缓冲:孢子库的沉睡资本
第二重缓冲回答另一个问题:森林大火或洪水把地表真菌群落清零之后,复苏从哪里来?答案在土壤孢子库——大量真菌孢子以休眠态埋藏在土壤中,可存活数十年,静待干扰事件创造空窗。
火后生态提供了一个清晰的观察窗口:火灾清除地表群落后的极短时间内,某些先前检测不到的真菌类群迅速占据凋落物层——它们的孢子一直躺在土壤银行里,热激与新鲜底物是唤醒信号。干扰在这里不再是多样性的敌人,而是多样性轮换的触发器:优势种的暂时退场,给孢子库里等候的次 rare 物种让出了舞台。
时间缓冲的深层意义在于它把群落从"当前环境的囚徒"解放出来:今天群落的组成,部分由几十年前沉降的孢子决定;今天产生的孢子,又为几十年后的群落预存了选项。群落因此拥有了跨越环境波动的记忆与预备。
四、资源缓冲:拮抗、偏利与代谢分工
第三重缓冲织在种间关系里,三种关系构成一张动态平衡网。
拮抗关系提供负反馈:青霉分泌青霉素抑制细菌、木霉分泌几丁质酶溶解病原菌菌丝——任何物种数量暴涨,都会遭遇邻居化学武器的密集打击,独大被系统性抑制。
偏利共生提供资源流:某些木腐菌降解木质素释放的小分子成为固氮菌的碳源,固氮固定的氮又反哺真菌——一方的代谢废物是另一方的食粮,物质在种间循环而非单向耗散。
代谢分工提供功能互补的极致案例:白蚁肠道与蚁巢中,多种真菌协同降解木质素与纤维素,各自负责链条上不同化学键的断裂——没有任何一个物种能独立完成整个过程,合作不是选择而是必需。分工的另一种形态是偏利链条:木腐菌降解木质素释放的小分子成为固氮菌的碳源,固氮固定的氮又反哺真菌——一方的代谢废物是另一方的食粮,物质在种间循环而非单向耗散,整个群落的资源利用效率因此高于任何单种培养的总和。
负反馈主导(拮抗抑制独大)、正反馈赋能(共生放大协作)——这张网的核心特性是:任何节点的过度扩张都会触发抑制,任何节点的暂时消失都有替补可循。功能冗余不是浪费,而是保险。
⚠️ 评估误区:用一次性采样评判群落健康。单一时点看到的"低多样性"可能只是孢子库休眠期——火灾后的裸地三年后可能恢复出比灾前更高的多样性,时间缓冲的账要拉长了算。
💡 关键直觉:把多样性理解为"过程"而非"库存"。库存会耗尽,过程会自我修复——保护实践的全部差异就藏在这个区分里:保护名单保护库存,保护过程才保护韧性。
五、三重缓冲的整合视图与验证
把三重视角叠加,就能解释开头的悖论:两百种近缘真菌共存于一个微生态位,因为它们在空间上各占马赛克格子、在时间上错峰活跃(休眠-复苏轮换)、在资源上分工互补。竞争排除法则没有被违反——它只是假设的"生态位完全重叠"在真实真菌群落中几乎不存在。
验证这套框架的证据来自多条线:马尔可夫转移矩阵分析十五年连续土壤样本,量化了不同功能类群间的状态转换概率——湿润期主导的腐生担子菌向干旱期优势的耐旱子囊菌转变存在明确临界阈值,转换的"燃料"正是孢子库;微宇宙实验证明环境异质性指数与共存物种数正相关;分子网络分析显示功能冗余度高的群落在干旱胁迫下碳通量稳定性显著更高。
三重缓冲与群落韧性
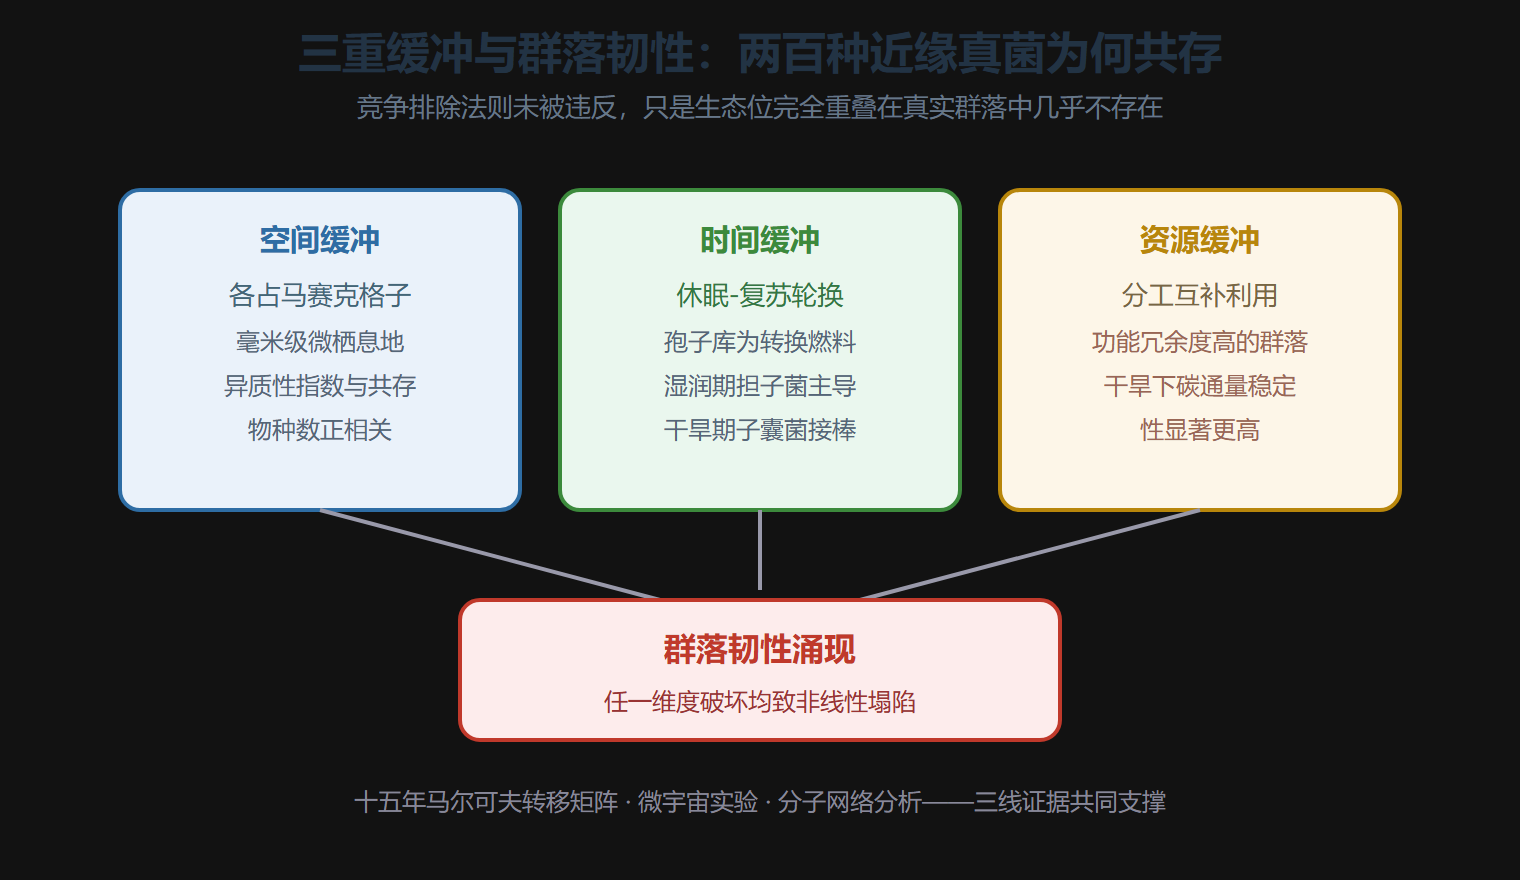
六、对管理的三句忠告
第一,别把干扰一律当敌人:适度干扰是孢子库轮换的触发器,全面排除干扰的"洁净管理"反而会让群落老化。第二,别只数物种数:功能冗余度与网络连接度比物种数更能预测群落在干旱或病害冲击下的稳定性。第三,别指望单点拯救:三重缓冲任何一个维度被破坏(生境均质化、孢子库耗竭、关键互作链断裂),多样性都会以非线性方式塌陷。
温故知新
- 悖论起点:两百个近缘物种共存于一个微生态位,直接挑战竞争排除法则
- 空间缓冲:菌丝把土体切成化学马赛克,同一克隆"一菌多能",近缘种各占一格
- 时间缓冲:孢子库休眠数十年,把群落从当前环境的囚徒解放为跨波动记忆者
- 资源缓冲:拮抗抑制独大、偏利输送资源、分工完成单种不可能的代谢链条
- 涌现属性:多样性是三重缓冲下自我修复的涌现属性,不是可清点的静态库存
- 管理三诫:善待适度干扰、看功能而非物种数、警惕缓冲维度的非线性断裂
三重缓冲机制对照(群落抗扰动测算) ───────────────────────────────────────────── 缓冲机制 起效尺度 恢复时间量级 ───────────────────────────────────────────── 孢子库休眠 局地 扰动后数年 (土壤种子库 内萌发补充 同功结构) 功能冗余 群落 即时顶替 (多物种共担 (周-月) 同一功能) 菌丝体潜存 景域 扰动间期 (基质内潜伏) 持续数十年 ───────────────────────────────────────────── 叠加效应:三重俱全的样地,多 样性恢复速率约为仅有单重缓 冲样地的四倍
缓冲完整性诊断打分卡(样地级) ───────────────────────────────────────────── 项目 0 分 2 分 4 分 ───────────────────────────────────────────── 土壤孢子库密度 <10^2/g 10^2–10^4 >10^4 功能冗余度 单优势 2–3 种 ≥4 种 种承担 共担 共担 潜伏菌丝检出 无 零星 连续 基质残留连续性 清除 碎块化 完整 ───────────────────────────────────────────── 总分 <6 → 高风险样地,优先纳入 监护响应序列(对照 5.3 节)
下一章转向人间:这套种群与群落知识如何兑现为菌株工程、生物安全治理与保护实践——以及为什么干预必须以对种类生态位的敬畏为前提。