2.1 视蛋白光循环如何改写膜电位
2.1 视蛋白光循环如何改写膜电位
本节摘要:微生物视蛋白用全反式视黄醛吸收光子,异构为 13-顺式,驱动七次跨膜螺旋重排,从而打开通道或推动泵循环。膜电位是否被改写,取决于开放态寿命、单通道电导、表达密度和细胞原有输入阻抗。不懂光循环,就无法理解后来每一个突变位点为什么改的是速度而不是“亮度”。
阅读收获
阅读完本节,你应当能够:
- 对比动物视紫红质与微生物视蛋白的视黄醛异构方向
- 说明通道开放、脱敏、关闭如何映射到放电能否跟随脉冲
- 解释为何同样的光强在高阻抗细胞上更容易过阈
- 区分光电流、热效应和内源光敏电流三种“见光就变”的来源
- 用光循环语言读懂快关突变与稳态阶跃突变是在锁不同的中间态
一、同一套视黄醛,两条完全不同的账
动物视紫红质的暗适应态是 11-顺式视黄醛。光子把它打成全反式,受体变成能催 G 蛋白的机器,随后视黄醛脱落,需要酶促再生。这是视觉的放大与复位逻辑。微生物视蛋白相反:暗适应态常常是全反式,光驱动变成 13-顺式,视黄醛多数时候不离开蛋白,光循环走完自己复位。对神经工程师,这意味着:你移植的是一台自带复位的离子机器,而不是一套需要补全视觉酶系统的相机。
七次跨膜螺旋提供机械杠杆。视黄醛像一根塞在螺旋束中央的曲轴。异构化扭动第 6、第 7 螺旋,泵型蛋白沿内部残基把质子或氯离子接力传递;通道型蛋白则让螺旋之间出现一条含水孔。孔一旦连通胞内外,离子按电化学梯度走,不按光子个数走——这就是通道比泵更能在毫秒内改膜电位的原因。
把这套机制说成“见光就放电”过于粗鲁。见光只保证构象开始走循环。放电还要求:开放态的电导积分足够把膜电容充到阈值,并且关闭足够快,以免下一次脉冲叠在尚未结束的平台上。2005 年能成功,是因为通道视紫红质-2 的循环碰巧落在这个窗口;后来所有突变,都是在窗口的左沿或右沿上拧螺丝。
二、开放态寿命,才是跟随频率的硬上限
把通道看成一扇弹簧门。开门快,说明脉冲前沿能及时去极化;关门慢,说明门还敞着时下一个脉冲已经到来,细胞被按在去极化平台上,时间编码糊成一团。通道视紫红质-2 的关闭时间常数大约十毫秒量级,粗算能比较干净地跟随几十赫兹以下的脉冲;再往上,脉冲间隔短于关闭,平台电流开始主导。这就是为何研究伽马节律的人很快嫌弃野生型,去要 E123T 一类快关突变。
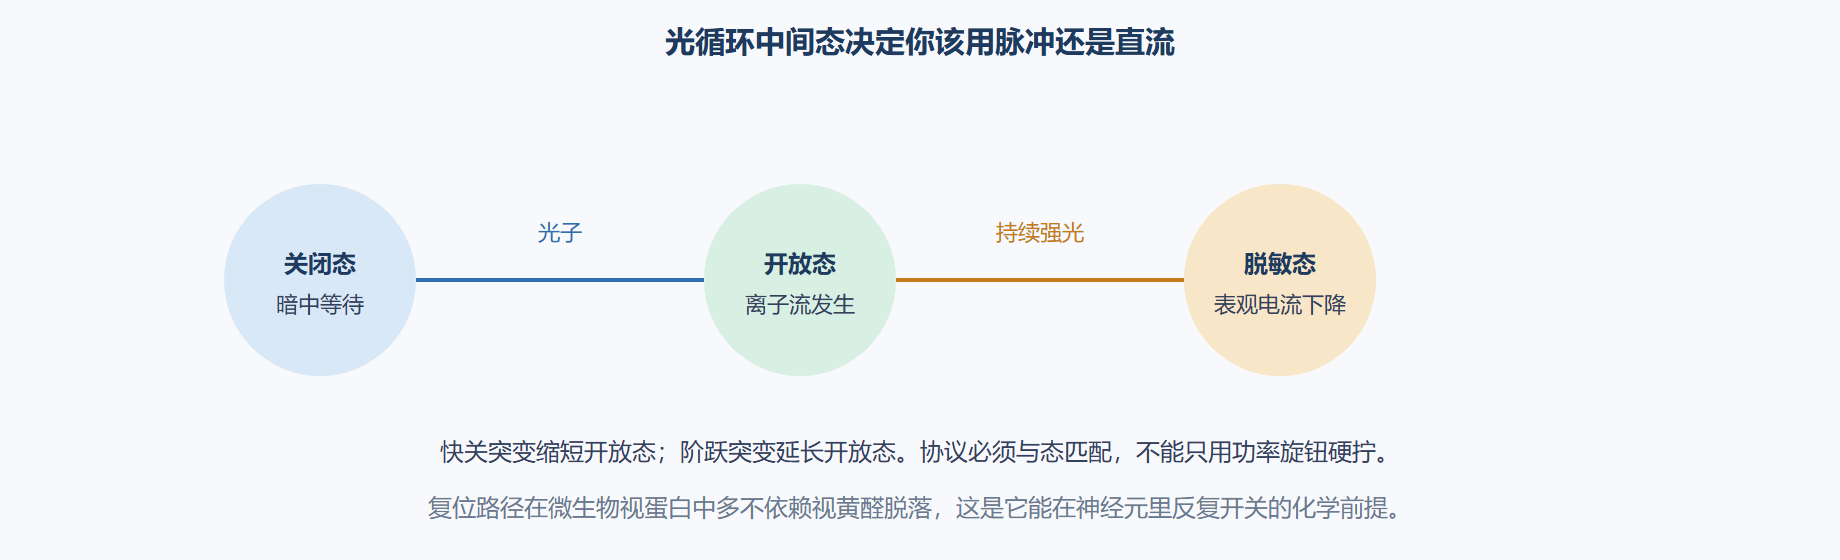
还有一个常被忽略的态:脱敏。连续光照下,通道会掉进对光不那么敏感的中间态,表观电流下降。培养皿里用很长的直流光“按住”细胞,看到的衰减不一定是细胞累了,而可能是光循环被赶进旁路。阶跃型突变故意把循环锁在开放附近,用弱光维持持续去极化,适合模拟紧张性输入;脉冲型实验则要避开这条旁路。选错态,等于拿直流电源去弹钢琴。
单通道电导并不惊人。真正能过阈,靠的是膜上堆积的通道数量乘以驱动势。高输入阻抗的中间神经元,较少通道就能推动电压;低阻抗的大锥体细胞,同样表达量可能只换来亚阈值波动。所以“这个视蛋白电流更大”永远要连着细胞类型说。把培养海马细胞上的漂亮脉冲,直接许诺给体内齿状回颗粒细胞或心肌细胞,是跨细胞类型的汇率错误。
| 光循环参数 | 实验上你看到什么 | 工程上通常怎么改 |
|---|---|---|
| 开门时间 | 脉冲后第几毫秒出现去极化 | 多数已经够快,不是第一瓶颈 |
| 关门时间 | 最高能跟随的脉冲频率 | 快关突变,牺牲部分电流 |
| 脱敏 | 持续光照下电流掉下来 | 改中间态,或改用脉冲协议 |
| 离子选择性 | 去极化还是超极化,是否夹带钙 | 改孔道残基,或换家族 |
| 表达密度 | 同样光强是否过阈 | 启动子、病毒滴度、膜转运信号 |
⚠️ 常见坑:把“光电流大”当成唯一指标。电流大但关不掉,高频刺激会变成持续去极化,环路结论会从时间编码偷换成状态编码。
💡 关键直觉:脉冲宽度必须短于你想写入的事件;关闭时间必须短于你想区分的两个事件之间的间隔。这是时间编码的会计规则,与品牌无关。
三、膜电位是细胞原有电导与外来光电导的和
光遗传学常被讲成外接开关,好像细胞原来的通道都放假了。真实情况是并联电路。光通道打开,等于在膜上并入一条新电导。最终电压由这条新电导与钾漏电导、内源钠通道、突触电导一起决定。抑制性输入正在灌氯的时候,同样的阳离子光电流可能过不了阈;细胞已经因为损伤而去极化时,微弱光电流又可能提前点火。
离子身份也改写故事。通道视紫红质-2 对质子很敏感,强光下局部 pH 会动。钙通透虽不如专门的钙通道,仍可能触发钙依赖的内源过程,让“纯电刺激”变成“电加生化”。抑制侧更尖锐:氯泵或氯通道的符号取决于氯的平衡电位。发育中的神经元、部分病理组织里氯偏高,本该超极化的工具会变成去极化。不测氯,只信商品说明书上的“抑制型”,是把生物物理交给市场部。
热是第三条暗线。光子没被视蛋白用掉的部分,最终会变成组织升温。升温本身就能改变通道动力学,还能打开温度敏感的内源通道。没有视蛋白的对照组织若也跟着重放电,你看到的可能是热,不是光循环。第 7 章会回到人为效应;这里只需记住:光循环解释的是你希望发生的那条路径,不是组织里唯一的路径。
并联电路直觉 光通道电导 ──┐ 钾漏电导 ──┼──► 膜电位 ──► 是否过阈 突触电导 ──┤ 热敏感电导 ──┘ 对照实验要关掉或拆开后两项
图 光循环中间态如何映射到实验协议
四、为何机理必须写进选型,而不能事后补课
实验室里最常见的失败不是“完全没电流”,而是“有现象但解释错了”。脉冲刺激下细胞跟着放电,研究者宣称复现了生理脉冲序列;其实关闭时间已经把相邻脉冲黏在一起,细胞经历的是平台去极化,内源钠通道按自己的节律打出额外的峰。结论听起来像时间编码,机制却是状态改变。只有把光循环的时间常数写在实验记录本第一页,这种错位才可以被抓住。
另一类错位来自光谱。视蛋白的吸收是一条宽峰,不是激光器标称波长上的 δ 函数。蓝光工具在黄绿光下仍可能有尾巴,红移工具在蓝光下更不是零。双色实验若只用滤光片的中心波长当正交证明,会把串扰写成特异性。机理要求你看的是整条作用光谱,以及在你的光强下尾巴还有没有电流。
我倾向在任何新视蛋白入库时先问四句,而不是先问文献引用次数。循环复位是否自洽?开放态寿命是否短于行为事件?离子符号在这种细胞的氯与钾梯度下是否仍指向你要的方向?对照组织在同等光强下是否安静?这四句比记住十个商品名更能避免把第 2 章读成购物清单。
select_opsin: if need spike timing: require off-time shorter than minimum interval if need tonic drive: consider step-function mutants, watch pH and calcium if need silencing: check chloride reversal before choosing pump or anion channel always: run light-only control without opsin
下一节把这些机理参数展开成家族树:兴奋、抑制、双向,以及那些并不改膜电位、却常被塞进同一抽屉的光控生化模块。
五、一段实验室对话:为什么同样的光在两种细胞上不像同一种工具
输入阻抗高的中间神经元,较小光电导就能过阈;低阻抗的大细胞需要更多通道或更强光。于是出现一种假争论:甲实验室说某变体“不可靠”,乙实验室说“非常好用”。他们可能都对,只是细胞类型不同。光循环参数是分子的,过阈是系统的。把系统结果写成分子缺陷,会让第 2.3 节的工程史出现幽灵工单。
另一段对话发生在 pH。通道对质子敏感时,强光局部酸化,内源酸敏感通道加入合唱。你以为在写视蛋白的电流,其实在写组织缓冲能力。缓冲随血流和麻醉变,于是同一协议在麻醉脑片和清醒动物上不像同一种物理。这不是要禁止实验,是要禁止把两种条件的电流数字直接比大小。
历史上,人们用培养海马细胞把光循环测得很细,再把数字带进体内。带得动的是关闭时间的数量级,带不动的是过阈所需功率。第 4 章的光场梯度会把培养皿里的漂亮脉冲变成位置依赖的剂量。机理章节必须在这里把账交给器件章节,而不是假装分子已经说完所有话。
重点提炼
- 异构方向不同:微生物视蛋白多从全反式走到 13-顺式并自行复位;动物视觉级联不是同一套账。
- 通道与泵的时间账:通道靠被动离子流在毫秒内改电压;泵受周转次数限制。
- 关闭时间限制跟随频率:野生型通道视紫红质-2 适合较低频率夹带,高频要快关突变。
- 脱敏与阶跃是不同协议:持续强光会把循环赶进旁路;直流按住和脉冲弹奏不能混用。
- 电压是并联结果:光电导必须战胜漏电导与突触电导,细胞类型会改写“电流是否够”。
- 离子符号会反转:氯工具在发育或病理氯梯度下可能从抑制变成兴奋。
- 热与内源光敏是平行路径:没有视蛋白的光照对照不是客气,是机理上的必需项。
下一节沿家族树看:兴奋、抑制如何分叉,以及为何阴离子通道的出现改写了抑制这一侧的物理逻辑。