2.2 兴奋抑制双向效应器谱系分化
2.2 兴奋抑制双向效应器谱系分化
本节摘要:效应器家族按净电荷方向分叉,而不是按商品名分叉。阳离子通道负责去极化点火;氯泵与质子泵先承担熄火;阴离子通道出现后,抑制侧才获得与兴奋侧接近的时间精度。光控 G 蛋白和环化酶是旁支,改的是代谢而不是毫秒放电。选错分支,等于用灭火器去点火。
先说结论
阅读完本节,你应当能够:
- 按净内向正电荷、净外向正电荷、阴离子内流三条物理路线给效应器归类
- 说明卤视紫红质与古菌视紫红质作为第一代抑制工具各自怕什么
- 解释阴离子通道为何构成抑制侧的机制换代
- 判断光控 G 蛋白实验能不能拿来当放电时间编码的证据
- 设计双色实验时避开光谱尾巴造成的假正交
一、家族树不是购物清单,是电荷方向的分化史
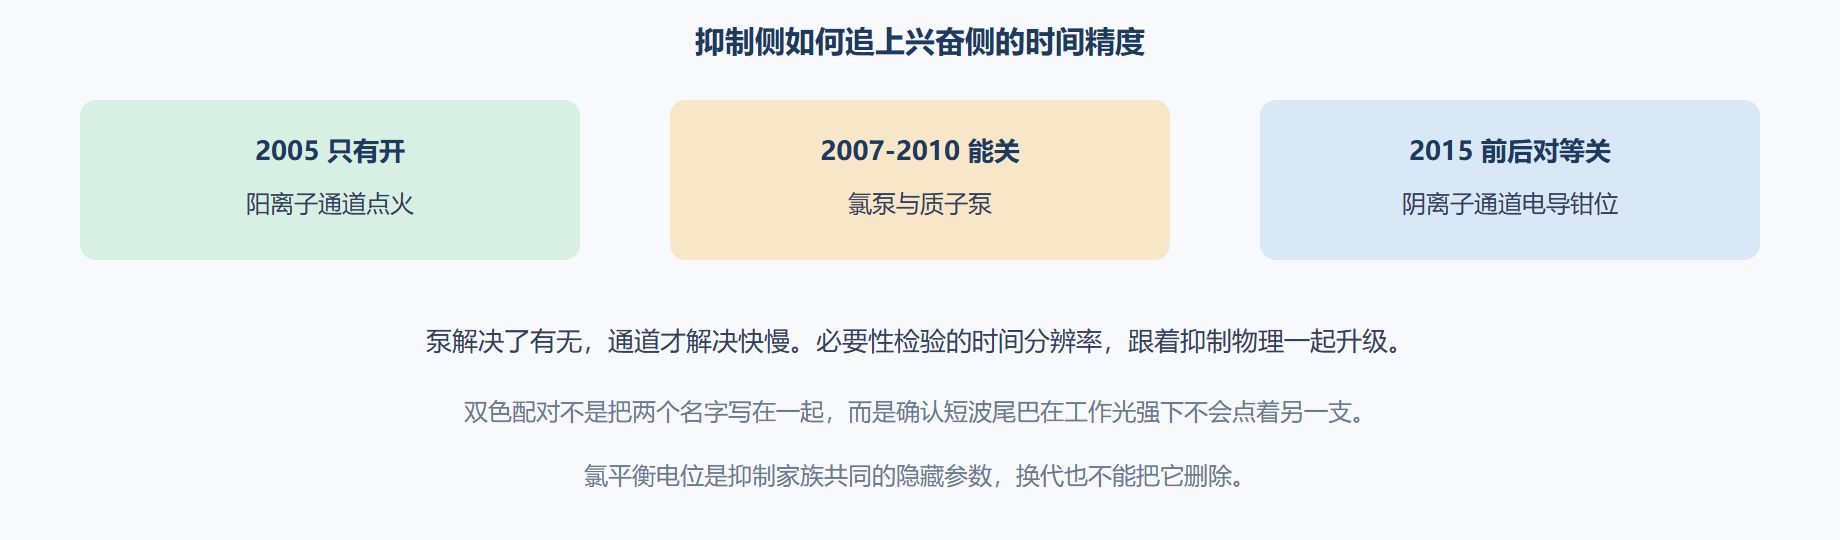
2005 年之后的几年,实验室手里几乎只有点火器。通道视紫红质-2 能让细胞说话,却不能让它闭嘴。环路问题立刻变成半边:你能证明“强迫这类细胞放电足够产生行为”,却很难证明“它们的放电是必要的”,因为关的手段仍是药物或损毁。抑制工具的出现,不是为了凑成对的美观,而是为了把必要性检验补进因果句。
第一批熄火器来自更早被认识的泵。卤视紫红质在黄光下泵氯内流,使膜超极化。它能工作,但光敏性低,常常需要更强的黄绿光,热负担上升;更麻烦的是氯的平衡电位。发育中神经元、部分中间神经元、损伤组织里细胞内氯偏高,氯内流不再超极化,甚至去极化。商品标签上的“抑制型”在这些细胞里会撒谎。
质子泵路线由古菌视紫红质一类分子在 2010 年前后进入神经实验室。黄绿光把质子泵出,细胞内相对变碱,膜超极化。它不直接依赖氯梯度,这是优点;代价是持续泵质子会改变 pH,可能牵动内源酸碱敏感通道。泵仍然受周转限制:要维持长时间静音,需要持续光照,热与光毒性跟着来。兴奋侧已经用通道说话,抑制侧还在用泵低声劝说,时间精度不对等。
二、阴离子通道:抑制侧终于拿到通道逻辑
真正改写抑制物理的是藻类来源的阴离子导电通道,例如来自隐藻的 GtACR 家族。它们不再一离子一光子地泵,而是打开氯或其他阴离子通路,让电导本身把膜电位拉向氯的平衡电位。若氯平衡低于阈值,细胞被钳在安静区;若氯平衡已经去极化,它们同样会暴露真相——但至少你面对的是电导钳位,而不是泵的缓慢超极化。灵敏度往往高于早期氯泵,这意味着更低光强、更少热。
工程化的氯通道如 iC++ 一类,走的是把阳离子通道孔道改离子选择性的路线。动机相同:给抑制侧一张能跟脉冲走的通道,而不是持续开着的泵。对实验设计,这意味着“静音 10 毫秒”第一次变得不像空话。你可以用与兴奋侧类似的脉冲宽度去问:这一小段放电是否必要,而不是把整段行为状态按灭。
双向控制随之出现。同一只动物里用蓝光点一类细胞、红光关另一类,或对同一通路做开闭配对,前提是光谱足够分开、表达足够隔离。Chrimson 一类红移兴奋工具与蓝光抑制工具常被配成对。配错峰距,蓝光会顺便点着红移蛋白的短波尾巴,正交性在光强一升高时崩溃。家族分化给了你两个旋钮,光学串扰会把两个旋钮焊死。
| 分支 | 代表逻辑 | 时间精度 | 最怕的生物学条件 | 历史角色 |
|---|---|---|---|---|
| 阳离子通道 | 净内向正电荷 | 毫秒,取决于关闭时间 | 过表达导致钙与 pH 夹带 | 2005 年点火原点 |
| 氯泵 | 主动氯内流 | 偏慢,需持续光 | 氯平衡电位反转 | 第一代能关 |
| 质子泵 | 质子外排 | 偏慢,需持续光 | 酸化或碱化副作用 | 不依赖氯的替代静音 |
| 阴离子通道 | 阴离子电导钳位 | 可接近兴奋侧 | 氯平衡仍决定符号 | 抑制侧机制换代 |
| 光控 G 蛋白 | 第二信使 | 秒到分钟 | 通路交叉与脱敏 | 代谢与可塑性问题 |
⚠️ 常见坑:在未测量氯翻转电位的组织里,把所有“抑制型视蛋白”当成等效静音按钮。发育脑、癫痫模型和部分中间神经元会让按钮反向。
💡 关键直觉:先问净电荷方向,再问是泵还是通道,最后才问商品名。名字是市场,电荷才是物理。
三、旁支:慢开关不该混进快因果
光控肾上腺素能受体、光控腺苷酸环化酶、隐花色素二聚化系统,常被放进同一本“光遗传学”目录。它们很有用,但回答的不是 2005 年那张验收单。它们改磷酸化、改环腺苷酸、改转录因子定位,时间尺度通常是秒以上。用它们“证明某群细胞的放电在第 200 毫秒决定了选择”,时间账对不上。
我主张在论文和教程里把词汇拆开:光控膜电位,光控信号通路。前者是离子通道与泵的历史;后者是化学遗传学的光学表亲。混用的代价是读者以为所有带 Opto 前缀的工具都能夹带动作电位。不能。有人用光控 G 蛋白看到行为变化,那是通路被改写的证据,不是放电时间结构被写入的证据。两种证据都值钱,但不能互相兑换。
双功能融合蛋白后来把钙指示剂和视蛋白绑在一起,试图同一群细胞又读又写。这是系统期的冲动,不是家族树的新主干。读与写的光谱、动力学、表达负担会互相打架。家族分化提醒我们:每加一种功能,就多一张工单。先把开和关的物理做对,再谈一身兼两职。
快因果 :阳离子通道 / 阴离子通道 问放电要不要在这一毫秒发生 慢调制 :光控G蛋白 / 环化酶 问这条代谢通路是否足够改变状态 化学遗传:DREADD 等 问分钟尺度的细胞类型扰动 不要用慢工具的结果,去支持快编码假说
图 开与关的物理对等是怎样补齐的
四、选型时把问题翻成物理,而不是翻成目录页
若问题是“这群多巴胺神经元在奖赏预测误差的那几十毫秒里是否必要”,你需要能开关脉冲的通道对,而不是质子泵的持续按灭。若问题是“把这一核团整体兴奋性按下去,看癫痫样放电是否收敛”,泵或长开放态工具可能更省光。若问题是“Gq 通路是否足以改变可塑性”,去找光控 G 蛋白,不要强迫通道视紫红质表演代谢。
我见过的典型错配有三种。第一种,用持续黄光泵抑制来声称自己做了精确时间否定,图表横轴却是分钟。第二种,用蓝光通道和红光通道做双色,却在高功率下同时激活两者。第三种,在幼年动物皮层用氯泵,得到“抑制反而增加放电”的惊奇结果,其实是氯反转的教科书现象。这些错配在家族树上看一眼就能预防。
谱系还会继续长。更红、更灵敏、离子更纯、膜定位更好的变体每年都有。新名字不自动构成新分支。先看它改的是电荷、速度还是光谱,再决定它是补丁还是换代。第 2.3 节专门讲这些补丁如何打到残基上。
五、谱系分化如何改变论文里的对照文化
只有点火器的年代,对照主要是无视蛋白光照。抑制工具入场后,对照必须增加符号检查:放电是减少还是增加,增加时是不是氯反转。阴离子通道换代后,时间分辨率提高,对照又增加一项:静音窗口是否真的短到能支撑“这一百毫秒必要”的句子。工具换代会改对照清单,清单不跟着改,换代只是换了一种更精致的误用。
双色实验把对照再加一层光谱。正确的对照不是“我们用了两种颜色”,而是在工作功率下分别只开一种光,看另一种工具有没有电流。很多正交声明死在这一层。谱系给了两个旋钮,光学串扰把旋钮焊死,第 4.1 节会从波长侧再讲一遍。这里只需记住:家族树画出来之后,实验表格里应出现交叉激活这一列,否则树只是装饰。
旁支工具的对照更常被忘。光控 G 蛋白实验若只做无光对照,不做通路阻断或第二信使测量,行为变化可能来自过表达或热。把旁支塞进快因果抽屉的人,往往也是省略这些对照的人。谱系分化的伦理是:你用哪一支,就按那一支的时间账准备对照,不许借用通道视紫红质的对照清单来给慢工具背书。
本章回顾
- 按净电荷归类:去极化靠内向正电荷,超极化靠外向正电荷或阴离子内流,名字是标签。
- 抑制先有泵后有通道:泵解决能关,阴离子通道解决关得快。
- 氯梯度是抑制家族的隐藏参数:标签无法覆盖发育与病理中的符号反转。
- 质子泵避开氯,却改 pH:没有无副作用的静音。
- 双色正交是光谱问题:峰距不够或功率过高,尾巴会点着另一支。
- 慢工具是旁支:光控 G 蛋白不能支撑毫秒级放电因果。
- 把科学问题翻成物理再选型:必要时刻用脉冲通道对,状态抑制用泵或长开放,代谢问题用生化光开关。
下一节落到残基和嵌合体:实验室如何把“关得慢、太蓝、不够灵敏”写成具体的氨基酸改动。