2.2 霍奇金-赫胥黎模型 (Hodgkin-Huxley Model)
2.2 霍奇金-赫胥黎模型 (Hodgkin-Huxley Model)
电缆方程解释了信号怎么走,却解释不了信号怎么"炸"。本节把第 1 章的被动电路升级:给钠和钾装上电压依赖的电导,动作电位的全部现象——阈值、全或无、上升支、回落、不应期——将从方程里自动长出来。这是 1952 年 Hodgkin 与 Huxley 在枪乌贼巨轴突上完成的工作,也是计算神经科学机制性解释的范本。
概念锚点:把"会放电的膜"写成一条方程
HH 模型在被动电路(膜电容 + 漏电导)基础上加了两条主动支路:
Cm · dV/dt = − ḡNa·m³h·(V − ENa) − ḡK·n⁴·(V − EK) − gL·(V − EL) + Iext
对照第 1 章的加权平均公式看,结构完全一样,唯一的变化是:钠、钾电导不再是常数,而是三个门控变量 m、h、n 的函数。三个变量各管一扇门:
- m:钠通道激活门的开放概率,去极化时快速增大(快变量);
- h:钠通道失活门的开放概率,去极化时缓慢减小(慢变量);
- n:钾通道激活门的开放概率,去极化时缓慢增大(慢变量)。
每个变量都服从同一形式的一阶动力学:dx/dt = αx(V)·(1−x) − βx(V)·x,其中 α 与 β 是电压依赖的开门、关门速率。HH 从电压钳实验的电流波形里反演出这些速率函数——例如 αm = 0.1(V+40) / (1−exp(−(V+40)/10))。幂次也有物理来历:一个钠通道需三个激活门全开且失活门未关才导通,故概率是 m³h;钾通道需四个门全开,故是 n⁴。后来的分子生物学证实钠通道确有四个同源结构域协同开门——模型的幂次猜对了分子结构。
动作电位的四个时相
图:HH 模型下一次动作电位的时相分解与电导变化
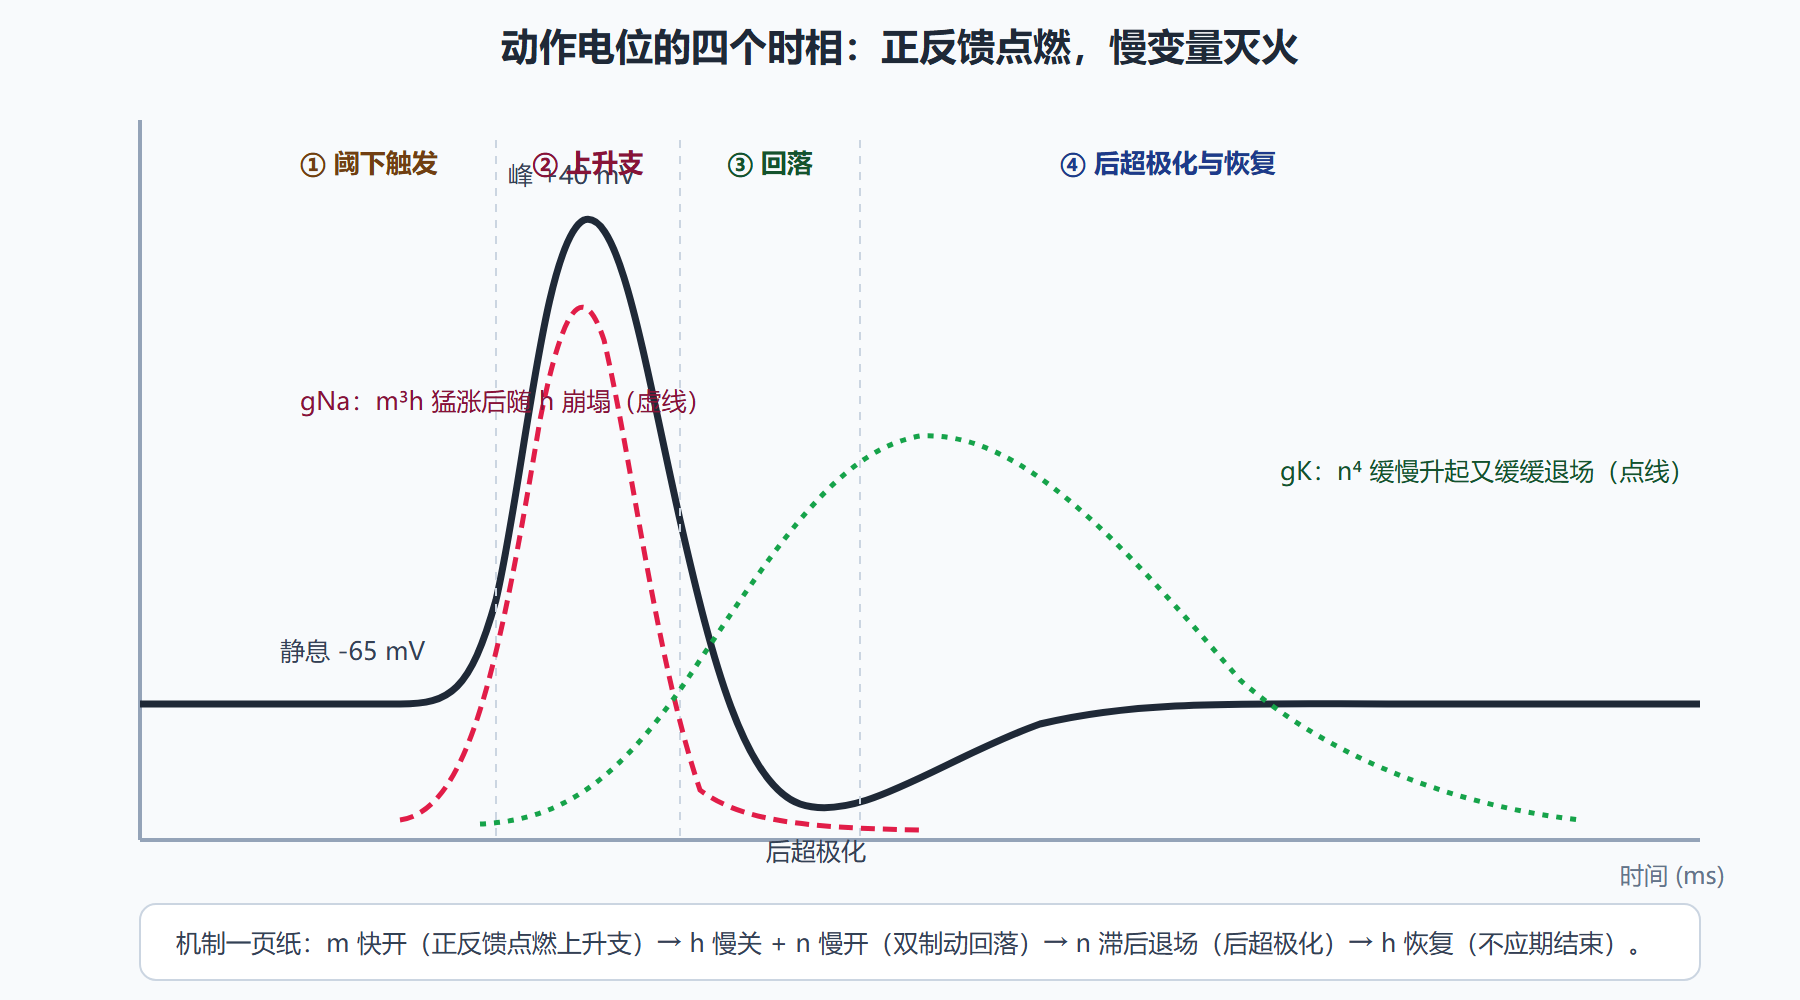
① 阈下触发。 弱电流注入使 V 从 -65 mV 缓慢上移。到阈值附近(约 -55 mV),αm 已经压过 βm:m 加速增大,钠电导 ḡNa·m³h 开始上升,钠内流进一步去极化膜——更多的去极化开更多的钠门。这是一个正反馈回路的入口,系统站在雪崩边缘。
② 上升支。 正反馈全速运转,m 在约 1 ms 内冲向 1,而 h 还来不及下降。钠电导暴涨几十倍,膜电位被拉向 ENa(约 +50 mV),实测峰值约 +40 mV。上升支的陡度正比于钠电导,是神经元兴奋性最直观的指标。
③ 回落。 两股制动几乎同时到来:h 随去极化持续减小(钠通道失活),钠电流自动断流;n 缓慢累积,钾电导升至峰值,强大的外向钾流把膜电位拽向 EK(约 -77 mV)。正反馈点燃、双制动灭火——脉冲的形状由快变量 m 与两个慢变量 h、n 的时间尺度差精确决定。
④ 后超极化与不应期。 膜电位回落途中越过静息值,因为钾电导退场比电压变化慢(n 是慢变量),短暂的净外向电流把 V 压到 -80 mV 附近。同时 h 的恢复很慢:失活的钠通道要等膜复极化后才能重新待命。这段双重滞后就是绝对不应期(钠通道几乎全部失活,无法触发)与相对不应期(部分恢复,但需要更强刺激)的机制来源。不应期限制了最高发放率,也保证脉冲只向前传导。
阈值与全或无:方程自然给出的性质
HH 方程里没有任何一处写着"阈值 = -55 mV"。阈值行为来自动力学结构:静息点是稳定不动点,当刺激电流把状态推过不稳定平衡的分界,系统就自动滑向"钠开钾关"的放电轨迹并完整跑完一圈——要么不点火,要么全幅完成,中间没有半截脉冲。这就是全或无的数学出身。刺激强度改变的是"推多深",不是"脉冲多大";信息因此只能编码在发放时刻与频率里,这正是第 4 章编码问题的物理前提。
概念代码:六十行复现一次放电
import numpy as np # HH 参数(经典枪乌贼轴突值) gNa, gK, gL = 120.0, 36.0, 0.3 # 电导 mS/cm² ENa, EK, EL = 50.0, -77.0, -54.4 # 平衡电位 mV Cm = 1.0 # μF/cm² def rates(V): # 门控速率函数(V 单位 mV) a_m = 0.1*(V+40)/(1-np.exp(-(V+40)/10)) b_m = 4.0*np.exp(-(V+65)/18) a_h = 0.07*np.exp(-(V+65)/20) b_h = 1.0/(1+np.exp(-(V+35)/10)) a_n = 0.01*(V+55)/(1-np.exp(-(V+55)/10)) b_n = 0.125*np.exp(-(V+65)/80) return (a_m,b_m),(a_h,b_h),(a_n,b_n) dt, T = 0.01, 50.0 # 步长 ms、总时长 ms V, m, h, n = -65.0, 0.05, 0.6, 0.32 # 静息初值 trace = [] for k in range(int(T/dt)): I = 8.0 if 5 < k*dt < 30 else 0.0 # 持续去极化电流 μA/cm² (am,bm),(ah,bh),(an,bn) = rates(V) dV = (-gNa*m**3*h*(V-ENa) - gK*n**4*(V-EK) - gL*(V-EL) + I)/Cm V += dt*dV m += dt*(am*(1-m) - bm*m) # 三个门各自演化 h += dt*(ah*(1-h) - bh*h) n += dt*(an*(1-n) - bn*n) trace.append(V) if abs(k*dt-12.0) < dt/2: print(f"t=12ms V={V:.1f} m={m:.2f} h={h:.2f} n={n:.2f}")
跑完把刺激电流从 8 降到 5:脉冲消失,只剩一个回到静息的小皱褶——阈值现象亲手可触。再把 h 的初值压到 0.1(模拟刚放过电的状态),同一刺激点不着火,这就是不应期的存在证明。
模型的边界与降级路径
HH 的代价是四个变量、每步四次函数求值——仿真百万神经元网络时撑不住。于是有了降级阶梯:FitzHugh-Nagumo 把四维压成二维相平面,保留正反馈与恢复变量的张力;Morris-Lecar 专研钙型节律;LIF 更激进,直接把脉冲事件化。每一级降级对应一次问题置换:研究通道药理必须留在 HH 层,研究网络节律可以降到二维,研究大规模编码直接用 LIF。降级不是妥协,是把问题域外的自由度清出去。反过来,当问题涉及树突上的通道分布、温度效应(Q10 修正)或通道噪声(把确定性速率换成随机开闭),又要在 HH 基础上升级——2.4 节的多室模型正是升级的空间维度。
💡 关键直觉:把 HH 看成"快正反馈 + 慢负反馈"的通用配方。脉冲如此,后续将看到的振荡、簇发放,本质都是不同时间尺度的变量咬合出的同一出戏。
问题:为什么 HH 参数是枪乌贼的,用到哺乳动物上还准吗?
不完全准,需要换参。枪乌贼轴突在 6.3 摄氏度下工作,哺乳动物 37 摄氏度的通道速率快得多(Q10 约三倍每十度);哺乳动物神经元的静息电位、通道亚型(Nav1.6 vs 枪乌贼通道)也不同。做法是保留 HH 的结构(激活加失活的门控框架),用目标细胞自己的电压钳数据重新拟合速率函数——这套"结构不变、参数换血"的流程就是现代电导基建模(conductance-based modeling)的标准操作。
问题:阈值到底怎么定义,模型里能算出来吗?
能,但它是轨迹性质不是电位性质。严格做法是把状态空间分成"回到静息"与"跑完全幅脉冲"两个吸引域,分界面上的最小刺激就是阈值——它依赖刺激的波形与持续时间。工程近似是取 dV/dt 超过某速率(如每秒 10 伏)的瞬间。两个定义在慢刺激下差异明显:缓慢爬升的电流会让真实的"阈值"随适应漂移,这是 HH 框架的自然结论,也提醒我们不要把阈值当成固定常数去教。
本节要点回顾
- 要点一:HH 在被动电路上加入 m、h、n 三个门控变量,钠电导 m³h、钾电导 n⁴。
- 要点二:动作电位四时相由快变量 m 与慢变量 h、n 的时间尺度差精确塑形。
- 要点三:阈值与全或无来自动力学分岔,不是方程里写死的数字。
- 要点四:不应期源于 h 的慢恢复与 n 的滞后退场,限制最高发放率。
- 要点五:HH 是降级阶梯的顶端——研究什么问题,决定留在哪一级。
方程很准,但太贵。下一节把四个变量压成两个甚至一个,看看能省多少、丢什么。