2.1 电缆方程与树突整合
2.1 电缆方程与树突整合
第 1 章的等效电路描述的是"一小块膜",但树突是绵延数百微米的管状结构,注入一点的电流会沿膜分流、泄漏、延迟。本节把这层膜铺成分布电路,得到神经科学里最基础的空间方程——电缆方程。它回答两个网络模型完全回避不了的问题:远处的突触输入到达胞体时还剩多少?到达时被磨圆了多少?
从一小段膜到分布电路
把树突切成一个个小圆柱段,每段膜都有电容 Cm 与漏电导 gL,相邻段之间靠轴浆电阻 Ri 连接——电流想从一段流到下一段,必须穿过这段内部电阻。一段膜的纵向电流 = 前方段的电流 + 本段经膜漏掉的电流。把这个电流守恒写细,就得到电缆方程(被动膜的一维形式):
τm · ∂V/∂t = λ² · ∂²V/∂x² − (V − Vrest) + (Rm/rt) · I(x,t)
两个无量纲化常数登场:膜时间常数 τm = Rm·Cm,典型值 10 至 30 ms,控制电压变化的快慢;空间常数 λ = √(d·Rm / (4·Ri)),细树突上典型 0.1 至 1 mm(实际皮层树突常在几十到几百微米),控制信号传多远。d 是纤维直径——注意 λ 与直径的平方根成正比:粗的管道漏得相对少、送得远,这是轴突为什么比细树突粗的物理原因之一。
指数衰减:突触位置的"话语权"
对稳态输入(电流注入一点后趋于平衡),电缆方程的解是指数衰减:
V(x) = V(0) · exp(−x / λ)
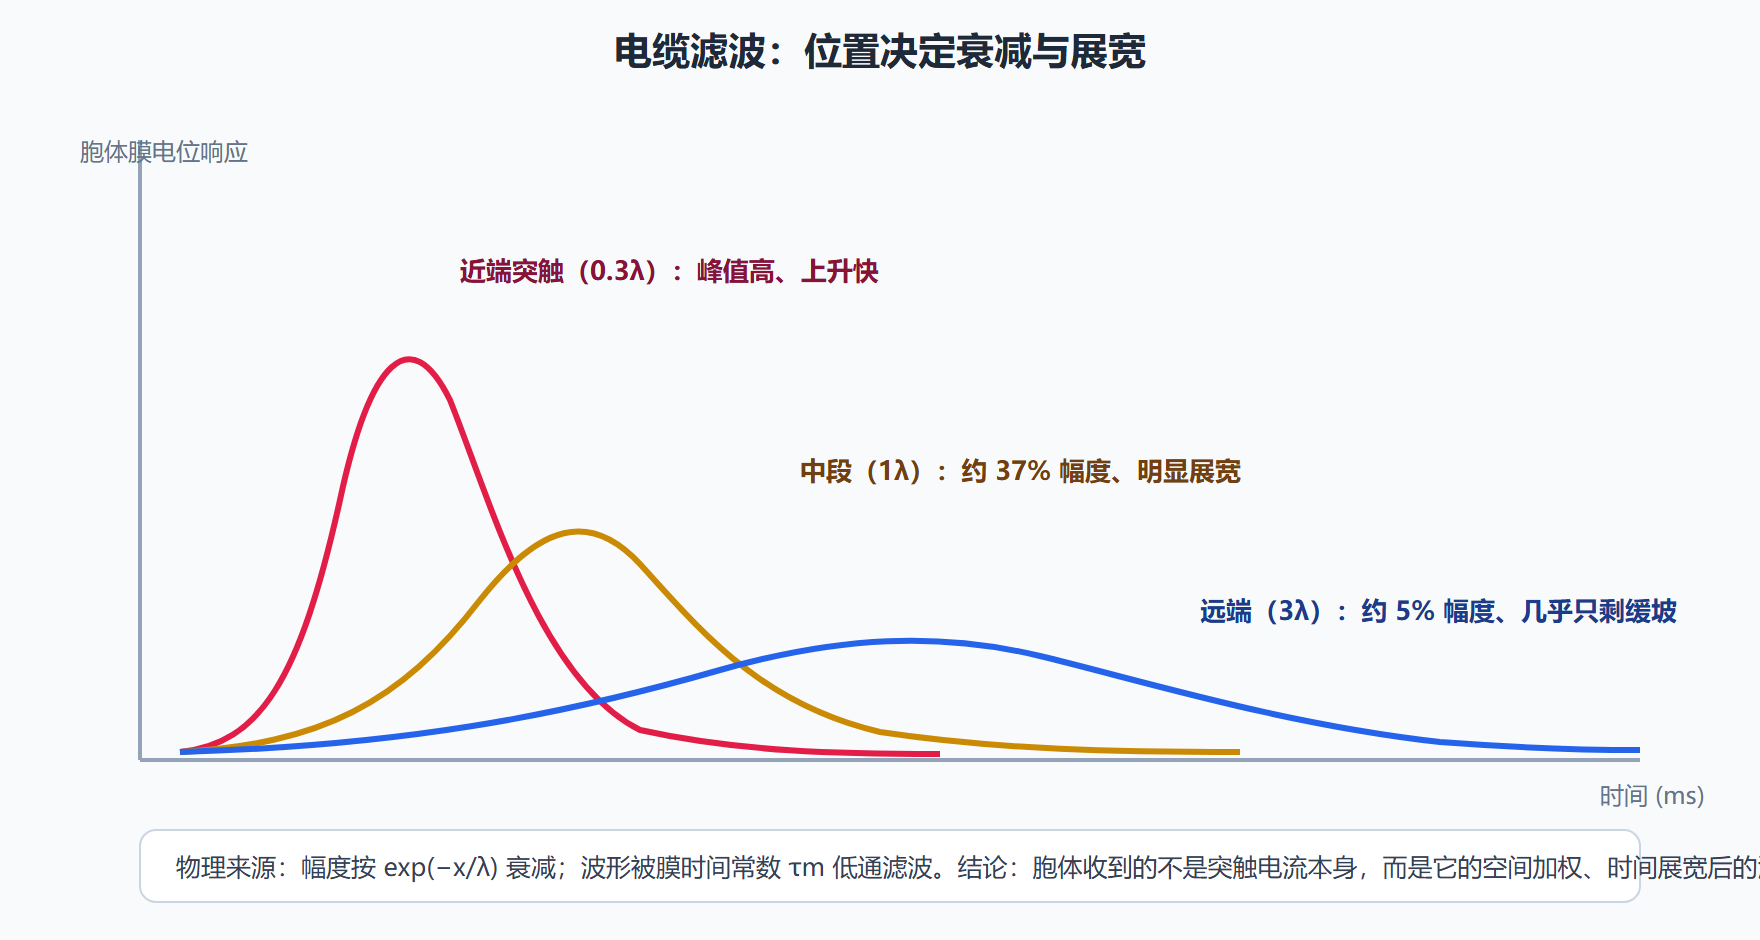
也就是说,每隔一个空间常数,信号只剩原来的约 37%。若树突远端的突触距胞体 3λ,到达胞体时只剩约 5% 的幅度。这个残酷的算术直接决定了树突电学的核心格局:同一个突触,长在哪里比强多少更重要。皮层锥体细胞顶部树突远端的输入确实带着更大的"等效权重"来补偿距离,这叫突触的位置依赖标定,是树突建模里反复出现的主题。
时间维度上,瞬态输入在传播中被膜电容磨圆:一个快如 1 ms 的突触电流,传到胞体后变成持续十几毫秒的缓坡(时间常数滤波)。所以胞体实际"看到"的,是成百上千个被拉长、压低、交叠的信号之和——树突不是电线,而是一台分布式低通滤波加积分器。
图:同一强度的突触电流,注入位置不同,到达胞体的波形截然不同
树突整合:不是加法这么简单
有了衰减规律,可以谈"整合"了。直觉版本说树突把输入加权求和,权重按位置衰减。真实情况有两层修正。
第一层是非线性叠加。膜电导是电压依赖的(即便被动树突,通道的非线性仍在),叠加的突触电位不是线性相加:两个同时到达的兴奋输入,联合效果常小于各自单独效果之和(饱和),而一个兴奋紧跟一个抑制的联合效果又可能超过线性预期。若抑制输入与兴奋输入在同一树突段上共定位,抑制主要通过提升局部电导把兴奋信号"分流"掉,这就是 1.2 节预告的分流抑制——它的效果取决于共定位程度,而不是抑制电位本身的深度。
第二层是树突的主动性质。许多树突膜上有电压门控钙通道、钠通道,局部强输入可以在树突上触发局部再生事件(如钙峰),让远端输入绕过电缆衰减直接广播到胞体。这让单个树突分支具备"与门"式的局部计算能力:只有同分支上多个输入协同激活才触发局部事件。树突从被动的加法器升级成了分布式的非线性处理器。
概念代码:数值观察电缆滤波
import numpy as np # 被动电缆:把树突切成 N 段,每段是 RC 电路,段间电阻耦合 N, dx = 100, 1.0 # 段数与段长(单位:λ 的 1/50 量级) tau_m = 20.0 # 膜时间常数 ms(典型值 20) lam = 1.0 # 空间常数,段长归一化后以 lambda 计 dt, steps = 0.05, 6000 V = np.zeros(N) def gaussian(t, t0=50.0, w=3.0): # 突触电流的时间包络:中心 t0、宽度 w 的 10 ms 量级脉冲 return np.exp(-0.5*((t-t0)/w)**2) for k in range(steps): t = k*dt Iin = np.zeros(N); Iin[10] = gaussian(t) # 注入在第 10 段(远端) # 电缆项:二阶空间差分 × lam^2/dx^2 lap = np.zeros(N) lap[1:-1] = (V[:-2] - 2*V[1:-1] + V[2:]) * (lam/dx)**2 lap[0], lap[-1] = lap[1], lap[-2] # 封闭端边界 V += dt/tau_m * (lap - V + Iin*100) # 欧拉积分 if abs(t-100) < dt/2: # 100 ms 时刻的快照 print("注入段:", round(V[10],2), " 半程:", round(V[55],2), " 胞体端:", round(V[-1],3))
把注入位置从第 10 段挪到第 80 段再跑一遍,观察胞体端峰值的变化——你会亲手复现"位置即权重"的规律,也能看到远端信号到达更晚、更缓。这段代码把 λ 与 τ 的物理意义从公式变成了可调的旋钮。
工程取舍:什么时候需要电缆方程
并非所有模型都要付出空间代价。判据很简单:输入在空间上是否需要区分。网络级仿真(成千上万个单元)用点神经元足够,因为问题在群体统计而不在单细胞细节;研究树突整合、突触定位、分支计算时,空间是主角,必须上多室模型(2.4 节)。中间态是"双室模型":胞体一室加树突一室,用一根耦合电导连接,代价小又能表达"远端输入被衰减"的核心事实——很多皮层模型用这个折中拿到了九成的解释力。
⚠️ 常见坑:把空间常数 λ 想成固定参数。λ 依赖膜电阻 Rm,而 Rm 会被突触电导动态拉低——抑制性输入密集时树突的有效 λ 缩短,远端信号衰减更狠。电缆性质是随活动状态变化的,不是常数表。
本节要点回顾
- 要点一:电缆方程把膜铺成分布 RC 电路,τm 控快慢、λ 控远近。
- 要点二:稳态信号按 exp(−x/λ) 衰减,每过一个 λ 只剩约 37%。
- 要点三:膜电容把快信号磨圆,胞体看到的是展宽后的混合体。
- 要点四:树突整合有饱和与分流的非线性,主动树突还能做局部非线性计算。
- 要点五:是否建空间,取决于问题是否关心输入位置——点模型、双室、多室是三级台阶。
下一节给这层被动膜装上电压依赖的电导:同一根方程,当钠电导开始自己长大,动作电位就自己炸出来了。
变式实验:把两个参数扫一遍
把 2.1 节的概念代码当实验台,做两组扫描能加深对常数的体感。第一组扫空间常数 λ:把段间耦合强度减半(等效 λ 缩短),远端信号的胞体峰值会掉一个数量级——树突变细或膜电阻下降都是这个效果;第二组扫时间常数 τ:把 tau_m 从 20 ms 改成 5 ms,远端信号变得更窄更弱——快膜让信号来不及积分就衰减了。两组扫描合起来的结论:慢而粗的树突是远端信号的朋友,快而细的树突只认近端输入。锥体细胞的顶树突之所以长而粗、且携带主动通道,正是为了对抗这套衰减算术。
问题:突触电流到底是电流源还是电导变化?
两者都对,取决于建模层级。电导型写法(gsyn 乘驱动电位)物理准确:突触打开的是离子通道,电流大小随膜电位变化,自带整流与饱和;电流型写法(直接注入电流脉冲)是线性近似,方便解析与大规模仿真。判别标准是膜电位会不会大幅接近翻转电位——会,就必须用电导型;不会(电位变化只有几毫伏),电流型的误差可以忽略。第 3.1 节会把这个取舍正式化。