3.1 突触传递的计算模型
3.1 突触传递的计算模型
第 2 章结束时,脉冲抵达了轴突终末。本节跟随这颗脉冲走完最后一程:它触发钙内流、驱动囊泡融合、释放递质、打开突触后通道,最终换成一股持续几毫秒到几百毫秒的突触电流。建模者关心的是:这条多级流水线能被压缩到什么程度而不丢关键性质。答案是:五步可以压成一条双指数方程,但有几条性质——延迟、方向性、符号——必须显式保留。
从流水线到方程
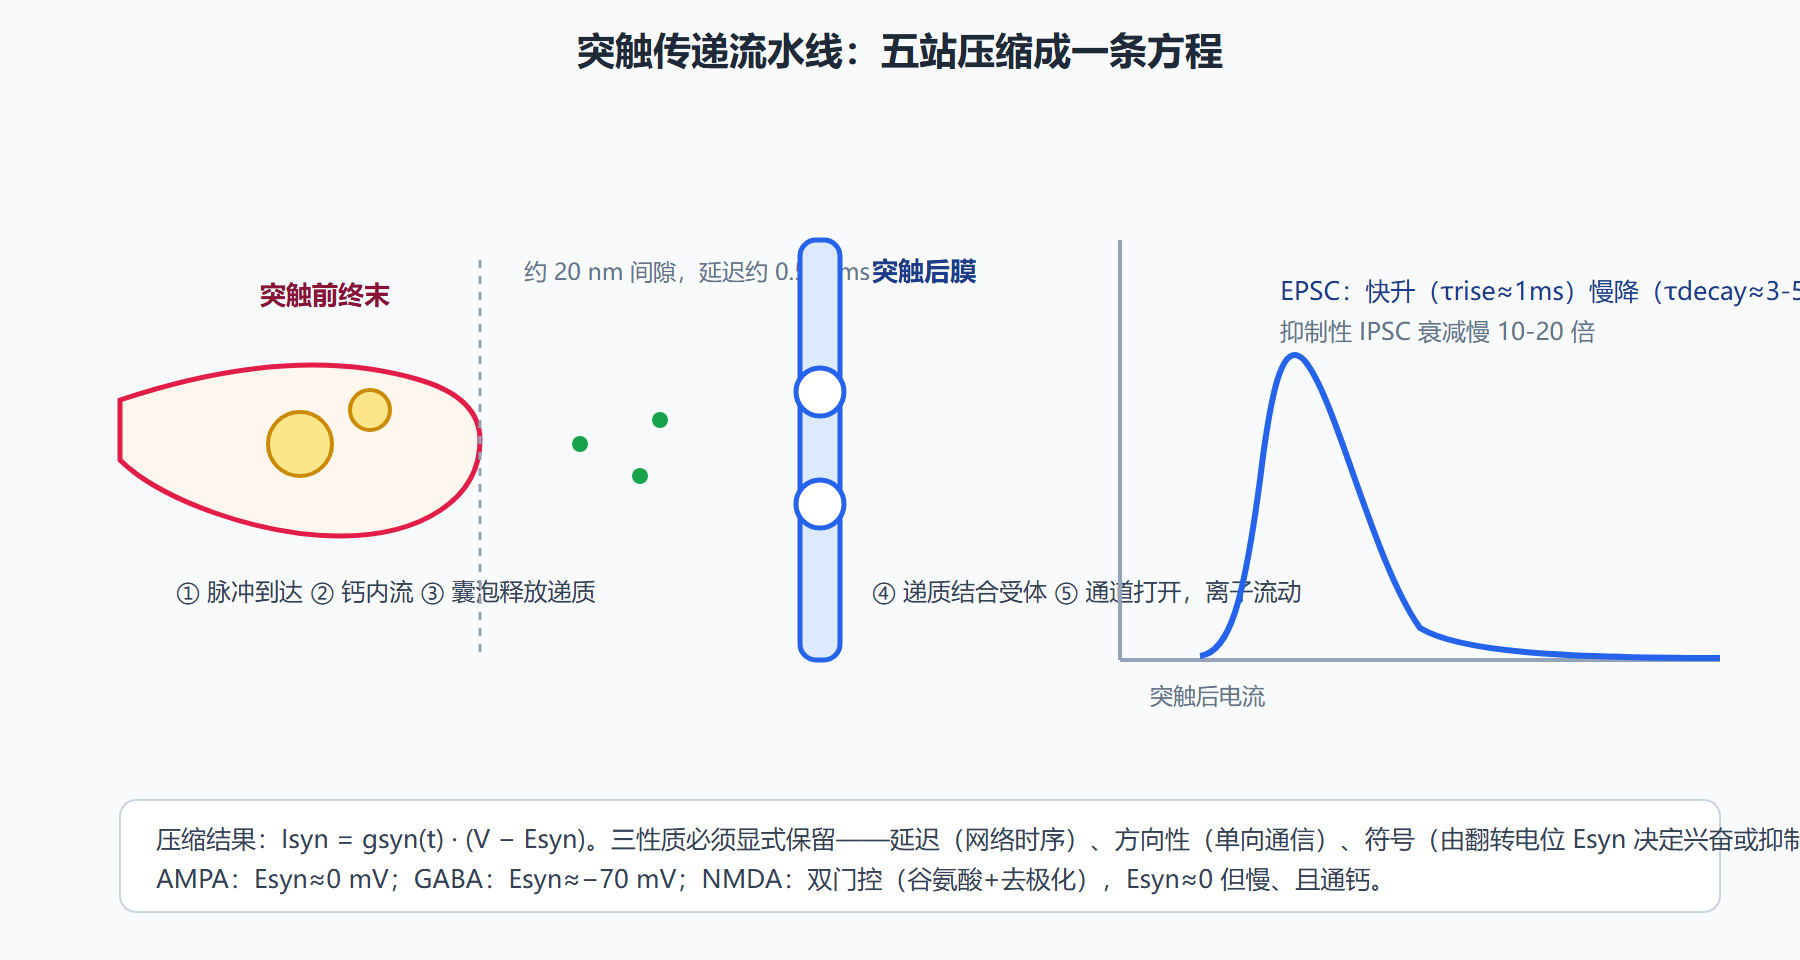
完整链条有五站。第一站,脉冲到达终末,去极化打开终末膜上的电压门控钙通道;第二站,钙离子内流,触发囊泡与突触前膜融合(这一步对钙浓度高度非线性,约三次方依赖,是释放概率的物理基础);第三站,递质分子扩散过约 20 纳米的突触间隙;第四站,递质结合突触后受体,配体门控通道打开;第五站,离子按电化学梯度流动,产生局部膜电流。全程约 0.5 至 1 ms——这段突触延迟是网络动力学里不可忽略的时间预算。
压缩后的标准模型只保留时间结构:突触后电导在脉冲到达后按双指数曲线起伏——上升期 τrise 约 0.5 至 2 ms(通道打开速度),衰减期 τdecay 约 2 至 5 ms(AMPA 兴奋性)或 20 至 100 ms(GABA-A 抑制性、NMDA 更长)。电流写法:
Isyn(t) = gsyn · (t 到达后) · [V − Esyn],gsyn 峰形 ∝ (e^(−t/τdecay) − e^(−t/τrise))
图:从突触前脉冲到突触后电流的五站流水线
翻转电位:兴奋与抑制的统一写法
方程里最关键的新角色是翻转电位 Esyn。它就是第 1 章的平衡电位概念落到突触通道上:当膜电位 V 低于 Esyn,电流内向、膜去极化(兴奋);V 高于 Esyn,电流外向、膜超极化(抑制);V 恰好等于 Esyn 时电流为零——这就是"翻转"之名的来历。谷氨酸能 AMPA 受体的通道几乎不分离子,Esyn ≈ 0 mV,所以在 -65 mV 的静息膜上永远是兴奋的;GABA-A 受体主要通氯,Esyn ≈ -70 mV,在静息附近的膜上呈抑制。
这个统一写法立刻给出两个非平凡推论。推论一:同一个 GABA 能突触,在 -80 mV 的膜上(V < Esyn)竟然是去极化的、兴奋性的——发育早期氯转运体不成熟,ECl 偏正,GABA 信号真的可以反向。推论二:当膜电位被强烈去极化到 0 mV 附近,AMPA 输入自动"熄火"(电流趋向零),这给所有兴奋性输入装了天然的饱和限制,是第 5 章 E-I 平衡网络能稳定运行的一部分物理基础。
另一个必须单独讲的是 NMDA 受体:它同时受两把锁控制——需要谷氨酸结合,且需要膜去极化把堵在孔内的镁离子顶走。双重门控使它成为" coincidence detector":只有突触前释放与突触后强烈去极化同时发生,钙才能经 NMDA 通道涌入。而钙正是 3.3 节长时可塑性的触发信号——学习规则的分子开关,物理上就装在这个双门控通道里。
概念代码:给脉冲序列装上突触
import numpy as np def synapse_current(spike_times, t, gmax=0.8, taur=1.0, taud=5.0, Esyn=0.0, V=-65.0): # 双指数突触电导:对所有历史脉冲求和 g = 0.0 for ts in spike_times: dt_ = t - ts if 0 <= dt_: norm = (taud - taur) / (taud * taur) # 峰值归一 g += gmax * (np.exp(-dt_/taud) - np.exp(-dt_/taur)) * norm return g * (V - Esyn) # 电导型电流 dt, T = 0.1, 100.0 trace, I_trace = [], [] for k in range(int(T/dt)): t = k*dt I_trace.append(synapse_current([20.0, 55.0, 90.0], t)) # 三个输入脉冲 # 观察:单脉冲电流约几毫秒;脉冲密集时电流在衰减前叠加——这就是时间整合 print("峰值电流:", round(max(I_trace), 2), " 半宽约:", end=" ")
把三个脉冲的间隔从 35 ms 缩到 8 ms 再跑:电流峰值显著高于单脉冲的三倍线性预期失效——重叠累积让短间隔输入被优先放大。这是发放率编码得以被"读出"的突触级基础:突触自身就在做时间积分。
电流型还是电导型
写网络模型时有一处务实取舍。电导型(上式)物理正确:输入效果依赖膜电位,自带饱和与分流;电流型 Isyn = w·Σ 核函数 则假定电流与膜电位无关,线性、便宜、好分析。规模巨大、现象在群体统计的网络用电流型;研究 E-I 相互作用、抑制的分流效应、输入饱和时必须用电导型——否则那些效应在模型里根本不存在。中间态是把 w 取为随活动衰减的变量,3.2 节的短时可塑性正是这样进场的。
⚠️ 常见坑:把抑制写成"对电位做减法"。正确的抑制是给膜增加一条通向 Esyn 的电导通路——它同时降低膜电阻、缩短时间常数,把其他输入也一并削弱(分流)。只有电流型近似下"减法"写法才成立,适用范围要心里有数。
💡 关键直觉:突触延迟、双指数时间结构、翻转电位——这三个从流水线里保留下来的性质,分别供养了第 5 章的振荡、第 2 章的时间整合与本章的学习规则。压缩可以,删性质不行。
本节要点回顾
- 要点一:五站流水线约 1 ms,压缩为双指数电导加驱动项的电导型方程。
- 要点二:翻转电位 Esyn 统一了兴奋与抑制,符号由 V 与 Esyn 的相对位置决定。
- 要点三:NMDA 的双重门控使其成为共活动检测器与钙信号的入口。
- 要点四:电导型自带饱和与分流;电流型是规模换保真的近似。
- 要点五:突触自身的时间积分是发放率编码被读出的物理基础。
电流会 faithfully 复现每一个脉冲吗?下一节会看到:同一突触的输出增益本身在秒级尺度上起伏——突触是个有状态的服务员。
变式:短时程与长时程受体的分工
把 3.1 的双指数模型扩成"双受体"版本能看到突触的频段分工。同一颗谷氨酸囊泡激活的 AMPA 与 NMDA 受体时间尺度差一个量级:AMPA 通道约几毫秒开合,负责快信号;NMDA 通道开放数百毫秒,负责把"刚才发生过什么"多记一会儿。下游细胞因此同时收到一份快照(AMPA)与一份短时积分(NMDA)——高频短脉冲串在 NMDA 通道上累积的电流远超其瞬时占比,这也是 NMDA 成为共活动检测器的电流学基础:它天然在做时间积分。把这个双受体结构加进 3.1 的代码,对比 8 ms 与 40 ms 脉冲间隔下两种受体成分的峰值比,可以直接看到突触自带的"快慢双通道滤波"。
问题:抑制性突触为什么也要精细建模,直接减电流不行吗?
因为抑制的真实作用是"改写"而非"抵消"。GABA 能输入增加膜电导的同时把膜电位钳向氯平衡电位,效果有三重:直接超极化(若有)、分流其他输入(电导增大膜电阻下降)、缩短膜时间常数(加快回静息)。三重效果的比例由 V 与 ECl 的相对位置决定,纯减法只覆盖其一。第 5 章的 E-I 平衡网络对此高度敏感:抑制的时间常数比强度更影响网络能否稳定——这是"减法近似"完全无法表达的性质。