3.2 突触短时可塑性
3.2 突触短时可塑性:秒级记忆的突触版
上一节的突触模型默认每次脉冲都触发同样大的电流,但实验里给突触一串高频脉冲,输出会逐渐变大(易化)或逐渐变小(抑制)。这不是测量误差,而是突触自身的动态状态——它的输出增益由过去几百毫秒到几十秒的历史决定。本节讲清楚这套"运行时状态"的机制与模型:它让同一个突触在不同发放语境下扮演滤波器、增益控制器甚至信息瓶颈的不同角色。
概念锚点:两种起伏,两套资源
短时可塑性(STP)按方向分两类,机制上对应两种资源。
短时易化(facilitation):连续脉冲使反应逐个增大,常表现为前几个脉冲递增、间隔越短增幅越大。机制主流解释是残余钙:每次脉冲涌入终末的钙来不及完全清除,下一脉冲到来时钙本底抬高,释放概率 P_r 随之上升。时间尺度数百毫秒到数秒。
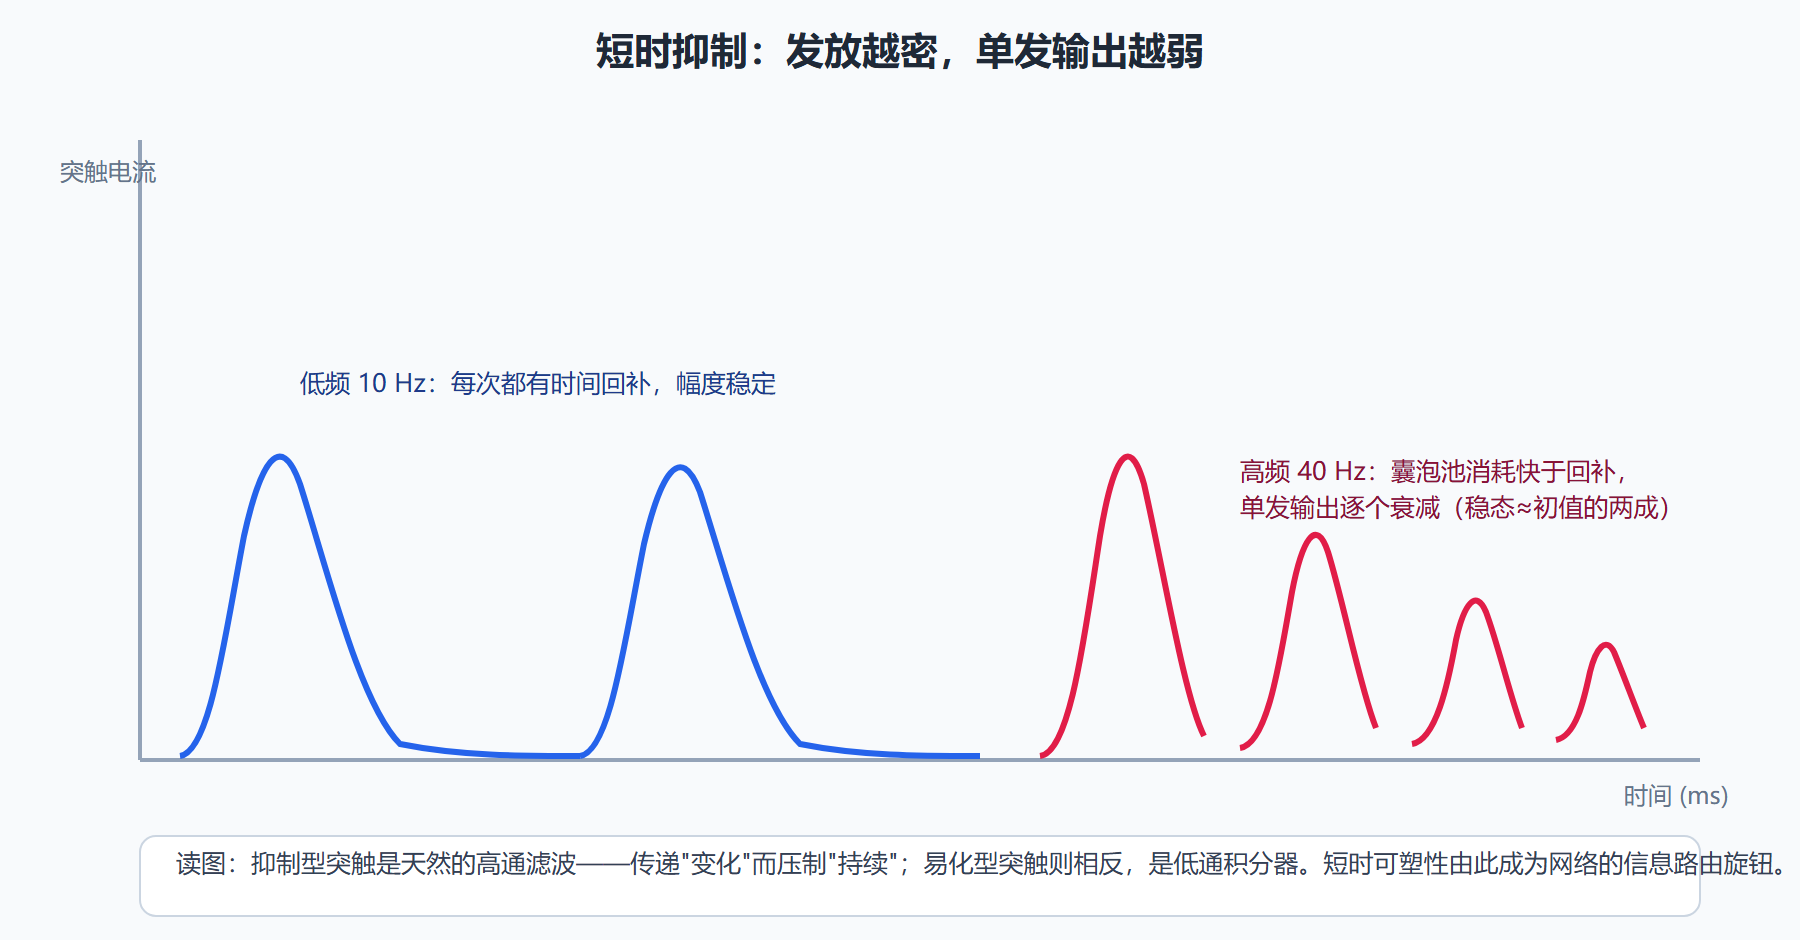
短时抑制(depression):连续脉冲使反应逐个衰减。机制主流解释是可释放囊泡池(readily releasable pool)的消耗——释放快于补充,池子见底。恢复时间常数数十毫秒到数秒,且恢复速率本身受活动调控。
两类在真实突触上往往并存:皮层兴奋性突触多表现为抑制主导(高初始释放概率,适合"传新息"),海马某些抑制性突触表现易化。判断某个突触走哪条路,一个实用指标是初始释放概率:高释放概率突触倾向抑制(一上来就倾囊而出),低释放概率突触有易化空间。
Tsodyks-Markram 模型:三个变量管住增益
标准定量框架是 Tsodyks-Markram(TS-M)模型。它把突触资源分成三态——可用 x、有效 y、恢复 z,并追踪释放概率 u 的残余钙动态。简化到最常见的"抑制主导"形式:
du/dt = −u/τfac + U·(1−u)·δ(脉冲)
dx/dt = 1 − x·(1−u)·δ(脉冲)(脉冲时 x 被消耗)……工程上常写作:脉冲时 x ← x·(1−u·U)
Isyn ∝ u·x·(V − Esyn)
直觉读法:u 是"这一发用多大劲"(残余钙驱动,脉冲时上跳、平时衰减),x 是"桶里还剩多少水"(每次释放按 u 比例扣减,平时按时间常数回补)。两者相乘就是当下输出的增益。τfac 短、U 小时系统表现易化,τrec 长且 U 大时表现抑制——一套方程,两个参数区。
图:同一突触在不同发放频率下的输出增益演化
概念代码:把 TS-M 装进突触
import numpy as np U, tauf, taur, gmax, Esyn = 0.5, 50.0, 800.0, 1.0, 0.0 # 释放参数与恢复 dt, T = 0.1, 1000.0 u, x = 0.0, 1.0 spikes = np.arange(50, 950, 12.5) # 80 Hz 短脉冲列 outs = [] for k in range(int(T/dt)): t = k*dt u += dt * (-u/tauf) # 残余钙衰减 x += dt * ((1-x)/taur) # 囊泡池回补 if any(abs(t-s) < dt/2 for s in spikes): out = U + u*(1-U) # 有效释放概率上跳 outs.append(out * x * gmax) x *= (1 - out) # 消耗 u = out print([round(v,2) for v in outs[:6]]) # 典型输出:0.50 0.30 0.21 0.16 0.13 0.11 —— 单发增益单调衰减,稳态约初值两成
把脉冲间隔从 12.5 ms 放宽到 60 ms(约 17 Hz):衰减几乎消失——回补追得上消耗。这个频率敏感性正是短时可塑性作为滤波器的体现:同一突触,低频全通、高频压低。
它在网络里干什么
短时可塑性不是精细结构的装饰,它改变群体传递特性。三条已被反复建模的用途:
滤波与路由。 抑制主导的皮层兴奋性连接充当高通滤波,放大输入中的突发变化、压制持续背景——感受野里"对变化敏感"的性质有一部分可以下放到突触级解释。易化型连接则相反,充当暂存器,短序列脉冲被累积放大,参与工作记忆式的短时维持。
增益控制与节奏切换。 抑制随活动积累,等效于给每条连接装了自动音量旋钮:长时间强输入后整条通路的有效增益下降,为第 5 章网络里的状态切换与节律转换提供了不依赖全局调控的局部机制。
信息瓶颈与码长优化。 有理论工作指出,抑制型突触在泊松输入下的稳态输出接近对输入码率的最优压缩——囊泡池物理上就是"带宽",短时可塑性是这个带宽的动态分配协议。这提示 STP 可能不是缺陷而是被演化选中的编码资源。
⚠️ 常见坑:把 STP 当成噪声抹平。它有明确的方向性与参数依赖,抹平后网络的高通特性与瞬态响应全部消失。用 LIF 网络做皮层仿真的团队普遍发现:去掉 STP,对自然刺激的响应统计显著偏离实验记录。
💡 关键直觉:短时可塑性把"突触强度"从一个数变成一个过程——权重不再是矩阵里的静态元素,而是依赖近期活动的状态机。这一点在第 5 章建网络时会直接改写方程的写法。
本节要点回顾
- 要点一:STP 分易化(残余钙)与抑制(囊泡池消耗)两类,尺度数百毫秒到数秒。
- 要点二:TS-M 模型用释放概率 u 与资源量 x 两个状态变量统一描述。
- 要点三:抑制型突触是高通滤波,易化型是低通积分——路由功能由此而来。
- 要点四:STP 为网络提供局部增益控制与状态切换机制。
- 要点五:网络建模中抹掉 STP 会系统性改变响应统计,不是无害简化。
秒级的起伏讲完了。下一节把时间轴拉到分钟以上:什么样的共活动能把权重永久改写,规则长什么样,又如何防止权重漂到无穷大。
案例:一条通路上的双重滤波
把短时可塑性的用法走成完整案例。从丘脑到皮层的感觉通路里,上行连接普遍呈抑制型(高初始释放概率):一段持续的白噪声声流进来,皮层接到的首拍最强、随后增益逐拍下降——皮层被保护起来只处理"新东西",这与实验测到的适应现象吻合。而皮层内部的水平连接多呈易化型:相邻表征之间的连接在重复激活时增益上升,为短暂维持与关联记忆提供突触级载体。同一张皮层网上,两种 STP 方向并存,等于给不同用途的连接各配了不同的滤波器——高通的管新息检测,低通的管暂存。做网络仿真时给两类连接配同一套参数,上述两条功能都会消失,这也是 STP 不能当噪声抹掉的实证理由。
问题:短时可塑性与长时可塑性的时间边界在哪?
没有硬边界,但有清晰的机制分工。STP 由可逆的资源状态(残余钙、囊泡池)承载,分钟内完全恢复,不改写蛋白表达;LTP/LTD 由分子级联改写受体数量与结构,需蛋白合成参与巩固,持续小时到终生。经验判据是"洗不掉性":低频长串刺激能把 STP 冲回基线,冲不掉的部分才是长时变化。时间尺度上两者有重叠区(几十秒到几分钟),这正是短时状态调制长时学习阈值的窗口——活动历史通过 STP 决定同一脉冲对能否触发 LTP。