4.1 神经编码方案
4.1 神经编码方案
脉冲是全或无的,幅度与形状不携带信息——于是刺激内容只能写进"发放了多少、什么时候发、哪些细胞一起发"三个寄存器。本节依次检视三个寄存器的证据与边界,并引出读取它们必备的工具:感受野与调谐曲线。这是 4.2 解码与 4.3 信息量化的"码本"基础。
寄存器一:发放率编码
方案:刺激强度或特征由单位时间的发放数表示。证据历史最悠久——猫视皮层神经元的发放率随光栅对比度单调上升,触觉纤维的发放率随压强上升,运动皮层的发放率随指向目标的力矩变化。率编码之所以成为默认假设,还因为生理基础扎实:第 3 章的突触时间积分使下游细胞天然对"输入密度"敏感,10 ms 窗口内到达的脉冲数就是可读出的模拟量。
率编码的软肋是时间账:皮层神经元基础发放率常只有每秒几个脉冲,要在 100 ms 内可靠区分两个相近的刺激,单个神经元的信噪比不够——这直接逼出了后面两个寄存器。
寄存器二:时间编码
方案:脉冲的精确时刻本身携带信息,不经过长时间平均。三块经典证据值得记熟。
炸响响应与相位编码。 昆虫嗅觉系统在气味 onset 后的第一个脉冲间隔(10 ms 量级)即可区分两种气味分子,快于任何发放率平均。海马的位置细胞按 θ 节律(约 4 至 12 Hz)的相位提前发放:位置越靠近该细胞的感受野中心,发放相位越提前——位置信息同时写在发放率与 θ 相位里,相位通道的等效信息容量显著高于率通道。
群体同步振荡。 视皮层对相干运动的响应伴随伽马频段(30 至 80 Hz)同步,刺激轮廓的"归属关系"(figure-ground 分离)由不同群体间的同步关系标记——绑定问题(binding problem)的时间编码解答。
稀疏时序码。 高层视觉区(如下颞叶)对特定面孔的响应可能只有几个脉冲,但时刻精确、重复性高——平均发放率在这个场景下几乎是浪费的度量。
图:同一刺激在三个寄存器里的不同写法
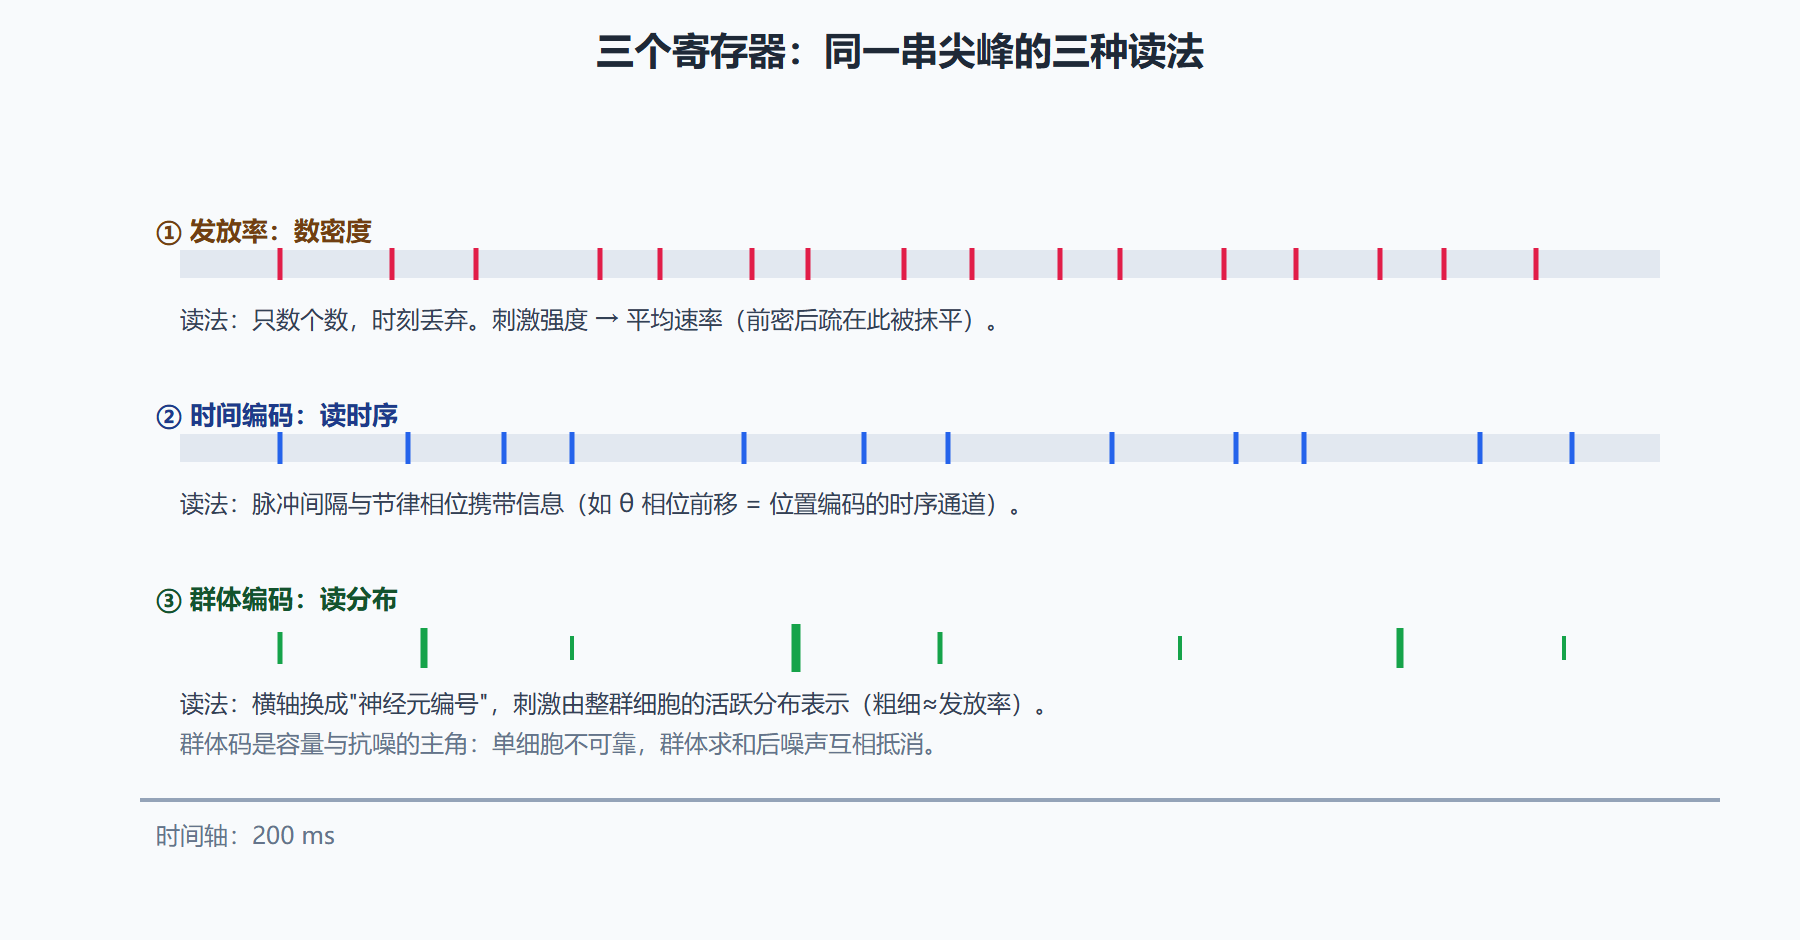
寄存器三:群体编码
方案:单个刺激由一群神经元的联合活动表示,每个细胞贡献一份带噪声的"投票"。运动皮层方向解码是教科书案例:每个神经元的发放率对运动方向有一条余弦调谐曲线(偏好的方向发放最猛),把几百个细胞的"票"按各自偏好方向加权求和,总体矢量方向就是运动方向——单细胞角度分辨率约几十度,百细胞群体可到几度以内。
群体码的胜利在于冗余换抗噪:每个成员都在制造噪声,但联合表示的噪声随成员数按平方根缩小。代价是代谢与带宽:冗余需要更多细胞与突触资源。由此产生的极端反方案是稀疏编码——每个刺激只激活极少数细胞(如海马 CA3 对某个场景的反应、果蝇蘑菇体对气味的表示),代价转向"谁当代表"的学习问题,收益是容量大、检索快。冗余与稀疏是一根杠杆的两端,不同脑区按任务需求停在杠杆的不同位置。
调谐曲线:码本的物理形态
无论用哪个寄存器,读取都需要码本——刺激特征与响应的对照表。这张表的可视化就是调谐曲线(发放率随特征参数的变化)或感受野(发放率随时空位置的变化)。视皮层简单细胞的 Gabor 型感受野、听觉神经元的频率调谐、位置细胞的高斯型位置野,都是码本条目。码本不是先天的:发育与学习(第 3 章的可塑性规则)把感受野塑造得与环境统计匹配——自然影像的统计特性可以在 Gabor 感受野上找到明显回声。
概念代码:从调谐曲线读出角度
import numpy as np # 群体向量解码的最小实现:8 个方向细胞,余弦调谐 pref = np.arange(0, 360, 45) # 各细胞偏好方向(度) rates = 10 + 30*np.cos(np.radians(pref - 210)) # 真实方向 210 度 rates += np.random.randn(8)*6 # 每个细胞带噪声的"投票" rates = np.clip(rates, 1, None) est = np.degrees(np.angle(np.sum(rates*np.exp(1j*np.radians(pref))))) print("估计方向:", round(est % 360, 1), "度") # 输出接近 210
八张"票"加权合矢量即估出方向。把噪声加大到 20:估计误差变大但不崩溃——这正是群体冗余的数值体验,也解释了为什么脑机接口只需记录几十上百个运动皮层神经元就能驱动光标。
⚠️ 常见坑:把三种方案当学派站队。它们是同一串尖峰的不同投影,多数真实系统并行使用:海马位置细胞同时用率、θ 相位与群体分布三种通道。正确的问法不是"大脑用哪种编码",而是"这个系统在哪个任务上把信息放在哪个寄存器"。
💡 关键直觉:第 2 章的"全或无"压缩了波形自由度,才逼出三个寄存器;第 3 章的突触积分天然读出率通道,NMDA 的共活动检测天然读出时序通道。编码方案不是凭空设计,是硬件性质的直接后果。
本节要点回顾
- 要点一:信息只能住在数量、时刻、分布三个寄存器里,分别对应率码、时码、群体码。
- 要点二:率编码有突触积分作物理基础,但慢与低信噪比是硬伤。
- 要点三:时码证据包括相位预签、同步绑定与稀疏时序响应。
- 要点四:群体码以冗余换抗噪,稀疏码以容量换学习成本。
- 要点五:调谐曲线与感受野是码本条目,本身由可塑性规则塑造。
码本有了。下一节正式做翻译:从一段真实的尖峰序列反推刺激,并让解码器反过来检验我们的编码假设。
案例:位置系统——三种码并行工作的现场
海马位置系统是观察三种编码方案并存的绝佳现场。同一批记录里:位置细胞的发放率在其位置野内整体升高(率码通道);发放时刻锁定到 θ 周期且随位置推进逐圈前移——相位预签(时码通道),等于把位置地址写在 θ 波的相位轴上;而"这只动物此刻在哪"由数百个细胞的位置野覆盖图联合表示(群体码通道)。三个通道还各有分工证据:相位预签在动物首次进入新环境几圈内就出现,快于位置野的精细成形;群体表示则支撑跨天的地图稳定复现。对建模者的启示很直接:编码方案不是三选一的选择题,而是"哪个通道承载哪个任务变量"的分配问题——这也是解读任何新脑区数据时的第一个分析决策。
问题:发放率低到每秒一两个脉冲的细胞还能编码什么?
能,靠群体与稀疏时序。单个低发放细胞每秒携带的比特极少(4.3 节会算这笔账),但两类方案补救它:一是群体冗余——上千个同样稀疏的细胞联合起来,每个脉冲都是一个可靠投票;二是事件驱动的稀疏码——细胞平时沉默、关键时刻发一两个精确定时的脉冲(如新奇检测与惊觉反应),单发信息的时序精度可以很高。低发放不是编码失败,而是节能策略:安静时省电,关键时刻高信噪比广播。