5.1 兴奋-抑制平衡网络 (E-I Balance)
5.1 兴奋-抑制平衡网络 (E-I Balance)
在体记录的皮层活动有三桩怪事: membrane 电位持续大幅涨落(±10 mV 的起伏不断)、单细胞发放稀少而看似随机(每秒几个脉冲,前后对不上刺激)、不同试验的响应变异性极大。任何"输入-输出"式的单元模型都解释不了这套统计。平衡网络假说用一句话回应:这些现象不是噪声,是兴奋与抑制互相咬住时的紧张姿态。
概念锚点:失衡的解释,平衡的现象
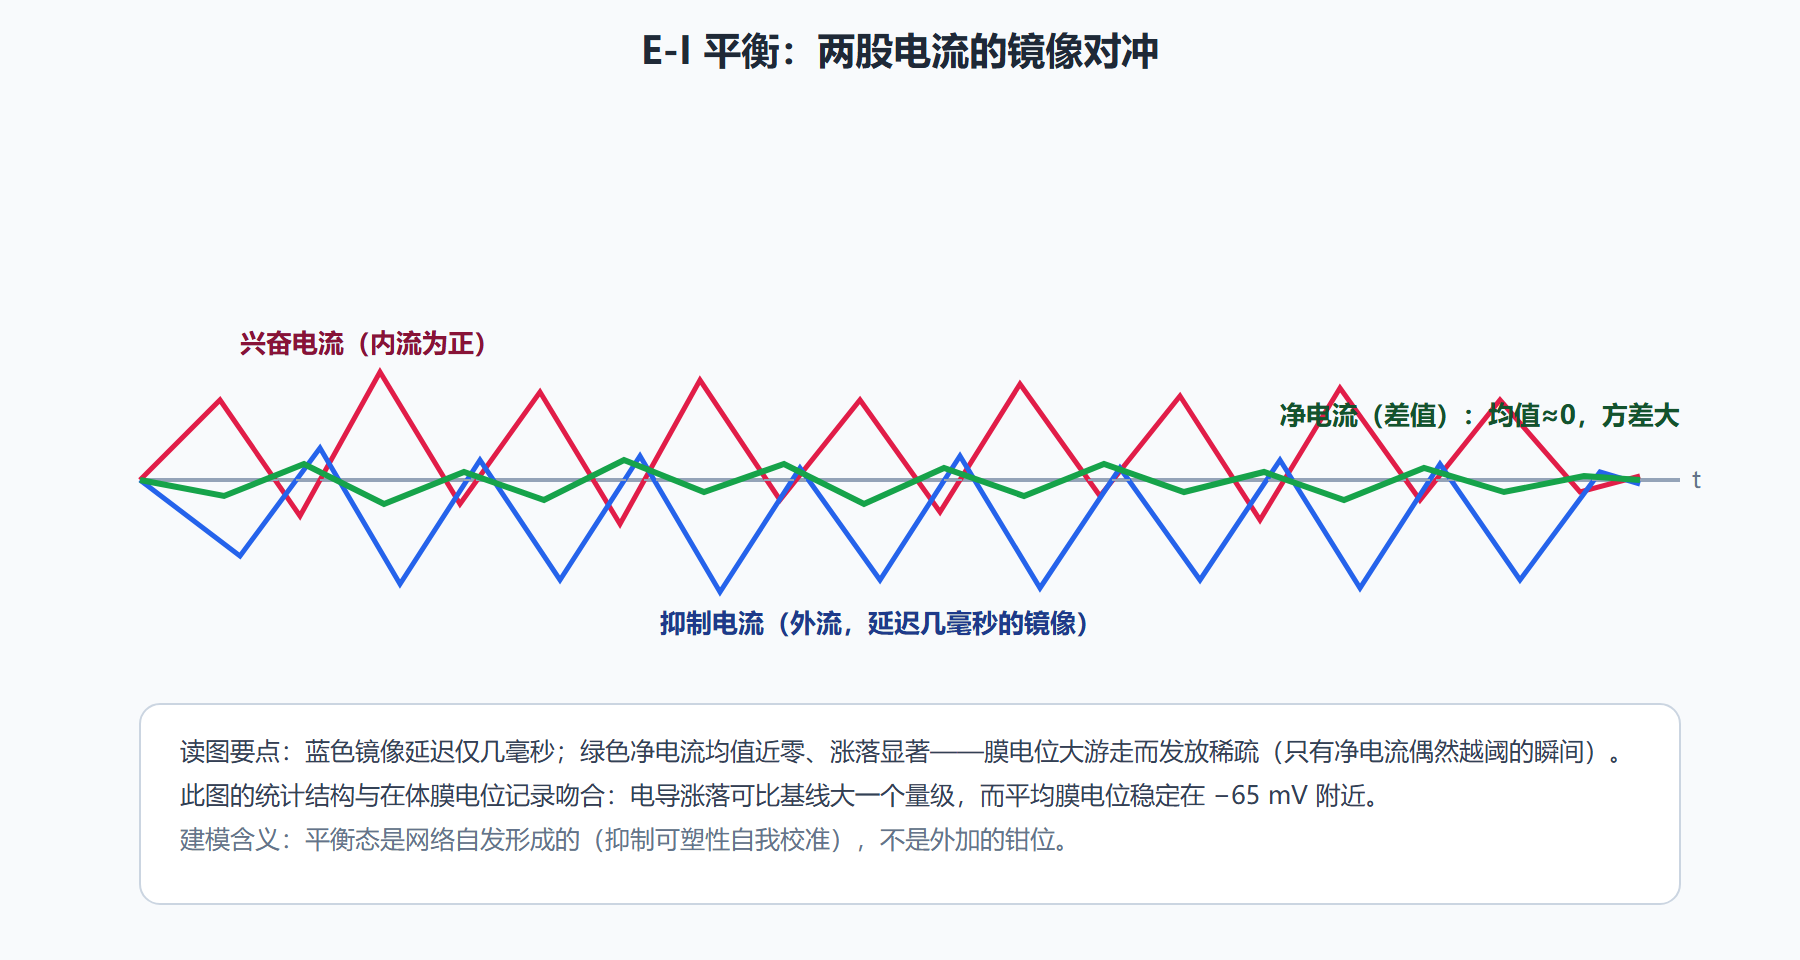
皮层里约八成细胞是兴奋性锥体细胞,两成是抑制性中间神经元,但抑制的连接被演化调得又快又强——快放电中间神经元的突触响应时间只有兴奋连接的几分之一。于是每个细胞的输入流里,兴奋与抑制两股电流大体上实时抵消:抑制电流几乎是兴奋电流的镜像、延迟仅几毫秒。
这层平衡解释了三桩怪事的全部:
大涨落、低均值。 膜电位在 -50 至 -75 mV 间大幅游走,是因为电导涨落巨大而两股电流的差(均值)很小——钢丝下是悬崖,但钢丝本身绷得很紧。
低发放与随机性。 发放只在两股电流短暂失衡、电位偶然越过阈值时发生——发放是"失衡事件",天然稀疏、天然像泊松过程。
变异性与可靠性并存。 重复刺激下响应变异大,但网络回到同一平衡流形——响应的统计形状可重复,具体脉冲不可重复。这与在体记录的印象完全一致。
图:平衡网络的一笔账——兴奋与抑制实时对冲
Wilson-Cowan:把两群细胞写成两条方程
平衡现象的群体级模型是 Wilson-Cowan 方程:兴奋群体与抑制群体各一个平均发放率变量 E、I,互相通过传递函数 S(把输入电流转成发放率的 S 形函数)耦合:
τE · dE/dt = −E + SE(WE·E − WI·I + 输入)
τI · dI/dt = −I + SI(WE'·E − WI'·I + 输入)
别看只有两条方程,它的相平面行为极其丰富:单个稳态(对应平衡背景)、两个稳态(对应开关)、极限环(对应振荡)。模型的价值在分岔——参数平缓移动时定性突变的位置。" 皮层从静息态切到激活态"这类现象,在 WC 框架里就是稳态数目的改变,而短时可塑性(第 3 章)恰好提供了使参数缓慢漂移的机制。这一"参数漂移导致模式切换"的通路,是神经振荡与状态切换研究的主干道之一。
概念代码:一张 E-I 网络的最小骨架
import numpy as np # 最小 E-I 网络:Wilson-Cowan 率模型的欧拉积分 tauE, tauI = 20.0, 10.0 # 兴奋群体慢、抑制群体快 WE, WI = 1.6, 2.2 # 连接权重:抑制调强制造平衡 def S(x): # S 形输入-输出函数 return 1.0/(1 + np.exp(-(x - 3.0)*1.5)) dt, T = 0.05, 300.0 E, I = 0.05, 0.05 # 两个群体率初值 trace = [] for k in range(int(T/dt)): t = k*dt IE = 4.0 + WE*E - WI*I # 兴奋群体感受到的驱动 II = 4.0 + WE*E - WI*I # 抑制群体感受到的驱动 E += dt/tauE * (-E + S(IE)) # 两条平均场方程 I += dt/tauI * (-I + S(II)) trace.append((t, E, I)) print("稳态: E=%.3f I=%.3f" % (E, I)) # 实验:把 WI 降到 1.0(抑制不足)→ E 发散或爆震;升回 2.2 → 稳态回到低发放
把 WI 从 2.2 降到 1.0 跑一次:网络冲向病态的高发放甚至发散;再调回去,稳态回到低发放。这个"调失衡看爆炸"的实验,就是在亲手确认抑制连接是皮层活动稳定性的承重墙。
平衡从哪来:自校准问题
最后必须回答"谁调的平衡"。抑制与兴奋突触强度的比例不可能由基因精确规定,主流答案是抑制性突触的稳态可塑性:突触按目标发放率自动增减强度(发放率低于目标则增强抑制、高于则放松),形成负反馈。结合第 3 章的可塑性框架,可以把它看作第三条学习律——不学"什么重要",只学"让系统回到工作点"。发育期的自发活动(产前视网膜波)被认为正是靠这类机制把网络校准进平衡区的;平衡失调则与癫痫(抑制不足导致的同步爆炸)、自闭症谱系的 E/I 比例假说相连接,第 8 章会回到这条线。
⚠️ 常见坑:把平衡理解为"兴奋=抑制的精确相等"。平衡是统计意义上的对冲——电流均值相消,涨落保留且正是涨落驱动发放。追求逐时刻相等反而消掉了所有信号。
💡 关键直觉:皮层的"看似随机"其实是紧绷的动态平衡——发放是失衡的火花,不是噪声的泄漏。这个视角直接改写第 4 章:刺激信息不在单个脉冲里,而在"失衡如何被推动"里。
本节要点回顾
- 要点一:抑制连接快而强,与兴奋实时对冲,皮层活动是平衡流形上的涨落。
- 要点二:低发放、高变异性、大涨落是平衡的三件套现象,同时被解释。
- 要点三:Wilson-Cowan 两变量方程给出稳态与振荡的相平面全景,分岔即模式切换。
- 要点四:平衡由抑制稳态可塑性自校准,是可塑性的第三个角色。
- 要点五:E/I 失衡对应癫痫等病理态,是连接临床的桥梁参数。
平衡态是网络的"待机画面"。下一节看它如何被内容占据:反馈连接挖出的洼地,让信息即使停止输入也能留在原地——记忆。
案例:平衡的一只手——抑制的时机比强度更重要
平衡网络有一个反直觉的细节值得单独对账:决定发放精确性的往往不是抑制的强度而是它的时机。把网络里抑制突触的延迟从 3 ms 改到 8 ms(强度不变):膜电位的涨落幅度几乎不变,但发放时刻的精度大幅恶化——兴奋推动的发放总是落在抑制到来之前,抑制的"关窗"动作越晚,发放的随机窗口越宽。这与实验记录的对账很有意思:快放电中间神经元的突出特征正是极短的突触延迟与超快的膜时间常数,演化像是专门为"及时关窗"优化过。做网络仿真时因此有一条经验法则:先校准抑制延迟再调抑制强度——顺序反了会得到一个"强度虚高、时机错位"的假平衡,现象上却与真平衡难以区分。
问题:平衡网络怎么解释"注意"让信号变清晰?
给平衡加一个偏置项。注意被建模为对目标表征所在亚群的兴奋性增益微调(几个百分点的量级):平衡态下微小的输入差原本淹没在涨落里,增益上调后这个亚群的失衡概率系统性提高,发放率与同步性同步抬升——涨落背景没变,信号的可提取性变了。这解释了为什么注意效应在单细胞上看着不大、在群体解码上却显著:平衡网络把"增益放大"转化成了"统计可读性放大",正好落在第 4 章群体解码的敏感区。