5.3 神经振荡与同步化
5.3 神经振荡与同步化
吸引子解释"停在哪个状态",本节解释"何时轮到谁":大量皮层活动呈现规律性的节律涨落——δ(0.5 至 4 Hz)、θ(4 至 12 Hz)、α(8 至 13 Hz)、β(13 至 30 Hz)、γ(30 至 80 Hz)。振荡不是背景噪音:它们是网络层面的时间坐标系,发放"贴着哪个相位"本身携带信息。本节给出发电机制(PING)、嵌套结构(θ-γ 耦合)与功能含义(相位预签)三层解释。
概念锚点:振荡的发动机是抑制中继
γ 节律的主流机制是 PING(Pyramidal-Interneuron Network Gamma):兴奋性锥体细胞群激活抑制性中间神经元,中间神经元经约几毫秒延迟回过头压制锥体群;抑制消退后锥体群从不应期里集体恢复、再次点燃——如此往复。周期由三段延迟相加:兴奋到抑制的延迟、抑制的持续时间、恢复的膜时间常数,合计恰好落在 25 ms 上下,对应约 40 Hz 的伽马。注意这组参数第 2 章都见过:膜时间常数约 20 ms 与突触延迟几毫秒——γ 节律的"频率旋钮"是硬件参数决定的,这就是为什么伽马几乎是皮层的通用节拍。
振荡强度由"驱动力与抑制强度"的相对配比控制:驱动力强而抑制跟上,振荡锐利;抑制过弱则振荡解体为不规则高发放(回到 5.1 的失衡态);抑制过强则干脆静默。因此 E-I 平衡态与振荡态是同一套方程的邻接区域——5.1 与本节不是两个世界。
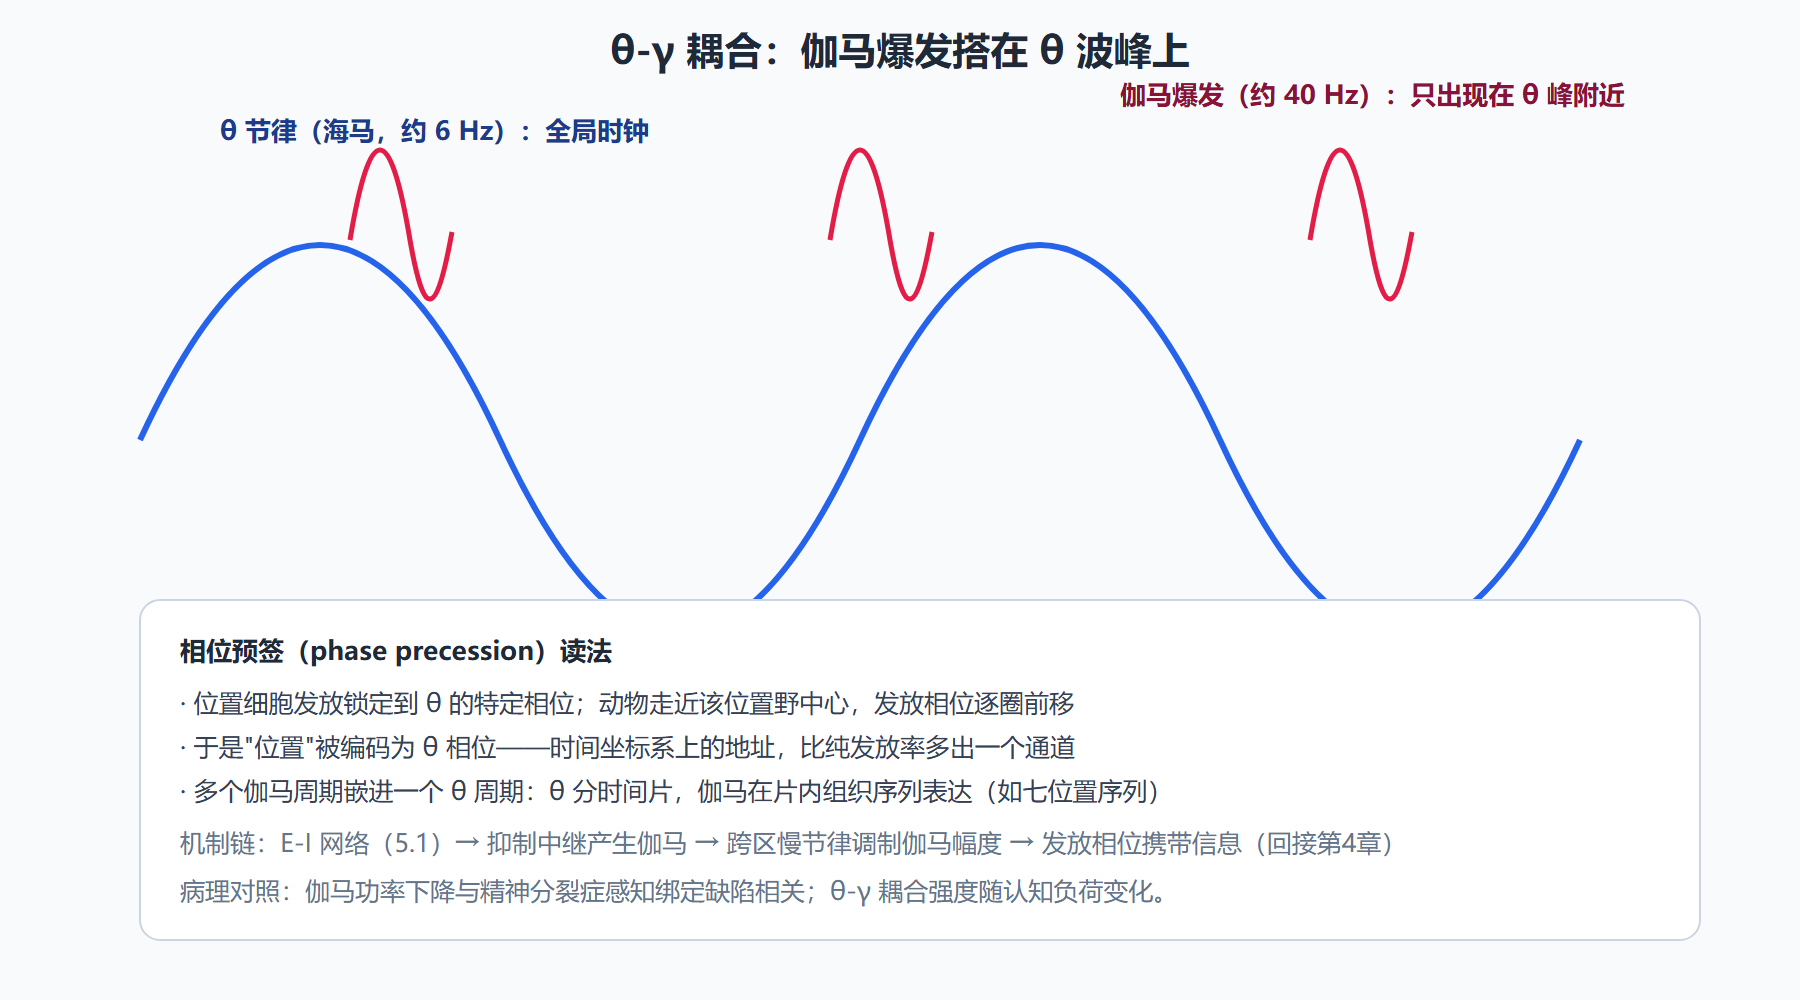
图:θ-γ 嵌套——慢节律为快节律分相
同步化:振荡 how 与 why
同步有两个层次。局部同步即 PING 本身:抑制中继强制全体锥体细胞在同一个时间窗内"准许"发放,散乱的个体节律被拉齐到群体节拍上。远程同步则靠更慢的机制:两个脑区各自有节律发生器,通过白质连接互相注入相位牵引,频率接近时锁相(频率差决定牵引难度)、频率差异过大时只在特定相位窗口通信——这就是通过相位耦合进行通信(communication through coherence)假说:两个区域在θ峰对θ峰时信息通道打开,相位错开则关闭。注意它给出一种无需增减连接就能"开关"通路的机制,全靠时间对齐。
同步的功能收益有三。一是发送窗口:相干时间窗内突触输入落在目标细胞的高兴奋性相位,传递增益提高。二是编码增益:锁相发放使群体脉冲更齐,下游积分更高效(第 4 章的群体码在时间维度上又多了一把尺)。三是序列组织:一个 θ 周期约 100 至 200 ms,内嵌若干伽马周期,可按时间片轮流激活不同细胞组——海马 Theta 序列(在 θ 一个周期内按未来路径顺序快放一遍位置细胞)正是这样把"即将走的路"预演成时序码。
概念代码:让 E-I 网络敲出伽马
import numpy as np # PING 最小实现:兴奋群体 E 与抑制群体 I 的率模型 + 突触延迟 tauE, tauI, dt = 15.0, 8.0, 0.05 wEI, wIE, wII = 1.8, 3.5, 0.3 # E->I, I->E, I->I delay = int(4.0/dt) # 4 ms 抑制传递延迟(旋钮:改它=改频率) hist_E = [] E, I = 0.1, 0.1 def S(x): return 1.0/(1 + np.exp(-(x-2.5)*2.0)) for k in range(int(1000/dt)): past_E = hist_E[k-delay] if k >= delay else 0.1 # 延迟取历史值 E += dt/tauE * (-E + S(6.0 - wIE*past_E)) # 驱动减延迟抑制 I += dt/tauI * (-I + S(2.0 + wEI*E - wII*I)) hist_E.append(E) g = np.array(hist_E[int(200/dt):]) peaks = np.where((g[1:-1] > g[:-2]) & (g[1:-1] > g[2:]))[0] freq = 1000.0/(dt*np.mean(np.diff(peaks))) # 估计振荡频率 print("伽马频率约: %.0f Hz" % freq)
把 delay 从 4 ms 改到 8 ms:频率近似减半——验证"周期 = 延迟总和"的机制预言;把 wIE 调到 1.5(抑制弱):振荡解体成高台稳态。两个参数实验分别对应"频率旋钮"与"平衡旋钮"。
振荡的病理与工程回响
振荡是少数直接连接临床与工程的网络现象。精神分裂症病人前额叶伽马功率系统性偏低,与感知绑定、工作记忆缺陷平行;癫痫本质是抑制失守后的病理性超同步——5.1 的失衡实验在临床上放大了。工程侧,经颅交流电刺激(tACS)按被试自身节律频率施加外部交流,可以拖拽相位、影响感知表现——"相位即功能开关"拿到了干预级证据;第 8 章的神经形态芯片也借用同步来组织事件路由。
⚠️ 常见坑:从头皮 EEG 读到的节律是海量神经元的场电位叠加,它显示"有振荡"却不显示"谁在同步"。场电位机制(突触电流的加权平均)与单单元机制(脉冲时序)是两级现象,推论时别跨级直译。
💡 关键直觉:振荡是网络给全体成员发的"时间表"。谁在什么相位发、两个区域相位差多少,这些纯时序量携带与发放率正交的信息——大脑因此拥有一个不停摆的内部坐标系。
问题:为什么伽马几乎处处出现,而 β、θ 各有分工?
因为伽马是"局部回路的最快自然钟"——它的周期由抑制延迟加膜恢复时间决定(约 25 毫秒),而这套硬件参数各皮层区通用,所以伽马成为跨区域的标准节拍。β 与 θ 则依赖更长的环路周期或更慢的跨区交互:β(13-30 Hz)常与运动维持及"维持现状"的调控信号绑定(帕金森患者 β 功率异常增高,深部脑刺激通过削减 β 改善症状);θ(4-12 Hz)需要海马-皮层的长程交互,承担跨区域的扫描与序列组织。一句话记分工:γ 是局部节拍器,β 是状态开关,θ 是全局扫描仪。
问题:振荡一定会同步到"全场一个节拍"吗?
不会,多数时候是局部化、动态化的同步。皮层的同步通常以"瞬态组团"形式出现:某个时间段某组细胞短暂锁相,几百毫秒后解体换组——同步是事件不是状态。这种瞬态性正是通信按需开闭(相位耦合通信)的前提:若全场永久锁相,所有通路同时开窗,反而失去选择性。做场电位分析时同样要警惕把"平均锁相值"当成持续状态——分相位分时段统计才是正确的打开方式。
本节要点回顾
- 要点一:伽马由 PING 抑制中继产生,周期等于延迟与恢复时间之和,约 25 ms。
- 要点二:振荡态与 E-I 平衡态是同一方程的邻接区,配比决定形态。
- 要点三:远程同步靠相位牵引,相干即通信窗口开。
- 要点四:θ-γ 嵌套把一个慢周期切成时间片,支持序列预演与相位编码。
- 要点五:相位预签证明"发放时刻的相位"是独立的编码通道。
网络动力学三件套——平衡、吸引子、振荡——集齐。下一章带着它们去解释真实功能:看见、行动、记住。