6.1 种群增长与调节:数量如何随环境起伏
6.1 种群增长与调节:数量如何随环境起伏
本节摘要:种群数量随时间的变化可以用增长模型描述——无约束时指数增长,有约束时趋于环境容纳量。实际种群被密度制约与非密度制约两类因素调节,并演化出 r 策略与 K 策略两种生存路线。读完本节,你能用增长曲线预测并解释种群数量的涨落。
出了个体的门,第一个迎面而来的问题很实际:一个种群到底能有多少个体?答案取决于增长规律和调节机制。这一节我们会引入一个简单的数学工具,它不算高等数学,但能改变你看待生物数量的方式——从"大概会变多"升级到"能算出来怎么变"。
一张纸上算清种群的数量命运
先看最理想的情况:假设资源无限、没有天敌、没有疾病,一个种群会怎么增长?每只雌性生固定数量的后代,后代又接着生,数量按固定比例翻倍——这是指数增长。写成方程很简单:数量等于初始数量乘以自然常数的增长率次方。曲线画出来是个 J 型:开头平缓,越往后越陡,涨到天上。
但现实里资源不是无限的。食物、空间、繁殖地都有上限,种群越大,每个个体的生存资源越紧。把资源约束加进方程,就得到逻辑斯蒂增长:前期接近指数,中期增速放缓,后期数量逼近一个上限后几乎不再增长。这个上限叫环境容纳量(K)——环境能长期养活的最大个体数。S 型曲线就是逻辑斯蒂增长的形状:缓慢起步,陡峭爬坡,最后在 K 附近拉平。
图 6-1:两种增长曲线的对比
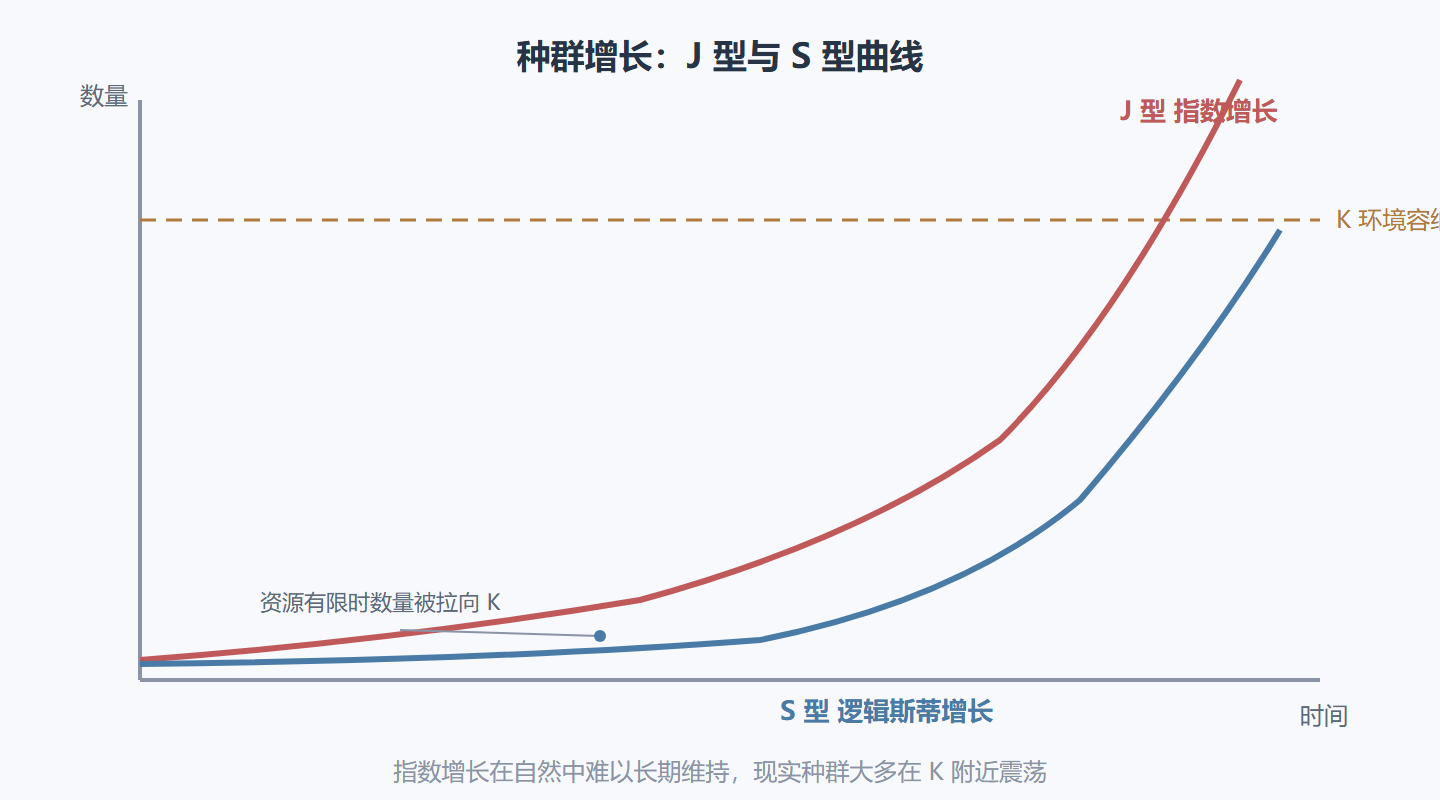
这张图的要点是"K 的存在"。S 型曲线在 K 附近拉平,不代表种群静止了——它可能围绕 K 上下震荡:超过了 K,资源紧张,死亡率上升,数量回落;低于 K,资源宽松,出生率上升,数量回升。种群不是一个停在 K 点的静止集合,而是在 K 附近反复试探的弹性系统。这个"围绕上限震荡"的图景,比"达到稳定"准确得多。
用一段极简的迭代逻辑,可以把"数量怎么被拉回 K"的过程表示出来:
function 模拟种群数量(初始数量, 增长率, 环境容纳量): 数量 <- 初始数量 循环每一步: 增长量 <- 增长率 乘 数量 乘 (一 减 数量 除以 环境容纳量) 数量 <- 数量 加 增长量 记录当前数量 返回 数量变化序列
这个循环里的核心是"一减数量除以环境容纳量"这一项:数量越接近 K,这一项越接近零,增长越慢;数量超过 K,这一项变负,种群数量被拽回。方程很朴素,但它就是无数生态模型的地基。
两类调节:密度制约与非密度制约
现实中把数量拉回 K 的力量分两类。密度制约因素的作用强度随种群密度变化——竞争食物、领地、天敌捕食、疾病传播,密度越高作用越强,是"自带刹车"的自限机制。非密度制约因素与密度无关——极端天气、火灾、洪水、火山爆发,不管种群多大都按比例影响。两类因素叠加,决定了种群数量曲线的实际形状。
这有个很实际的推论:把环境弄得更"非密度制约"会怎样?如果自然灾害频繁,种群经常被"腰斩",它就没机会逼近 K,长期维持在低密度水平。反过来,人类活动往往制造非密度制约的冲击——栖息地破碎化、极端气候事件,这会让稳定种群进入剧烈波动,甚至跌到灭绝阈值以下。理解两类调节,是读懂"物种为什么濒危"的第一步。
两种生存策略:r 策略与 K 策略
在增长与调节的框架下,物种演化出了两种分化明显的生活史策略。r 策略物种走"多生快长"路线:繁殖力强、体型小、寿命短、亲代投入少,数量随环境剧烈波动,靠数量优势扛过灾难期——苍蝇、野草、大部分昆虫是典型。K 策略物种走"优生精养"路线:繁殖慢、体型大、寿命长、亲代投入高,把个体质量做到极致,数量稳定在 K 附近——大象、鲸、人类是典型。
这不是一道单选题,而是一个连续谱,很多物种站在中间。判断一个物种的处境,先看它在谱上站哪——这就决定了它的脆弱点:r 策略物种怕"连年灾害",K 策略物种怕"栖息地压缩"和"成体死亡率上升"。濒危物种管理里,这个判断直接决定保护措施:对 K 策略的大象,核心是保栖息地和防偷猎;对 r 策略的某些鱼类,核心是保繁殖期的成体数量。
真实案例佐证了这个框架的价值。澳洲野兔:十九世纪引入,天敌和资源制约不足,种群按接近指数的方式爆炸,一度达到数亿只,把草原啃成荒漠——这是"K 被拉高了"的失控版。旅鼠的种群周期:北方小型啮齿类呈三到四年周期波动,密度制约(食物耗尽加高密度应激)在波峰踩刹车,天敌数量随之波动又放大周期——这是"围绕 K 震荡"的放大版。酵母菌在培养瓶里长到 K 就停,菌数稳定在糖能供养的水平——这是 S 型曲线在实验室里最干净的演示。
人类种群:一台特殊的增长曲线
把增长模型用到人类自己身上,能看到一些深刻的特殊性。农业革命之前,人类种群贴着环境容纳量缓慢波动,像任何 K 策略物种。农业革命让粮食产能突破,K 值被抬高,人口进入加速增长;工业革命和现代医学又把死亡率大幅压低,人口曲线在近两百年里近乎指数攀升——从十八世纪的约十亿,到二十世纪中叶的二十五亿,再到今天超过八十亿。
但人类种群有一个其他物种没有的特质:我们能主动修改 K 值。避孕技术让生育率可以脱离生物学上限,公共卫生让死亡率可以不靠自然选择来压低,农业和能源技术让容纳量可以被人为抬高。于是人类种群的"增长曲线"更像一台带手动调节的机器,而不是被动的生态曲线。代价也随之而来:当人类人为抬高 K 值的同时,第 7 章要讲的其他物种的 K 值在被人为压低——栖息地被占、资源被抢、气候被改,人类增长曲线与全球生态承载力的关系,成了生态学最大的现实课题。
这个视角还提醒我们区分"增长能力"和"可持续状态"。增长率再低,只要长期为正,数量就在持续累积;下降到零,才是真正的平台期。目前全球多数国家的生育率已经低于更替水平,人口增长主要靠年轻人口结构惯性驱动——这意味着"人口爆炸"本身也在演变。用增长模型的参数去理解人口新闻(出生率、更替水平、结构惯性),比看任何情绪化的报道都更接近真相。
本节要点回顾
- 指数增长 J 型,逻辑斯蒂增长 S 型,两者差别在于是否计入资源上限 K
- 种群数量在 K 附近震荡而非静止,靠密度制约自限、受非密度制约冲击
- 密度制约随密度增强,是自限机制;非密度制约与密度无关,常由灾害造成
- r 策略多生快长抗灾难,K 策略优生精养求稳定,两者脆弱点不同
- 澳洲野兔、旅鼠周期、酵母培养三个案例演示了增长模型的三种现实形态
数量问题算清了,下一个问题更深远:种群之间的差异怎么积累成新物种——物种形成。