6.2 物种形成与生命之树
6.2 物种形成与生命之树
本节摘要:物种的定义靠"生殖隔离"而非外形相似。地理隔离让种群各自演化、累积差异,最终不可回流,这是最主流的物种形成路线;生态位分化等其他路线也在自然界存在。水平基因转移则提醒我们:生命之树是一张带洞的网。读完本节,你能说清新物种是怎么"裂"出来的,也能理解生命谱系为什么不能简化成一棵纯树。
上一节讲数量,这一节讲"质变"——种群怎么一步步变成新物种。这是第 4 章"基因频率变化"在第 6 章尺度的最终收束:频率变化的终点,是一个新的物种诞生。物种形成是演化的"分叉点",理解它,你才真正看懂"物种"这个词的分量。
物种不是一条河,而是一张不断分叉的网
先给"物种"下一个能用的定义。教科书常见的说法是"能相互交配并产生可育后代的一群个体"——这个定义以生殖隔离为核心:两个种群之间如果基因流被切断到无法修复,它们就是两个物种。用生殖隔离而不是外形定义物种,有个实际理由:外形相似的生物可能是不同物种(两种鸣叫声不同的昆虫),外形差异巨大的可能是同一物种(狗的品种差异比许多物种间差异还大)。表型会骗人,基因流才是真相。
这个定义还隐含一个动态观:物种不是永恒实体,而是一条"暂时稳定的基因流区间"。区间边界在演化中不断被重新划定——分叉发生,谱系增多。生命不是一条大河,而是一张不断分叉的网。
地理隔离:物种形成的主干道
最主流的物种形成路线是地理隔离加分化。一条大河改道、山脉隆起、大陆漂移、一群鸟被吹到孤岛,把一个种群切成两个互不相通的群体。隔离之后,两个群体各自演化:突变各自积累、选择各自作用、漂变各自随波逐流。时间足够长,差异累积到即使地理障碍消失,两边也不再能有效交配——生殖隔离就此锁死,两个新物种成立。
加拉帕戈斯群岛是这套剧本的实景:岛上达尔文雀的祖先从大陆到达后,在岛屿之间反复隔离、分化,最后辐射出十几种喙形各异的雀,各吃各的食物。岛屿在这里扮演"隔离孵化器"——每一座岛都是一个独立演化单元。澳洲的有袋类也类似:大陆漂移让澳洲很早就与其他大陆分开,有袋类在没有胎盘类的竞争压力下辐射出袋狼、袋熊、袋鼠等庞大谱系,占据了别处胎盘类占的位置。
图 6-2:物种形成的两条路线
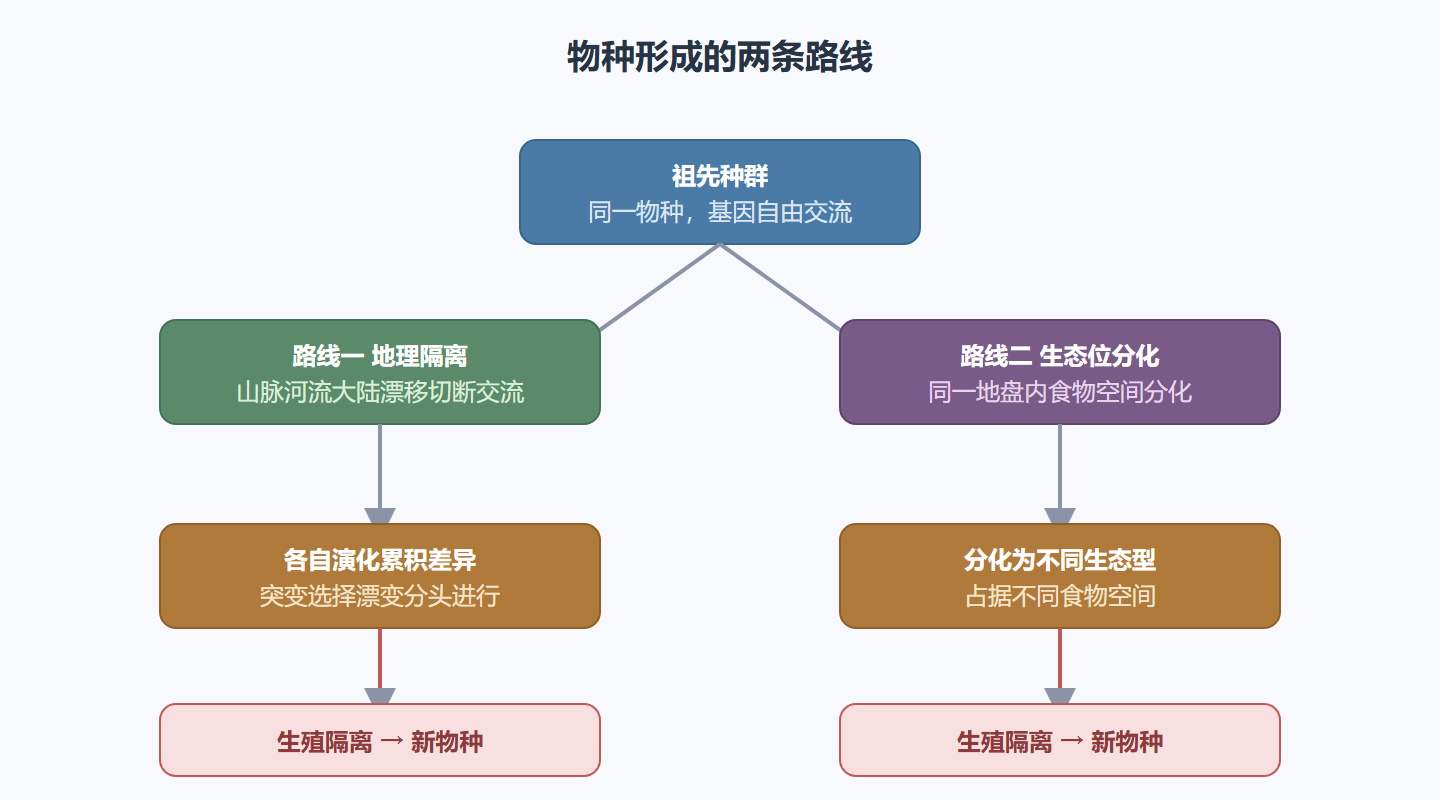
两条路线殊途同归:不论靠地理还是靠生态,最终都是"基因流被切断到不可修复"——生殖隔离。区别只在隔离的启动方式:前者是物理空间的隔断,后者是生态空间的分离。
生殖隔离:新物种的"质检标准"
生殖隔离是物种形成的验收线。隔离机制分两大类:合子前隔离阻止交配或受精(发情期错开、求偶信号不匹配、生殖器官不兼容),合子后隔离让即使受精也生不出可育后代(杂交后代不育,比如马和驴生的骡)。不管哪种,效果都是"基因流中断"。
一旦生殖隔离建立,两个种群就各走各的演化路,再也汇不回去。注意这里有个微妙点:隔离不是一瞬间的事,而是一个连续的过程——差异累积到某个阈值,基因流开始衰减,衰减反过来加速分化,形成正反馈。所以自然界里存在"半隔离"的过渡状态:两个种群还能杂交,但杂交后代适应度降低。这类案例是研究物种形成机制的天然实验室。
一张带洞的生命之树:水平基因转移的修正
前面讲的都是"垂直遗传"——基因从亲代传给子代,物种从祖先分化而来。但第 4 章已经提过:还有一条横向的基因通道,水平基因转移。细菌可以直接吞 DNA、通过质粒交换基因,耐药基因在医院里跨越菌种传播;真核里内共生事件也是水平的。水平转移对物种谱系意味着什么?意味着"物种"之间的基因流,并不总是零。
所以严格意义的"生命之树"需要修正:主干走垂直分化,但侧枝之间横着基因搬运的通道,让树看起来像一张带洞的网。这不推翻演化论,反而丰富了它——它提醒我们,演化的基本单位不总是"物种"这个节点,有时是"基因"这个更小的单元。近年来基因组学研究甚至发现,人类基因组里有相当比例的序列来自古老的逆转录病毒残骸和转座子——我们的基因组本身就是一部垂直与水平混合的历史档案。
适应辐射:同一祖先,遍地开花
把物种形成放到更大尺度看,最壮观的图景是适应辐射:一个祖先物种进入生态位开放的领地,快速分化成一批各占生态位的物种。达尔文雀、夏威夷果蝇、东非大湖的慈鲷鱼,都是辐射的杰作。辐射的驱动力是"空生态位"加"隔离机会":岛屿、新湖、新大陆都是空置的舞台,物种在舞台上各抢一角,抢着抢着就分家了。
适应辐射还演示了物种形成和生态学的关系:生态位分化既是辐射的机制,也是其结果——物种越多,生态位切得越细;切得越细,能容纳的物种越多。这个"分叉与细化"的正反馈,是地球生物多样性的根本引擎,也是第 7 章生态层级"多样性从哪来"的答案。
物种形成的速度:从"万年"到"眼前"
物种形成常被想象成需要漫长地质时间的事,但研究显示它的速度范围极宽。多孔鲈鱼(丽鱼科)在东非大湖里的辐射只用了约一万年;一些拉帕尔马岛的物种在不到千年内就分出了新形态。更快的案例来自人为干预:隔离种群后几十代内,实验室果蝇就能积累出明显的生殖隔离趋势。
"快"的机制在于选择压的强度。隔离只是切断了基因流,真正加速分化的是"两边遭遇不同选择压力"——食物不同、捕食者不同、求偶环境不同,特征被快速推向不同方向。如果两边环境相似,隔离一万年也可能分化不出新物种;如果选择压悬殊,几百年就够了。所以物种形成的速度不由时间决定,由"选择压力的差异程度"决定。
这个认识对现实有一个直接应用:判断一个濒危种群的"演化潜力",要看它有没有空间和时间积累差异,也要看它的有效群体大小够不够支撑选择。把第 4 章的 Ne 和第 6 章的隔离速度合起来,你就有了评估种群演化前景的工具。它还提示一个反向的警示:人类活动造成的栖息地隔离正在人为加速物种分化,但这不是"好事"——切碎栖息地产生的"新种群"往往太小、太孤立,扛不住遗传漂变,分化不成新物种,反而先灭绝了。隔离是分化的前提,但前提不等于保障。
本节要点回顾
- 物种以生殖隔离定义,表型会骗人,基因流才是真相
- 地理隔离加分化是最主流的物种形成路线,岛屿是隔离孵化器
- 生态位分化提供第二条路线,两条路线最终都收敛于生殖隔离
- 水平基因转移让生命之树带洞,演化基本单位有时是基因而非物种
- 适应辐射由空生态位加隔离机会驱动,是生物多样性的根本引擎
种群层的漫游结束。下一章走进最后一个生命层级——生态:不同物种之间结成的大网。