3.3 补体系统与免疫分子网络
3.3 补体系统与免疫分子网络
本节摘要:补体系统是免疫防御的"快速级联放大器",通过三条激活途径(经典、凝集素、旁路)产生调理、趋化和裂解效应。本节解析补体的激活机制和调控蛋白,然后从整体视角审视免疫分子网络的多效性、冗余性和协同性特征。
本节目标
阅读完本节,你应当能够:
- 描述补体三条激活途径的启动分子和识别靶标
- 解释三条途径如何汇聚于 C3 转化酶的形成
- 说明膜攻击复合物(MAC)的组装过程和裂解机制
- 列举补体调节蛋白及其功能
- 从系统视角理解免疫分子网络的多效性、冗余性和协同性
补体系统:快速响应的"连锁反应放大器"
补体不是单一蛋白质,而是由 30 多种血浆蛋白和膜蛋白组成的级联反应系统。之所以叫"补体"(Complement),是因为它最初被发现的功能是"补充"(complement)抗体活性——抗体结合病原体后,补体系统能进一步放大清除效果。
补体系统在血清中的浓度很高——C3 的血清浓度约为 1-2 g/L,是血清中含量最高的补体成分之一。这个高浓度确保了补体系统可以在激活信号出现后迅速产生足够的效应分子。补体蛋白主要由肝脏合成(急性期反应时产量进一步增加),但某些补体成分(如 C1q、因子 D)由巨噬细胞等其他细胞合成。补体的半衰期差异很大——C3 和 C4 的半衰期约为数天,而 C5a 和 C3a 等裂解产物的半衰期只有数秒到数分钟,这确保了补体活性片段的作用是短促和局部的。
三条激活途径
补体有三种启动方式,但殊途同归,最终都汇聚在 C3 分子的裂解上:
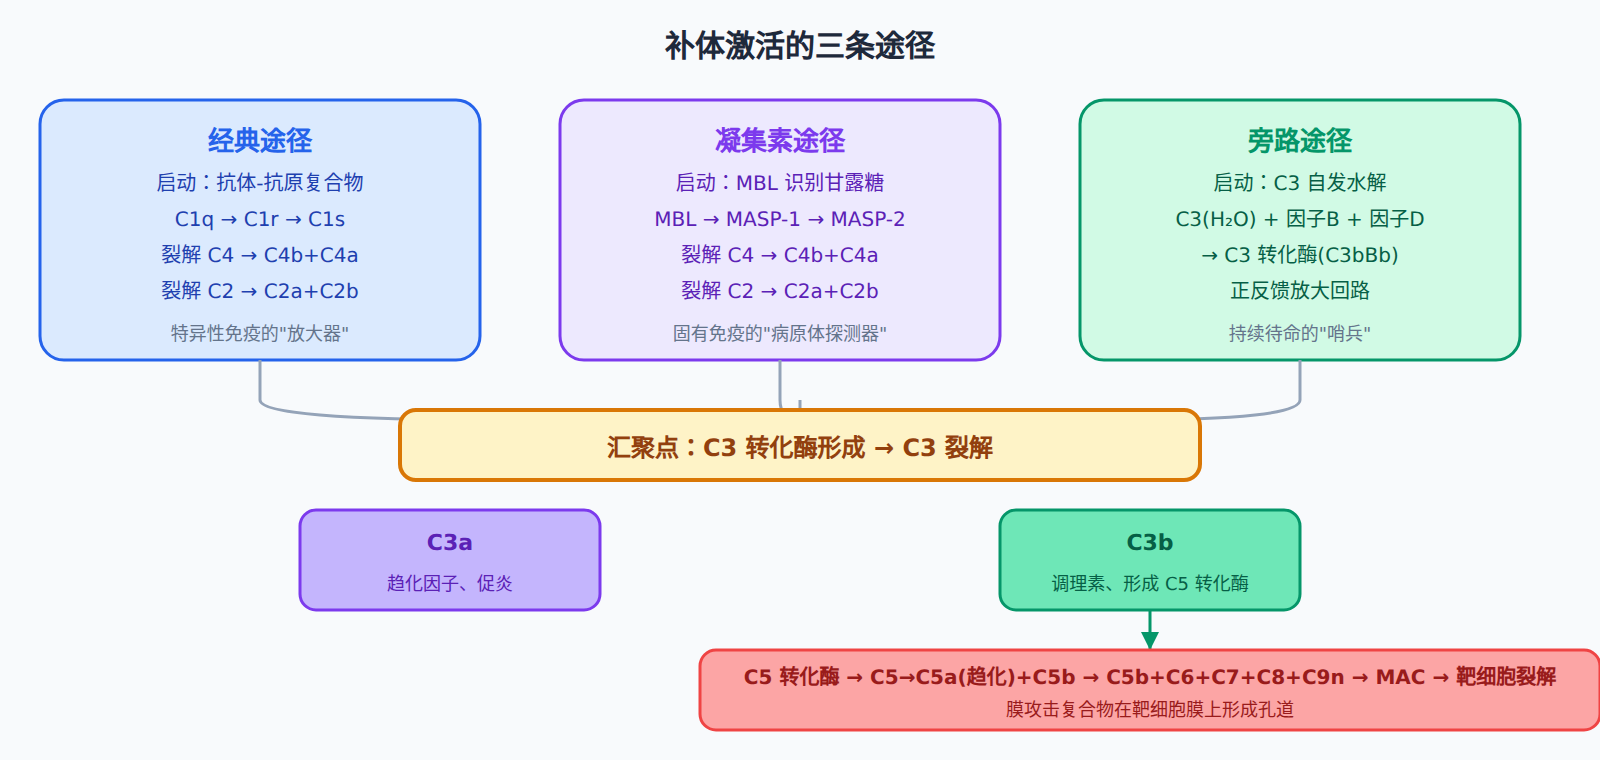
经典途径是最"有针对性"的启动方式——需要抗体-抗原复合物(IgM 或 IgG)来触发。C1q 识别抗体 Fc 段的排列变化后激活 C1r/C1s,最终裂解 C4 和 C2 形成 C3 转化酶(C4b2a)。经典途径在适应性免疫应答启动后发挥主要作用——这意味着感染早期(抗体尚未产生时),经典途径基本不参与补体激活,只有在适应性免疫产生了抗体后,经典途径才被"注入",形成固有免疫和适应性免疫的协同。
临床上检测血清补体活性(CH50)主要反映经典途径的功能完整性。CH50 降低见于系统性红斑狼疮(补体被免疫复合物大量消耗)、遗传性补体缺陷和严重的细菌感染。C3 和 C4 的血清水平检测是评估补体消耗和合成的重要指标——在活动性 SLE 中,C3 和 C4 通常都降低,而缓解期恢复正常。
凝集素途径不需要抗体。甘露糖结合凝集素(MBL)直接识别病原体表面的甘露糖和 N-乙酰葡糖胺等糖结构。MBL 的结构与 C1q 类似,激活 MASP 后走与经典途径相同的 C4-C2 裂解路径。这意味着在没有抗体的情况下(如感染早期),凝集素途径就能启动补体防御。MBL 的血清浓度因个体而异且受遗传多态性影响——MBL 水平低的个体在儿童期更容易发生反复感染。MBL 的临床意义正在被重新评估,研究发现 MBL 缺陷虽然增加感染风险,但也与某些自身免疫病(如 SLE)的保护效应相关——可能因为 MBL 介导的补体过度激活在某些情况下促进了免疫复合物的组织沉积。
旁路途径最独特——它不需要任何"触发物",C3 会以低速率自发水解("滴答"式的自激活)。产生的 C3b 如果沉积在自身细胞表面,会被调节蛋白迅速灭活;但如果沉积在缺乏调节蛋白的病原体表面,就会被因子 P(Properdin)稳定,形成正反馈回路,迅速放大补体激活。旁路途径的意义在于:它提供了"病原体自主检测"的能力——不需要抗体,也不需要特定的分子识别模式,只要病原体表面缺少宿主调节蛋白,就会被识别并攻击。这解释了为什么补体旁路途径缺陷(如因子 D 或因子 B 缺乏)的患者特别容易发生反复的化脓性感染——尤其是有荚膜的细菌(如脑膜炎奈瑟菌)。
补体的核心效应分子
C3b——调理素:C3b 共价结合到病原体表面,被吞噬细胞表面的 CR1(CD35)识别,极大增强吞噬效率。在体外实验中,未经调理的细菌被巨噬细胞吞噬的效率远低于经 C3b 或抗体调理的细菌——调理作用可以将吞噬效率提高数十到数百倍。C3b 还能与 CR3(Mac-1, CD11b/CD18)结合,触发吞噬细胞内的呼吸爆发(产生大量 ROS),进一步增强杀菌能力。C3b 还能被因子 I 裂解为 iC3b,后者不再参与 C3 转化酶的形成但仍然是有效的调理素,结合 CR3 和 CR4 受体。
C5a——炎症趋化因子:C5a 是最强的补体源性趋化因子之一,能趋化中性粒细胞和单核细胞到感染部位,同时激活它们增强杀菌能力。C5a 还能增加血管通透性,促进炎症渗出。C5a 通过结合 C5aR1(CD88)和 C5aR2(C5L2)两种受体发挥作用。C5aR1 介导经典的促炎效应,C5aR2 的功能尚不完全清楚但可能起到抗炎调控作用。在脓毒症中,C5a 的过度产生与多器官衰竭密切相关,靶向 C5a 或 C5aR 的药物正在临床开发中。
MAC——膜攻击复合物:C5b-C6-C7-C8-C9n 在靶细胞膜上形成跨膜孔道,细胞内容物外泄导致细胞裂解。这在革兰氏阴性菌(有外膜可被 MAC 攻击)的清除中效果显著,但对革兰氏阳性菌(厚肽聚糖层阻止 MAC 接近膜)效果有限。
MAC 的形成过程是逐步组装的:C5 裂解后释放 C5a(趋化因子)和 C5b(MAC 启动组分),C5b 结合 C6 和 C7 形成亲脂性复合物插入膜中,然后 C8 加入并开始穿透膜,最后 12-18 个 C9 分子聚合形成完整的跨膜通道。通道内径约 10 nm,足以让离子和小分子自由通过,导致渗透压失衡和细胞裂解。
MAC 对补体敏感的真核细胞(如红细胞)也很有效。ABO 血型不合的输血反应中,抗 A 或抗 B 抗体(天然 IgM)激活补体经典途径,MAC 直接溶解供血红细胞,导致急性溶血反应。这也是为什么输血前必须进行交叉配血试验——确保受血者血清中不存在能攻击供血红细胞的抗体。
补体调节蛋白:防止"友军误伤"
补体级联反应的威力很大,必须有精细的刹车系统防止误伤自身细胞:
| 调节蛋白 | 作用阶段 | 功能 |
|---|---|---|
| C1 抑制因子(C1-INH) | 经典途径启动 | 抑制 C1r/C1s,同时抑制激肽释放酶(参与缓激肽生成) |
| 因子 H | 旁路途径 | 促进 C3b 灭活(辅助因子 I) |
| 因子 I | C3b/C4b 灭活 | 裂解 C3b/C4b 使其失活 |
| MCP(CD46) | C3b/C4b 灭活 | 因子 I 的膜辅因子 |
| DAF(CD55) | C3/C5 转化酶 | 加速转化酶衰变 |
| CD59(Protectin) | MAC 组装 | 阻止 C9 聚合,形成 MAC 抑制 |
补体调节蛋白的临床检测价值日益受到重视。流式细胞术检测红细胞和白细胞表面的 CD55 和 CD59 表达是诊断 PNH 的标准方法——PNH 患者的血细胞表现为 CD55 和 CD59 表达部分或完全缺失。此外,因子 H 自身抗体(一种获得性补体调节障碍)可导致非典型溶血性尿毒症综合征(aHUS),这是一种以微血管血栓形成为特征的严重疾病。
💡 阵发性睡眠性血红蛋白尿症(PNH):患者的血细胞缺乏 GPI 锚定蛋白(包括 DAF 和 CD59),导致补体在自身红细胞上不受控制地激活和形成 MAC,引起溶血。依库珠单抗(抗 C5 单抗)通过阻断 C5 裂解,成功治疗了这种疾病。依库珠单抗是补体靶向治疗的成功典范,后续开发的 ravulizumab(长效版抗 C5 单抗)每8周给药一次,大大改善了患者的用药便利性。此外,C1-INH 缺乏导致遗传性血管性水肿(HAE),患者反复出现皮下和黏膜水肿,急性发作时需要紧急补充 C1-INH 浓缩物或使用缓激肽受体拮抗剂。
免疫分子网络:系统视角
从分子到网络
单个免疫分子的功能是明确的,但在体内它们从不孤立运作。抗原、抗体、细胞因子、补体、黏附分子形成了一张动态的分子网络。理解这张网络需要超越"A 导致 B"的线性思维,转向"A 和 B 互相影响、形成反馈环路"的网络思维。
- 抗体-补体联动:抗体结合病原体后激活补体经典途径,补体产物 C3b 反过来增强抗体调理效果
- 细胞因子-黏附分子联动:细胞因子激活内皮细胞上调黏附分子,黏附分子帮助免疫细胞迁移到感染部位
- 细胞因子-抗体联动:Th2 细胞因子 IL-4 驱动 B 细胞产生 IgE;Th1 细胞因子 IFN-γ 激活巨噬细胞增强其杀菌能力
- 补体-细胞因子联动:C5a 不仅趋化白细胞,还促进它们分泌更多促炎细胞因子,形成放大环路
- 抗原加工-抗体反馈:B 细胞通过 BCR 内吞抗原后加工呈递给 T 细胞,T 细胞又分泌细胞因子辅助 B 细胞产生更好的抗体
冗余性是进化的智慧
免疫分子的冗余性看起来"浪费",实则是进化的保险策略。单基因敲除实验显示,缺失某个细胞因子或补体组分的小鼠通常只有轻微的免疫缺陷——因为其他分子能部分补偿其功能。但多基因缺陷(如同时缺失多个促炎细胞因子)会导致严重的免疫缺陷。
这给药物设计带来启示:单靶点抑制可能因为冗余性而效果有限,多靶点联合策略可能更有效。但多靶点抑制也增加了副作用风险——免疫系统是一个平衡系统,过度抑制会降低抗感染能力。
精准调控的时空调控
免疫分子的表达在时间和空间上受到精密调控。同一个分子在不同情境下可能发挥完全不同的作用:C3a 在感染早期是趋化因子帮助招募免疫细胞,但如果持续高表达就会促进炎症损伤;补体激活片段(C3b、iC3b)沉积在抗原上可以增强抗原被 APC 捕获的效率(免疫复合物促进抗原呈递)。理解这种情境依赖性是理解免疫学复杂性的关键。
🔬 前沿方向:系统免疫学正在用组学技术和数学模型来描绘免疫分子网络的完整图谱。目标是理解网络的整体行为,而不是单个分子的功能。这有助于预测免疫干预的整体效果,指导更精准的治疗策略设计。例如,通过构建免疫分子网络的数学模型,研究者已经能够预测不同免疫检查点抑制剂组合的抗肿瘤效果,为临床试验设计提供了理论指导。
下一章预告:第 4 章将讨论免疫应答的启动、效应和调控——从固有免疫的快速响应到适应性免疫的精准打击,再到免疫耐受的维持和失调疾病的发生。