3.2 细胞因子与信号转导
3.2 细胞因子与信号转导
本节摘要:细胞因子是免疫细胞之间的"通用语言",它们以极高的多效性和冗余性构建了一张精密的通信网络。本节从细胞因子的分类入手,重点解析其信号转导核心通路——JAK-STAT 通路,以及趋化因子引导细胞迁移的导航机制。
学习目标
阅读完本节,你应当能够:
- 列举主要细胞因子家族(白细胞介素、干扰素、TNF、CSF)及代表性成员
- 解释细胞因子的多效性、冗余性、协同和拮抗作用
- 逐步描述 JAK-STAT 信号通路的激活过程
- 区分趋化因子四大家族(CC/CXC/CX3C/C)及其对应受体
- 描述白细胞募集的"滚动-激活-牢固黏附-穿壁"级联过程
细胞因子:免疫系统的"语言系统"
细胞因子不是某一种分子,而是一个庞大的蛋白质家族,由免疫细胞和非免疫细胞分泌,通过结合靶细胞表面受体来调控免疫应答的方方面面——从细胞活化、增殖、分化,到凋亡、迁移和组织修复。细胞因子的作用不需要细胞与细胞的直接接触,它们以自分泌(作用于自身)、旁分泌(作用于邻近细胞)或内分泌(进入血液循环作用于远处细胞)的方式发挥作用。大多数免疫相关的细胞因子以旁分泌为主,作用范围有限,这保证了免疫应答的局部性。
主要分类
细胞因子的命名和分类反映了发现历史和功能特征,但实际功能高度重叠:
白细胞介素(Interleukins, IL):最初定义为"白细胞之间的信号",目前已发现 IL-1 到 IL-38。它们几乎参与了免疫应答的所有环节:
- IL-2:T 细胞增殖的核心因子,也是最早被批准用于临床的细胞因子(用于黑色素瘤和肾癌)。低剂量 IL-2 还能选择性促进 Treg 的增殖——这个看似矛盾的现象是因为效应 T 细胞和 Treg 对 IL-2 浓度的敏感性不同,Treg 由于高表达 CD25(IL-2Rα)可以在低 IL-2 浓度下优先获得信号
- IL-4:驱动 Th2 分化,促进 IgE 类别转换,是过敏反应的关键因子
- IL-6:急性期反应的核心因子,能促进 B 细胞分化和 T 细胞活化。IL-6 在炎症反应中由巨噬细胞和内皮细胞大量分泌,驱动肝脏合成 CRP 等急性期蛋白。血清 IL-6 和 CRP 水平是评估炎症活动度的常用指标
- IL-10:重要的抗炎因子,由 Treg 和多种细胞分泌
- IL-12:驱动 Th1 分化,激活 NK 细胞
- IL-17:Th17 的标志性产物,招募中性粒细胞
干扰素(Interferons, IFN):
- I 型(IFN-α/β):几乎所有有核细胞都能产生,是抗病毒免疫的第一道细胞因子防线
- II 型(IFN-γ):主要由 Th1 和 NK 细胞产生,激活巨噬细胞的杀菌能力,上调 MHC 表达
- III 型(IFN-λ):主要在黏膜上皮起抗病毒作用,副作用较 I 型小
肿瘤坏死因子(TNF-α/β):TNF-α 是最很强的促炎细胞因子之一,能直接诱导肿瘤坏死(因此得名),但也参与多种炎症性疾病的病理过程。抗 TNF-α 生物制剂(如英夫利昔单抗、阿达木单抗)是类风湿关节炎和克罗恩病的一线治疗药物。
集落刺激因子(CSF):调控造血干细胞的增殖和分化。G-CSF 用于化疗后中性粒细胞减少症的患者,也用于动员造血干细胞进入外周血以供采集(造血干细胞移植的前序步骤);M-CSF 促进单核/巨噬细胞生成;GM-CSF 则同时作用于粒细胞和单核细胞谱系,在某些疫苗中作为佐剂使用以增强免疫应答。
转化生长因子-β(TGF-β):虽然不属于严格意义上的"白细胞介素",但 TGF-β 是免疫系统中最重要的调节性细胞因子之一。它在 Th17 和 Treg 的分化中起关键作用——低浓度 TGF-β 促进 Th17 分化(与 IL-6 协同),高浓度 TGF-β 则促进 Treg 分化。TGF-β 还抑制多种免疫细胞的活化和增殖,是肿瘤微环境中最主要的免疫抑制因子之一。
细胞因子的四大特性
理解细胞因子网络的复杂性,关键在于掌握其四大特性:
多效性(Pleiotropy):一种细胞因子可以作用于多种不同细胞,产生不同的效应。比如 IL-4 能促进 B 细胞增殖、驱动 Th2 分化、抑制 Th1 分化、促进肥大细胞生长。
冗余性(Redundancy):多种不同细胞因子可以产生相似的生物学效应。IL-2、IL-4、IL-7 都能促进 T 细胞增殖。这种冗余是进化的"保险机制"——一条路被堵了还有别的路。
协同作用(Synergy):两种细胞因子共同作用时,效果大于各自单独作用之和。IFN-γ 和 TNF-α 单独作用对肿瘤细胞的杀伤有限,但联合使用时效果显著增强。
拮抗作用(Antagonism):一种细胞因子可以抑制另一种细胞因子的效应。IFN-γ 促进 Th1 分化的同时抑制 Th2;IL-10 抑制多种促炎细胞因子的产生。IL-12 和 IL-4 分别驱动 Th1 和 Th2 分化,它们在效应上相互拮抗——一个感染的免疫应答倾向于 Th1 还是 Th2,很大程度上取决于早期微环境中哪种细胞因子占主导。
⚠️ 细胞因子风暴:当细胞因子网络失控——大量促炎细胞因子(IL-6、TNF-α、IL-1 等)同时大量释放——就会引发系统性炎症反应,导致多器官功能衰竭。这在严重 COVID-19、SARS 和某些 CAR-T 治疗中都有报道。托珠单抗(抗 IL-6R 抗体)已被用于治疗细胞因子风暴。细胞因子风暴的发生机制涉及正反馈循环:炎症细胞因子招募更多炎症细胞,这些细胞又产生更多细胞因子,形成失控的级联放大。
JAK-STAT 信号通路:细胞因子的"收信机制"
通路概述
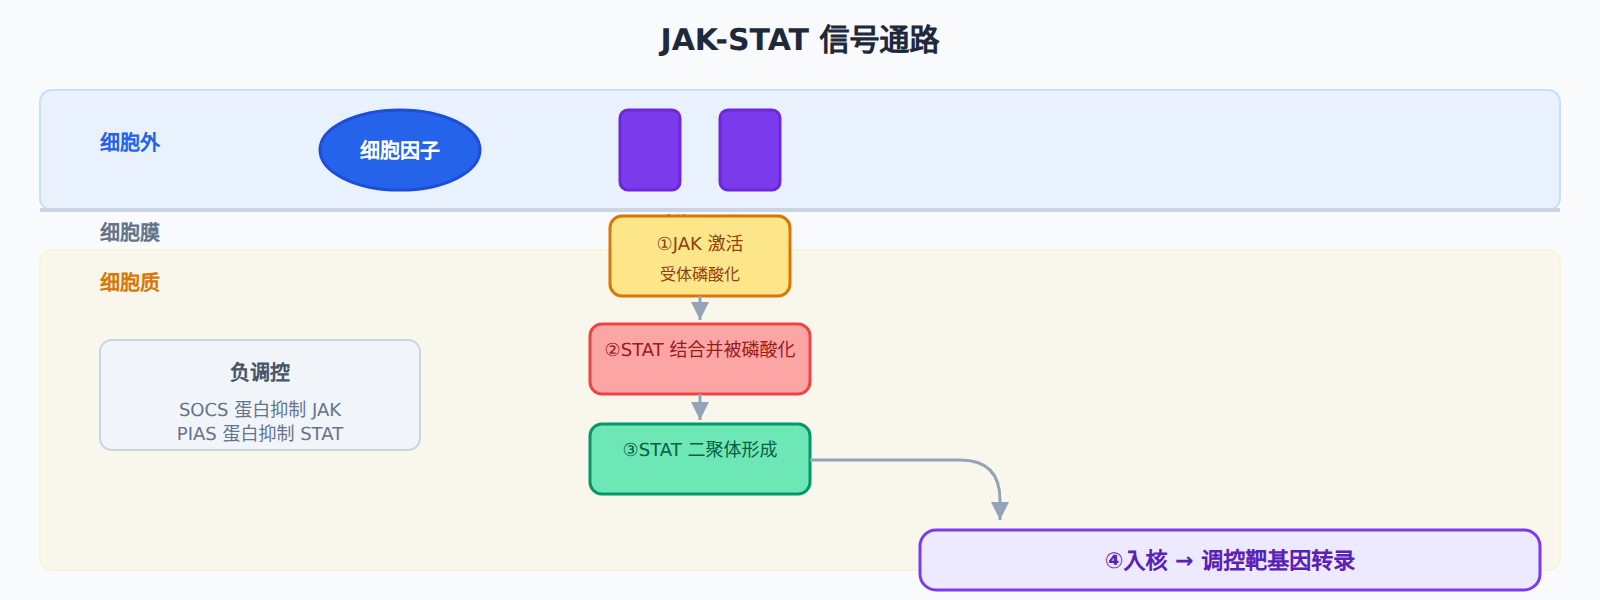
JAK-STAT 是细胞因子信号转导最核心的通路。它是一条"快线"——从细胞因子结合受体到基因表达改变,整个过程可以在几分钟内完成。
逐步分解
步骤 ①:细胞因子结合诱导受体二聚化
细胞因子受体通常以单体形式存在于膜上。当细胞因子结合后,两个受体亚基靠拢形成二聚体,暴露出胞内的 JAK 结合位点。
步骤 ②:JAK 激活和受体磷酸化
JAK(Janus Kinase)是与受体胞内区非共价结合的酪氨酸激酶。受体二聚化后,两个 JAK 相互磷酸化(反式磷酸化)并被激活。激活的 JAK 磷酸化受体上的酪氨酸残基,形成 STAT 蛋白的"停泊位点"。
步骤 ③:STAT 结合、磷酸化和二聚化
STAT(Signal Transducer and Activator of Transcription)通过 SH2 结构域识别并停靠在磷酸化的受体位点上。JAK 随后磷酸化 STAT。磷酸化的 STAT 从受体上脱落,两个磷酸化 STAT 通过 SH2-pTyr 相互结合形成二聚体。
步骤 ④:核转位和基因调控
STAT 二聚体进入细胞核,作为转录因子结合到靶基因启动子的特定序列上,激活或抑制基因转录。不同的 STAT 二聚体识别不同的 DNA 序列:STAT1 识别 GAS 元件(IFN-γ 激活基因),STAT3 识别相似的 GAS 元件但靶基因谱不同,STAT5 识别 GAS 元件并调控 IL-2 靶基因。
不同的细胞因子通过不同的 JAK-STAT 组合来传递信号。例如,IL-2 通过 JAK1/JAK3 激活 STAT5,IFN-γ 通过 JAK1/JAK2 激活 STAT1,IL-6 通过 JAK1/JAK2 激活 STAT3。这种"一对多"的映射使得细胞因子的效应既有特异性(通过不同的 STAT 组合),又有一定的冗余性(某些 STAT 可以被多种细胞因子激活)。
负调控:SOCS 和 PIAS
JAK-STAT 通路的"刹车系统"同样精密:
- SOCS(Suppressor of Cytokine Signaling):STAT 激活后的产物之一,形成负反馈回路。SOCS 结合 JAK 并抑制其活性
- PIAS(Protein Inhibitors of Activated STAT):在核内直接结合 STAT,阻止其与 DNA 结合
这种负反馈机制确保了细胞因子信号是"脉冲式"的而非持续性的——信号来了就响应,然后迅速关闭。在实验研究中,检测磷酸化 STAT 的水平是评估细胞因子信号激活程度的常用方法。通过 Western Blot 或流式细胞术检测 pSTAT 的水平,可以在数分钟内判断特定细胞因子通路是否被激活,这比检测下游基因产物的 mRNA 或蛋白要快得多。
🔬 靶向 JAK 的药物:JAK 抑制剂(如托法替尼 tofacitinib、巴瑞替尼 baricitinib)已被批准用于类风湿关节炎、银屑病等自身免疫病,以及 COVID-19。它们通过阻断多种细胞因子的下游信号来抑制过度免疫应答。但需要注意的是,JAK 抑制剂的非选择性意味着它们会同时抑制多种细胞因子通路,可能导致感染风险增加和血细胞减少等副作用。新一代的选择性 JAK 抑制剂(如 upadacitinib 选择性靶向 JAK1)试图在疗效和安全性之间找到更好的平衡。
趋化因子:细胞的 GPS 系统
趋化因子是细胞因子家族中专门负责"导航"的成员。它们通过形成浓度梯度,引导免疫细胞定向迁移。
四大家族
根据 N 端半胱氨酸排列方式分四大类:
- CC 趋化因子(如 CCL2/MCP-1):趋化单核细胞、T 细胞
- CXC 趋化因子(如 CXCL8/IL-8):趋化中性粒细胞。CXCL8 是感染部位中性粒细胞募集的关键趋化因子,其血清水平是严重感染和脓毒症的预后标志物之一
- CX3C 趋化因子(CX3CL1):趋化单核细胞和 T 细胞
- C 趋化因子(如 XCL1):趋化 T 细胞和 NK 细胞
趋化因子及其受体之间存在复杂但有序的对应关系。CXC 受体(CXCR)通常对应 CXC 趋化因子,CC 受体(CCR)对应 CC 趋化因子。但某些病毒进化出了"诱骗受体"(decoy receptor),如巨细胞病毒编码的 US28 蛋白能结合多种 CC 趋化因子却不传递信号,从而干扰宿主的免疫细胞募援——这是病毒免疫逃逸策略的一个典型例子。
白细胞募集的级联过程
免疫细胞从血液迁移到感染部位是一个精密的四步级联:
- 滚动:选择素介导的低亲和力相互作用,白细胞在内皮上缓慢滚动
- 激活:趋化因子激活白细胞表面的整合素,使其从低亲和力转变为高亲和力
- 牢固黏附:高亲和力整合素与 ICAM-1/VCAM-1 牢固结合
- 穿壁迁移:白细胞穿过内皮细胞间隙进入组织
这个过程类似于"先看看(滚动),确认是目标(激活),然后下车(牢固黏附),最后进门(穿壁)"。整个级联过程在急性炎症中极为高效——感染发生后数小时内,大量中性粒细胞就能到达感染部位,外周血中性粒细胞计数也会升高,这是急性细菌感染的典型实验室指标。
趋化因子在疾病中的作用
趋化因子受体不仅是"导航"工具,还是病原体的入侵靶点。HIV 利用 CCR5 或 CXCR4 作为辅助受体进入 CD4+ T 细胞——CCR5 缺陷("德尔塔32"突变)的个体对 R5 型 HIV 具有天然抵抗力。这个发现催生了 CCR5 拮抗剂(马拉韦罗,maraviroc)作为抗 HIV 药物,以及通过基因编辑 CCR5 获得抗 HIV 免疫的尝试("柏林病人"案例)。
在肿瘤免疫中,趋化因子梯度的异常会导致免疫细胞无法有效浸润肿瘤——这就是"冷肿瘤"的特征之一。某些肿瘤通过分泌特定的趋化因子(如 CCL22)来招募 Treg 细胞,从而在肿瘤微环境中营造免疫抑制状态。理解趋化因子网络的调控,对开发促进 T 细胞浸润的肿瘤免疫策略意义重大。
下一节:3.3 补体系统与免疫分子网络——我们将解析补体的三条激活途径和整体免疫分子网络的运作逻辑。