2.1 固有免疫的屏障与识别机制
2.1 固有免疫的屏障与识别机制
本节摘要:固有免疫的第一道防线由物理屏障(皮肤、黏膜)和化学屏障(抗菌肽、胃酸、溶菌酶等)构成。当屏障被突破后,模式识别受体(PRR)通过识别病原体相关分子模式(PAMPs)和损伤相关分子模式(DAMPs)实现快速的非特异性识别。本节解析屏障防御的策略和 PRR/PAMPs 识别系统的工作原理。
核心问题
阅读完本节,你应当能够:
- 列出人体主要的物理和化学免疫屏障
- 解释屏障防御被突破的常见途径
- 描述 PRR 识别 PAMPs/DAMPs 的核心机制
- 区分 TLR、NLR、CLR 等主要 PRR 家族的功能
物理屏障:人体的城墙
人体最大的器官——皮肤——是固有免疫最直观的物理屏障。完整的皮肤覆盖了约 1.5-2 平方米的体表面积,它的多层上皮结构加上角质层的保护,使得大多数微生物无法穿透。
但皮肤不只是"一层皮"那么简单。它的防御是多层次的:
- 角质层:由多层死亡的上皮细胞堆叠而成,形成物理屏障。角质层的脂质基质(特别是神经酰胺)使得水溶性物质很难渗透
- 皮脂腺分泌:皮脂中的脂肪酸具有抗菌活性,能抑制多种细菌和真菌的生长
- 汗腺分泌:汗液中含有抗菌肽(如 dermcidin),能在皮肤表面创造不利于微生物生长的环境
- 正常菌群:皮肤表面定植着大量共生微生物,它们通过竞争营养物质和分泌抗菌物质来抑制致病菌
黏膜屏障覆盖了呼吸道、消化道和泌尿生殖道,总面积远超皮肤。黏膜防御的特殊之处在于:
- 黏液层:呼吸道和消化道表面覆盖着黏液层,能黏附微生物并通过纤毛运动或蠕动将它们排出体外
- 纤毛系统:呼吸道上皮的纤毛以协调的节拍将黏液和捕获的颗粒向喉部推送,最终被吞咽或咳出
- 胃酸:胃内容物的 pH 值通常在 1.5-3.5 之间,足以杀灭绝大多数摄入的细菌
💡 关键直觉:屏障防御的策略是"不让你进来"。这听起来简单,但实际上非常高效——绝大多数潜在的病原体在接触屏障的瞬间就被挡住了。真正突破屏障并建立感染的是极少数。理解这一点有助于理解为什么免疫系统的"常规运行"不需要大动干戈。
屏障被突破的常见途径
再坚固的城墙也有薄弱环节。屏障防御被突破的常见情况包括:
- 伤口:皮肤完整性破坏后,微生物可以直接进入皮下组织
- 黏膜损伤:吸烟损害呼吸道纤毛,胃酸抑制药物提高胃部 pH,抗生素扰乱肠道菌群
- 特殊入侵策略:某些病原体进化出了主动穿越屏障的能力。比如,流感病毒能特异性感染呼吸道上皮细胞并在其中复制;幽门螺杆菌利用其尿素酶产生的氨来中和胃酸,然后穿透黏液层到达胃黏膜
化学屏障:分子层面的武器
除了物理阻挡,屏障还部署了多种化学武器:
**溶菌酶(Lysozyme)**存在于眼泪、唾液和黏液中,能水解细菌细胞壁中的肽聚糖(peptidoglycan),对革兰氏阳性菌特别有效。
**防御素(Defensins)**是一类带正电荷的小分子抗菌肽,能与带负电荷的细菌膜结合,在膜上形成孔洞导致细菌内容物泄漏。防御素对细菌、真菌和某些有包膜病毒都有杀灭作用。
**急性期蛋白(Acute Phase Proteins)**是肝脏在炎症刺激下大量合成的一类蛋白质。其中 C-反应蛋白(CRP)能结合细菌表面的磷酸胆碱,促进补体激活和吞噬作用。
模式识别受体系统
当屏障被突破后,固有免疫细胞需要快速判断"是否来了不速之客"。它们依靠的就是模式识别受体(Pattern Recognition Receptors, PRRs)系统。
PAMPs 和 DAMPs
PRR 识别的不是特定病原体的特定分子,而是进化上高度保守的分子模式——这些模式对病原体的生存至关重要,所以它们不容易变异来逃避识别。
**病原体相关分子模式(PAMPs)**是微生物特有而宿主没有的分子特征:
- 细菌的脂多糖(LPS)——革兰氏阴性菌细胞壁成分
- 肽聚糖(Peptidoglycan)——细菌细胞壁的骨架
- 鞭毛蛋白(Flagellin)——细菌运动器官的成分
- 病毒的双链 RNA——多数哺乳动物细胞不产生 dsRNA
- 真菌的甘露糖和 β-葡聚糖——真菌细胞壁成分
- 细菌 DNA 中未甲基化的 CpG 基序
**损伤相关分子模式(DAMPs)**是宿主细胞受损或死亡时释放的信号分子:
- 热休克蛋白
- 高迁移率族蛋白 B1(HMGB1)
- ATP
- 尿酸结晶
DAMPs 的识别启动了"无菌性炎症"——即使没有病原体,组织损伤也能引发炎症反应。这就是为什么心肌梗死或外伤后会出现局部炎症。
主要 PRR 家族
PRR 按定位和结构分为几个主要家族:
| PRR 家族 | 细胞定位 | 识别靶标 | 典型成员 | 主要功能 |
|---|---|---|---|---|
| Toll 样受体(TLR) | 膜表面/内体 | LPS、鞭毛蛋白、dsRNA 等 | TLR4(LPS)、TLR3(dsRNA) | 启动炎症和 I 型干扰素应答 |
| NOD 样受体(NLR) | 胞浆 | 肽聚糖片段、胞内细菌 | NOD1、NOD2、NLRP3 | 形成炎症小体 |
| RIG-I 样受体(RLR) | 胞浆 | 病毒 RNA | RIG-I、MDA5 | 诱导 I 型干扰素 |
| C 型凝集素受体(CLR) | 膜表面 | 真菌甘露糖、细菌糖类 | Dectin-1、Mannose Receptor | 吞噬和炎症 |
| DNA 感受器 | 胞浆 | 细胞质中异常的 DNA | cGAS/STING | 诱导 I 型干扰素 |
TLR 识别系统的示意图
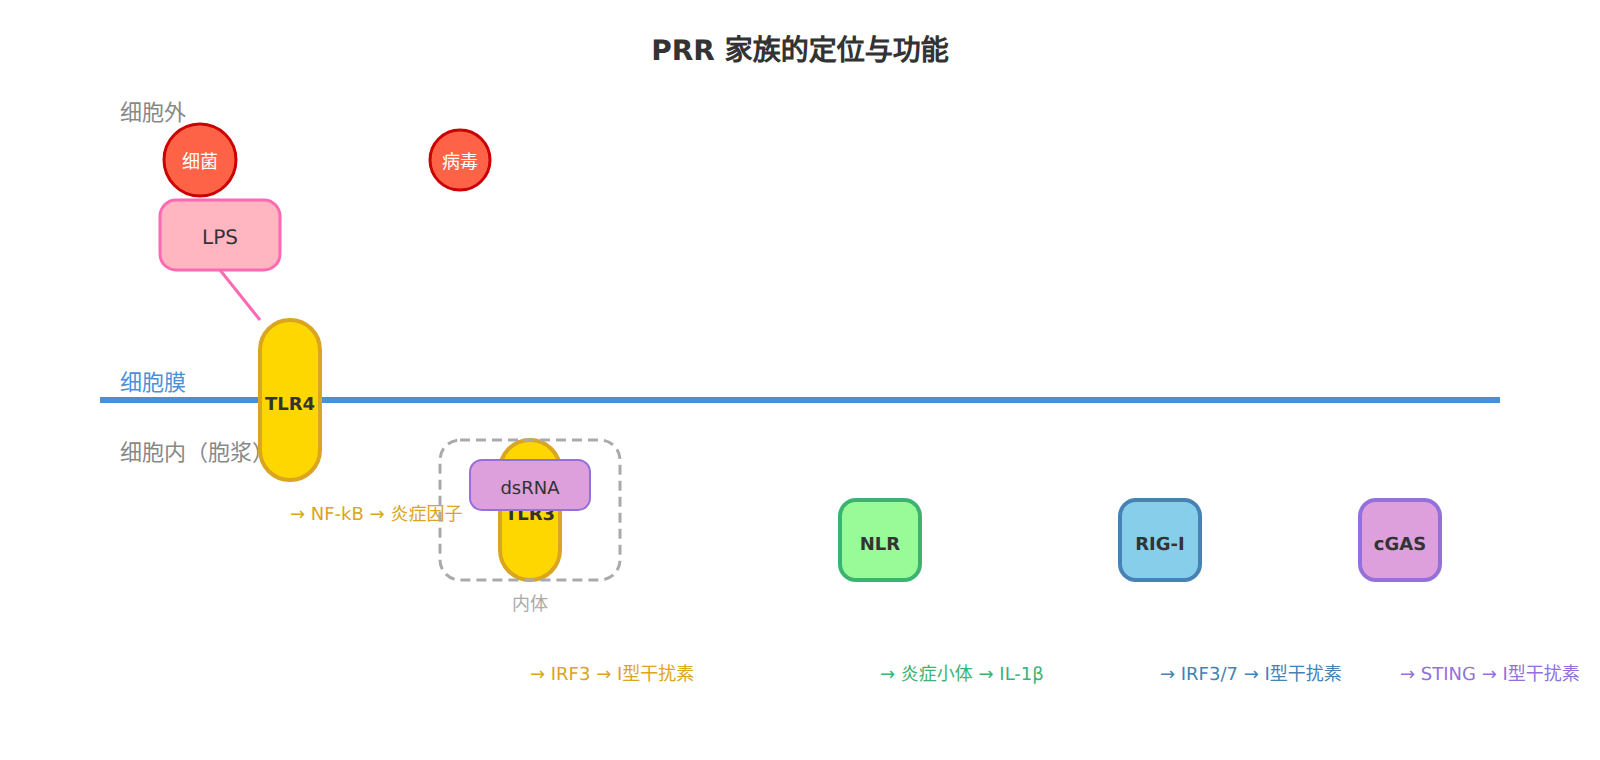
这张图揭示了 PRR 的一个重要设计原则:分层部署。膜表面的 TLR 在病原体入侵的早期就能识别其表面分子,而胞浆内的 NLR、RLR 和 cGAS 则检测已经进入细胞内部的病原体成分。这相当于"城门哨兵"和"城内巡逻队"的关系——外层发现可疑就报告,漏进来的被内层拦截。
⚠️ 实验要点:TLR4 识别 LPS 是免疫学研究中最常用的实验模型之一。LPS 刺激可以模拟细菌感染引发的炎症反应,广泛用于体外研究巨噬细胞和树突状细胞的功能。但要注意,不同来源的 LPS 活性差异很大,实验中需要标定其浓度。
TLR 信号通路:把"有入侵者"翻译成炎症
识别只是第一步,真正发挥作用的是识别之后的信号转导。以 TLR4 为例,LPS 与受体结合后,下游分成两条主要通路:
- MyD88 依赖通路:TLR4 胞内段的 TIR 结构域招募 MyD88,经过 IRAK 激酶级联,最终激活转录因子 NF-κB。NF-κB 入核后启动促炎细胞因子(TNF-α、IL-1β、IL-6)和趋化因子的转录——这是炎症反应的"总开关"。
- TRIF 依赖通路:TLR4 被内吞到内体后转而招募 TRIF,激活 IRF3,诱导 I 型干扰素(IFN-α/β)表达。I 型干扰素是抗病毒免疫的核心分子。
这两条通路不是二选一,而是顺序协作:MyD88 通路先快速启动炎症,TRIF 通路随后补充抗病毒应答。胞内感受器(RLR、cGAS)也大多通向 IRF3 或 NF-κB,殊途同归——最终都是把"有入侵者"这个信号翻译成细胞可执行的转录程序。
NLRP3 炎症小体:胞内危险感的执行者
胞浆中的 NLR 家族成员 NLRP3 是炎症研究中最受关注的靶点之一。它的激活需要"两步许可":
- 启动信号:TLR 激动剂或 TNF-α 先上调 NLRP3 和 pro-IL-1β 的表达——相当于"装好弹药"。
- 激活信号:胞内出现 K⁺ 外流、线粒体活性氧升高、组织蛋白酶 B 释放或尿酸结晶进入,触发 NLRP3 组装成炎症小体复合物,激活 caspase-1。
活化的 caspase-1 切割 pro-IL-1β 和 pro-IL-18 使其成熟释放,同时切割 gasdermin D,在细胞膜上打孔引发焦亡(pyroptosis)。焦亡的意义在于:被感染的细胞在死亡的同时释放大量炎症信号,把"这里有麻烦"的信息放大给整个组织。
从识别到疾病:三个真实例子
痛风:无菌性炎症的教科书案例。 血液中尿酸过饱和后形成尿酸盐结晶,沉积在关节腔。这些结晶本身不是病原体,但被巨噬细胞当作 DAMPs 识别——通过吞噬结晶、激活 NLRP3 炎症小体,大量释放 IL-1β,引起关节的红肿热痛。秋水仙碱治疗痛风的机制正是抑制微管组装、阻断炎症小体激活后的 IL-1β 释放通路。这个例子清楚展示了"无菌性炎症"的真实过程:没有细菌,DAMP 一样能点燃炎症。
NOD2 突变与克罗恩病。 NOD2 是识别胞壁酰二肽(细菌肽聚糖片段)的胞内 PRR。约三分之一的克罗恩病患者携带 NOD2 功能缺失突变。失去 NOD2 意味着肠道上皮对胞内细菌的监测失灵,共生菌失控刺激其他炎症通路,反而导致慢性过度炎症。一个"识别系统失灵"的受体,最终表现为炎症性肠病——识别不足与应答过度的矛盾在这个病里体现得淋漓尽致。
革兰氏阴性菌败血症。 肠道或泌尿道感染时,革兰氏阴性菌释放大量 LPS 进入血流,TLR4 被持续过度激活,TNF-α、IL-1β 等细胞因子呈瀑布式释放(细胞因子风暴),引发脓毒性休克、弥散性血管内凝血和多器官衰竭。临床上对抗 LPS 的治疗(如多黏菌素 B 吸附)效果有限,反而凸显了免疫应答"适度"的重要性——屏障识别机制的失稳,可以从小小的感染演变成全身性灾难。
抗菌肽:被忽视的化学防线细节
化学屏障的武器库里,抗菌肽是研究最深入的一类。人体内最主要的抗菌肽家族除了前面提到的防御素,还包括 cathelicidin(LL-37)——它是目前唯一在人体中发现的 cathelicidin 家族成员,由中性粒细胞、上皮细胞和角质形成细胞分泌。LL-37 的杀灭机制很有意思:它带正电荷,能选择性地与带负电荷的细菌膜结合(宿主细胞膜因富含胆固醇而带更多中性电荷,受保护),在细菌膜上形成孔道使其内容物泄漏。除了直接杀菌,LL-37 还有免疫调节功能——它能把脂多糖从细菌膜上剥离,减少 LPS 对 TLR4 的刺激,从而在一定程度上"灭火"而不是"火上浇油"。
维生素 D 与抗菌肽的关联是近年的热门话题:维生素 D 的活性形式能直接上调 LL-37 基因的表达,这被用来解释为什么维生素 D 缺乏与呼吸道感染风险升高相关。不过需要提醒的是,这个关联来自观察性研究,维生素 D 补充能否真的降低感染风险,随机对照试验的结果并不一致——抗菌肽的故事告诉我们,屏障化学的细节很迷人,但转化到临床建议时要警惕相关性不等于因果性。
本章回顾
- 物理屏障(皮肤、黏膜)和化学屏障(溶菌酶、防御素、胃酸)构成第一道防线
- 屏障防御的核心策略是"不让你进来",绝大多数病原体在此阶段就被挡住
- PAMPs是病原体特有的保守分子模式,DAMPs是宿主损伤释放的信号
- PRR 家族按定位分层部署:膜表面 TLR、内体 TLR、胞浆 NLR/RLR/cGAS
- TLR 系统是最重要的 PRR 家族,既能启动炎症反应(TLR4→NF-κB),也能诱导 I 型干扰素(TLR3→IRF3)
下一节将转向适应性免疫——它是如何实现固有免疫做不到的"精确打击"和"持久记忆"的。