2.2 适应性免疫的核心特征
2.2 适应性免疫的核心特征
本节摘要:适应性免疫拥有三大核心特征——特异性、记忆性和多样性。这三个特性相互依存,共同构建了适应性免疫的"精确打击体系"。本节从分子层面解析这三大特征的生物学基础,重点讲解 V(D)J 重组、克隆选择学说和免疫记忆的形成机制。
本节地图
阅读完本节,你应当能够:
- 用自己的话解释适应性免疫三大核心特征及其分子基础
- 描述 V(D)J 重组如何产生天文数字般的受体多样性
- 阐述克隆选择学说的核心原理及其在免疫应答中的作用
- 解释初次免疫应答和二次免疫应答的差异及临床意义
- 分析免疫记忆细胞的类型、特征和持久性机制
从"广谱警卫"到"精确狙击"
固有免疫像城市巡逻队——反应快、覆盖面广,但分不清"张三的病毒"和"李四的病毒"。适应性免疫则完全不同:它像一支精锐的狙击小队,每个成员只认一个目标,一旦锁定就穷追不舍,而且"记住"这张脸,下次再碰上,直接动手。
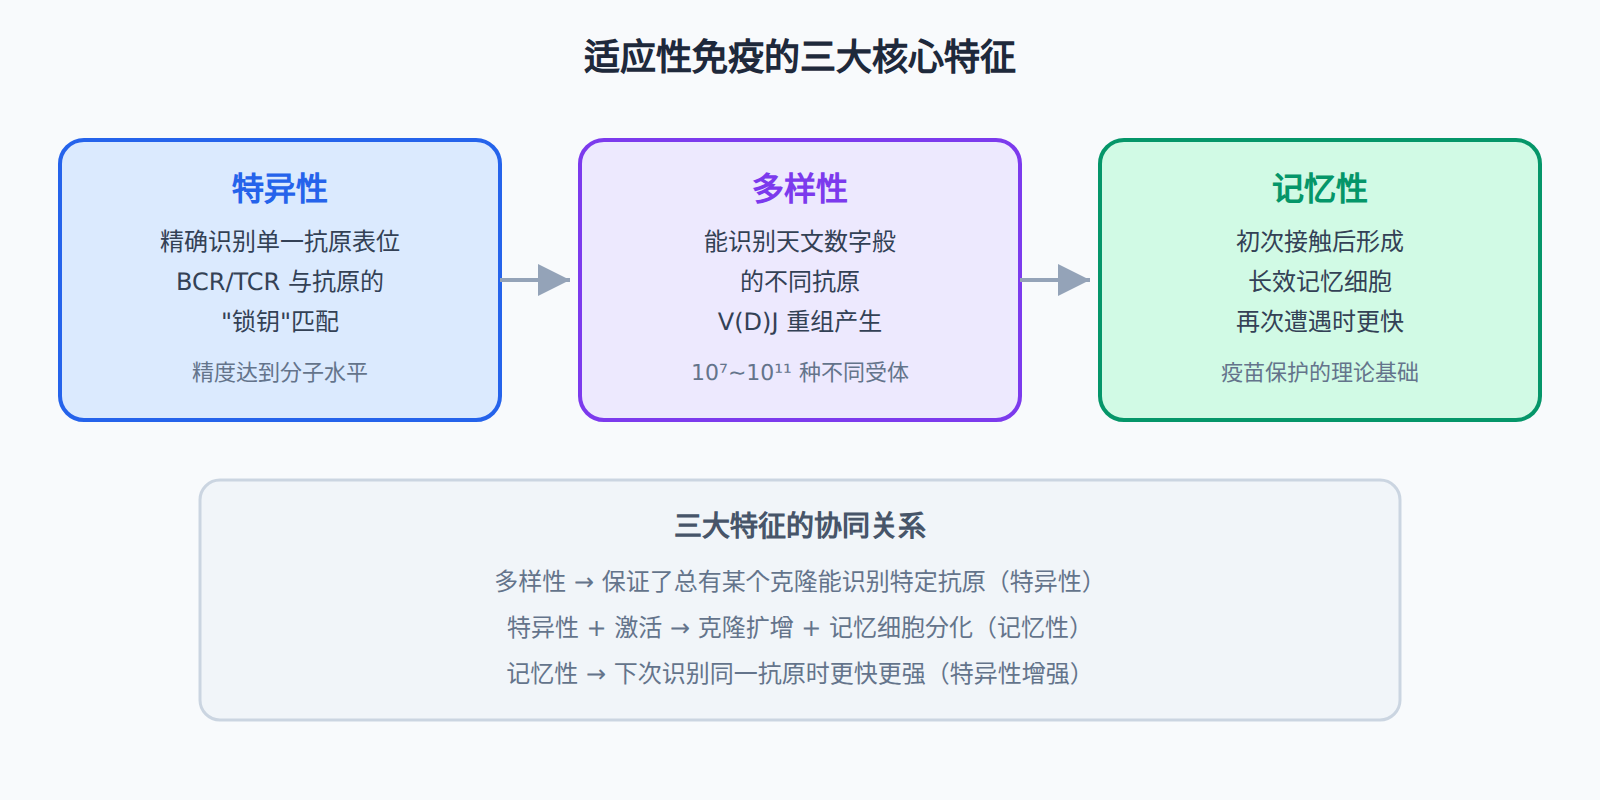
这种从"广谱"到"精确"的跃迁,依赖三大核心特征:特异性解决"认准目标",多样性解决"总有一个能认出来",记忆性解决"下次更快更狠"。
特异性:分子水平的"锁钥"匹配
特异性是适应性免疫最直观的特征。每个 B 细胞表面的 BCR 和每个 T 细胞表面的 TCR,都只识别一个或极少数几个特定的抗原表位(epitope)。
什么是抗原表位
抗原表位是抗原分子上能被免疫受体识别的最小结构单元。理解表位,对疫苗设计至关重要——你想让免疫系统记住的,就是那些关键表位。
表位分两类:
- 线性表位:由连续氨基酸序列构成。比如一段 8-12 个氨基酸的肽段,即使蛋白质变性(展开)后仍可被识别。T 细胞主要通过 MHC 分子识别线性表位。
- 构象表位:由蛋白质折叠后,在三维空间中凑到一起的不连续氨基酸构成。一旦蛋白质变性,构象表位消失。大多数 B 细胞识别的是构象表位——这也是为什么天然构象的抗原通常比变性的抗原更能有效激发抗体应答。
💡 实验提示:在设计中和抗体检测时,要考虑目标抗原是否保持了天然构象。如果用变性后的蛋白做 ELISA 包被,可能漏掉识别构象表位的抗体。
识别的精度从何而来
BCR 和 TCR 的可变区含有三个互补决定区(CDR1、CDR2、CDR3),其中 CDR3 的变异性最大,直接参与抗原结合。CDR3 序列的多样性来自 V(D)J 重组过程中连接区域的随机核苷酸插入和删除——这正是特异性的分子基础。
一个实际案例:同一个流感病毒蛋白上可能有十几个不同的表位,不同个体的免疫系统能分别"锁定"其中不同的表位。有的人的 B 细胞识别 HA 蛋白的头部,有的人识别茎部——后者往往具有更广谱的中和能力,因为茎部区域在不同流感毒株间更为保守。疫苗设计的一个关键挑战就是如何引导免疫系统去识别那些保守的、广谱的表位,而非那些容易突变的表位。
多样性:V(D)J 重组的随机工程
特异性依赖于一个前提:在数以百万计的淋巴细胞克隆中,总有一个能识别特定抗原。要覆盖地球上可能存在的天文数字般不同的抗原,受体库必须足够大。
基因组困境
人类基因组大约只有 2 万个蛋白质编码基因,但适应性免疫能产生 10⁷ 到 10¹¹ 种不同的受体。显然,这不是靠"一个基因编码一个受体"来实现的。
V(D)J 重组:随机组合的艺术
适应性免疫用一种高明的"乐高拼装"策略解决了多样性问题:
以 BCR 重链为例:基因组中并不是一个完整的可变区基因,而是分散排列的基因片段库——
- V 片段(Variable):约 40-50 个
- D 片段(Diversity):约 23 个
- J 片段(Joining):约 6 个
在 B 细胞发育过程中,这些片段被随机"挑出"并拼接在一起。仅这一步的组合数就已经是 40 × 23 × 6 = 5520 种。加上轻链的 V-J 组合(约 40 × 5 = 200),组合数轻松突破百万。
更关键的是连接多样性:在片段拼接处,脱氧核苷酸转移酶(TdT)会随机添加或删除核苷酸,使得 CDR3 区域几乎可以编码任何氨基酸序列。这一步把多样性推到了天文数字。TdT 只在 B 细胞重链和 T 细胞 β 链的重排中活跃,这意味着轻链(κ 和 λ)和 TCR γδ 链的连接多样性相对较小——它们的多样性更多依赖组合而非连接。
V(D)J 重组多样性来源: 1. 组合多样性:V × D × J 片段的随机选取 2. 连接多样性:TdT 随机添加/删除核苷酸 3. 轻重链配对:重链和轻链的随机组合 4. 体细胞高频突变(激活后):B 细胞在生发中心中 进一步突变其 BCR 基因,优化亲和力
🧬 实验验证:可以通过测序 TCR 或 BCR 的 CDR3 区域来评估一个人的免疫多样性。高通量测序发现,健康成年人的 TCR 库通常包含数百万种不同的克隆。
克隆选择学说:从多样性到特异性
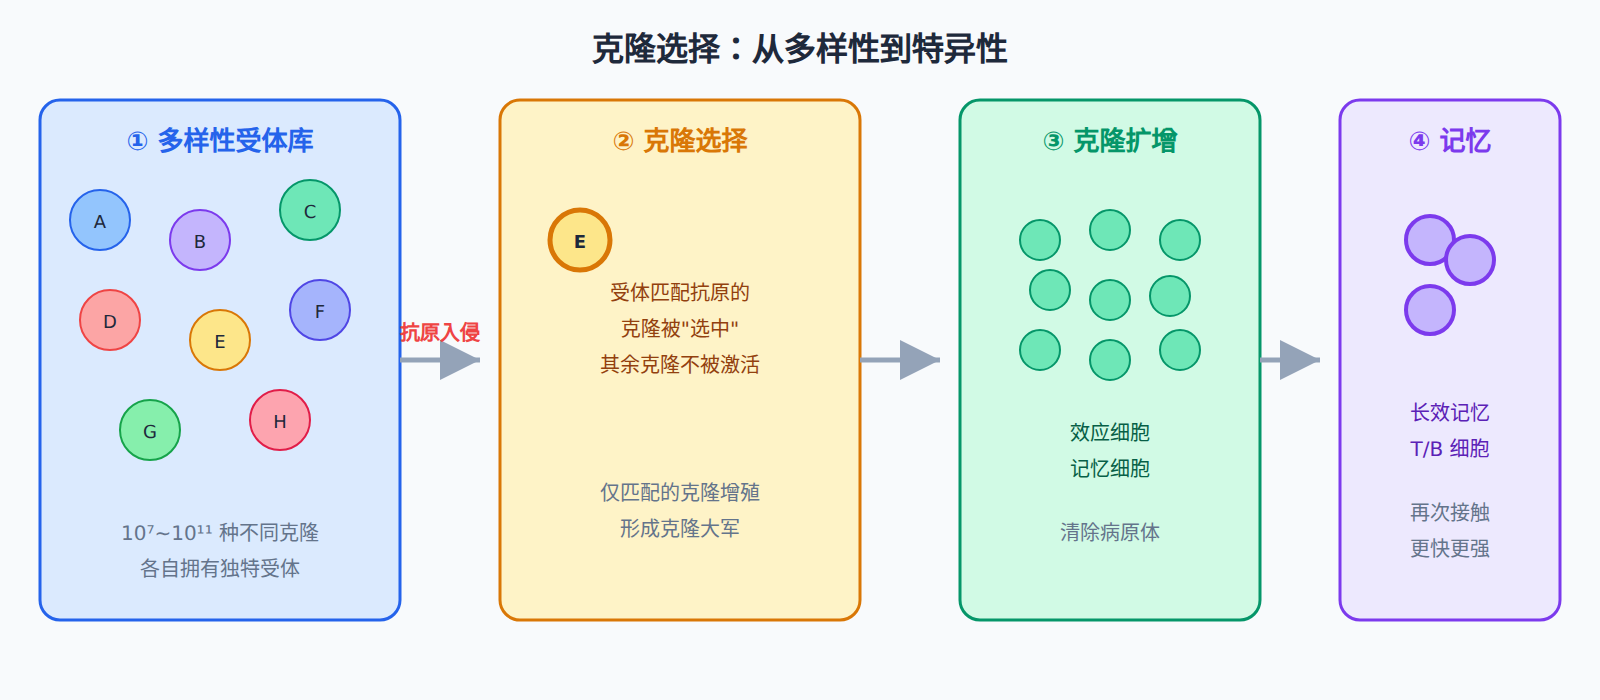
伯内特(Burnet)在 1957 年提出的克隆选择学说,将多样性和特异性统一在一个框架内:
- 每个淋巴细胞在发育早期就通过 V(D)J 重组获得了一个独特的受体
- 受体在接触到抗原之前就已经存在——不是"按需制造"的
- 当抗原与某个淋巴细胞的受体匹配时,这个细胞被选中(selected),开始增殖
- 增殖产生大量相同受体的克隆——这就是克隆扩增
这意味着免疫应答的本质不是"制造"新受体,而是"找到并放大"已有的正确受体。这种"广撒网"的策略看似浪费(大多数淋巴细胞一辈子都碰不到它们的抗原),但确保了几乎任何新出现的病原体都能被识别。
记忆性:免疫系统的"老兵"
初次应答 vs 二次应答
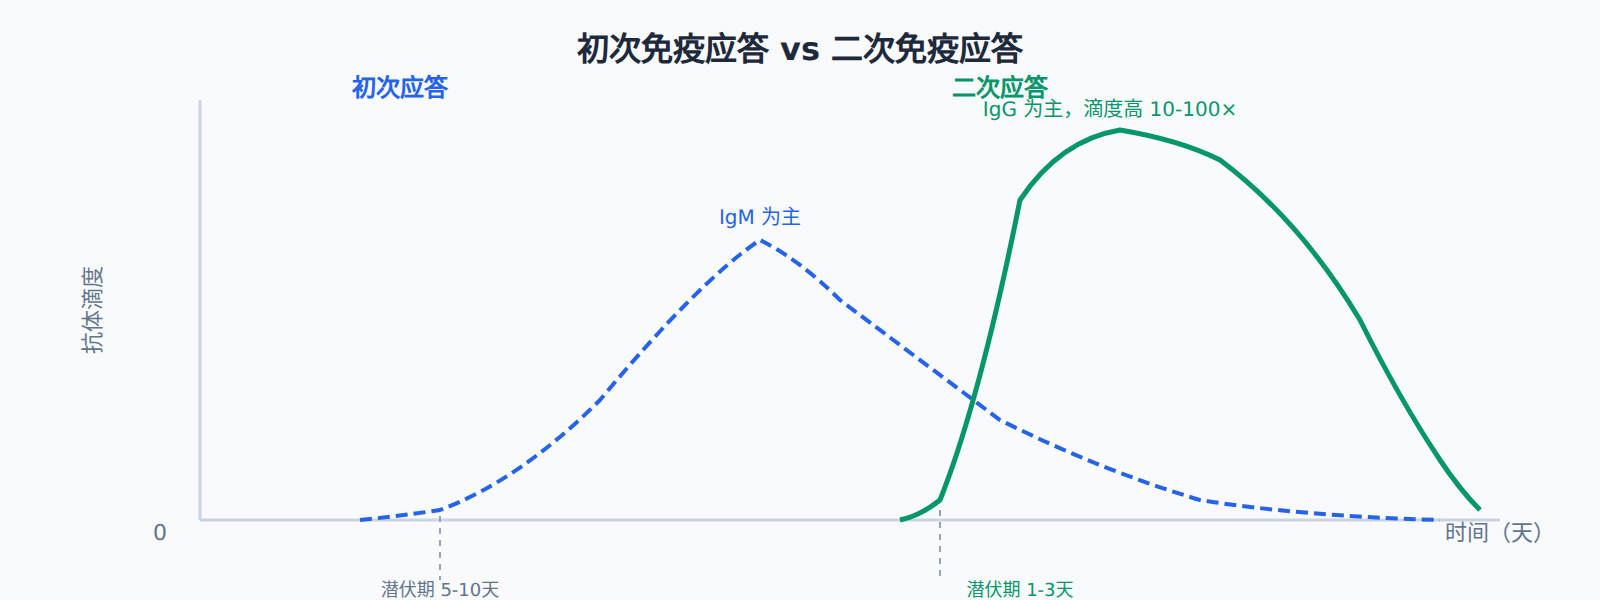
免疫记忆的最直观体现就是初次应答和二次应答的差异:
| 特征 | 初次应答 | 二次应答 |
|---|---|---|
| 潜伏期 | 5-10 天 | 1-3 天 |
| 抗体达峰时间 | 7-14 天 | 3-5 天 |
| 抗体峰值 | 较低 | 高出 10-100 倍 |
| 主要抗体类别 | IgM 为主 | IgG 为主 |
| 抗体亲和力 | 较低 | 高(亲和力成熟) |
| 持续时间 | 数周至数月 | 数月至数年 |
二次应答的"更快、更强、更持久"特征,正是疫苗之所以有效的根本原因。你接种的疫苗不是在"治疗"什么,而是在训练免疫系统记住某个抗原。
记忆细胞的特征
记忆 B 细胞和记忆 T 细胞有一系列不同于效应细胞的特征:
- 长寿命:部分记忆细胞可以存活数年甚至终生。这不像效应细胞在完成任务后大批凋亡
- 低代谢:记忆细胞处于一种"休眠"状态,代谢活性低,但随时准备被重新激活
- 组织分布:记忆细胞分布在次级淋巴器官、骨髓和外周组织中,形成了一张遍布全身的"记忆网络"
- 快速响应:被抗原再次刺激时,记忆细胞能比初始细胞更快地增殖分化
记忆 T 细胞的亚群
记忆 T 细胞进一步分为不同亚群,各有分工:
- 中央记忆 T 细胞(T_CM):主要定居在次级淋巴器官(淋巴结、脾脏),增殖能力强但即时效应功能较弱。它们的角色是"储备军"——再次遇到抗原时快速扩增
- 效应记忆 T 细胞(T_EM):在血液和外周组织中巡逻,具有即时效应功能。遇到抗原立刻分泌细胞因子或杀伤靶细胞
- 组织驻留记忆 T 细胞(T_RM):定居在特定组织(皮肤、肠道、肺),不参与循环。它们是"局部守卫",在病原体再次入侵的入口处第一时间做出反应
💡 临床意义:黏膜疫苗接种(如口服疫苗、鼻喷疫苗)的一个重要优势是能诱导黏膜部位的 T_RM 细胞,在病原体入侵的第一站就将其拦截。
记忆 B 细胞的特殊之处
记忆 B 细胞经历了生发中心的体细胞高频突变和亲和力成熟,其 BCR 对抗原的亲和力远高于初始 B 细胞。这意味着二次应答中产生的抗体不仅能更快出现,而且结合力更强。
另一个重要机制是抗体类别转换:初次应答以 IgM 为主,而记忆 B 细胞在二次应答中主要产生 IgG(或 IgA,取决于组织部位)。IgG 的半衰期约 21 天,远长于 IgM 的 5 天,这意味着保护性抗体能在体内维持更长时间。
核心概念的整合
特异性、多样性和记忆性并非三个独立特性,而是同一系统的三个面:
- 多样性提供了可能性:10¹¹ 种不同受体保证了几乎任何抗原都能找到一个匹配的淋巴细胞
- 特异性选择了正确答案:只有匹配的克隆被激活和扩增,资源集中用于最有效的防御
- 记忆性保存了经验:被验证有效的克隆被保留为记忆细胞,下次直接调用
这种设计的精妙之处在于:你不需要事先知道会面对什么病原体,也不需要修改基因组——随机生成的多样性 + 选择机制,就能自适应地应对未知的威胁。
一个具体的实验验证:血清转换
理解适应性免疫的核心特征,最好的方式是看一个具体的实验。在乙肝疫苗接种的典型方案中(0-1-6个月三剂),第一剂接种后大约10-14天可以检测到抗 HBs 抗体(初次应答),但滴度较低且以 IgM 为主。第二剂接种后(1个月时),抗体滴度迅速升高,以 IgG 为主(二次应答)。第三剂接种后(6个月时),抗体滴度再次升高并维持较长时间。
这个过程中,第一剂和第二剂之间的间隔恰好覆盖了初次应答的启动期和记忆细胞形成期,第三剂则进一步巩固记忆。如果间隔太短(比如0-1-2个月),第二剂和第三剂实际上发挥的是加强初次应答的效果,而非二次应答——记忆细胞还没有形成。这就是为什么疫苗的接种间隔是有科学依据的。
血清学检测中,抗 HBs 抗体滴度 ≥10 mIU/mL 被视为具有保护性。接种疫苗后 1-2 个月的血清学随访可以确认免疫是否成功建立。如果抗体滴度未达标,可能需要补种——这在免疫功能低下者(如透析患者、HIV感染者)中较为常见。
🔬 研究前沿:单细胞测序技术正在揭示记忆细胞形成的分子细节。研究发现,转录因子 TCF-1 在记忆 T 细胞的干性维持中起关键作用。这一发现可能帮助我们在体外更好地培养长效记忆细胞,用于过继性细胞治疗。
下一节:2.3 T 细胞发育与功能——我们将追踪 T 细胞从骨髓出发、在胸腺中经历严格"教育"、最终分化为效应细胞的完整旅程。