2.4 B细胞发育与体液免疫
2.4 B 细胞发育与体液免疫
本节摘要:B 细胞是体液免疫的核心执行者。本节从 B 细胞在骨髓中的发育讲起,重点解析 B 细胞活化的 T 细胞依赖和非 T 细胞依赖两条路径,生发中心反应中的体细胞高频突变与亲和力成熟,抗体类别转换机制,以及抗体发挥效应的四种核心功能(中和、调理、补体激活、ADCC)。
本节导读
阅读完本节,你应当能够:
- 描述 B 细胞在骨髓中的发育阶段和阴性选择机制
- 区分 T 细胞依赖和非 T 细胞依赖的 B 细胞活化路径
- 解释生发中心反应中亲和力成熟和类别转换的机制
- 列举抗体效应的四种主要机制并各举一个实例
- 比较五类免疫球蛋白的结构差异、组织分布和功能特点
B 细胞的发育:在骨髓中完成"出厂检验"
与 T 细胞需要去胸腺"上学"不同,B 细胞的整个发育过程主要在骨髓中完成。
发育阶段
B 细胞发育经历一系列阶段,每个阶段都有特定的表面标记和基因事件:
造血干细胞 → 淋巴系祖细胞 → 祖 B 细胞(Pro-B) → 前 B 细胞(Pre-B): μ 重链重排成功,表达 pre-BCR → 未成熟 B 细胞: 轻链重排完成,表达完整 BCR(IgM) → 成熟 B 细胞: 同时表达 IgM 和 IgD,离开骨髓进入外周
关键事件发生在 Pre-B 阶段:重链基因先完成 V(D)J 重排。成功的重排会产生 μ 重链,它先与替代轻链(surrogate light chain)组成 pre-BCR。pre-BCR 发出信号,告诉细胞"重链成功了,可以开始重排轻链了"。如果重链重排失败(两条等位基因都失败了),细胞凋亡。
骨髓中的阴性选择
未成熟 B 细胞如果其 BCR 对自身抗原表现出高亲和力,会面临两种命运:
- 克隆清除:细胞凋亡
- 受体编辑:重新启动轻链基因重排,试图产生一个新的、不与自身抗原反应的 BCR
受体编辑是一个很有趣的"自救机制"——相当于给细胞一次"重考"的机会。如果重排后仍然与自身抗原高亲和力反应,则最终走向凋亡。
通过阴性选择的成熟 B 细胞离开骨髓,通过血液循环进入外周淋巴器官(淋巴结、脾脏、MALT),等待与抗原的"相遇"。外周血中循环的成熟 B 细胞数量约为每微升血液 100-500 个,占淋巴细胞总数的 10-15%。这些 B 细胞在未遇到抗原之前保持静息状态,寿命约为数周到数月。一旦被抗原激活,它们的命运就完全不同了——开始快速的克隆扩增,后代分化为效应细胞(浆细胞)和记忆细胞。
B 细胞在骨髓中发育的同时,也进行着 V(D)J 重排——与 T 细胞不同的是,B 细胞的重链和轻链重排都发生在骨髓中。B 细胞可以表达两种轻链:κ 链(约 60% 的 B 细胞)和 λ 链(约 40%)。如果一个 B 细胞的 κ 链重排失败,它还可以尝试 λ 链重排,这被称为"等位排斥"和"轻链替代"机制——这种冗余设计增加了成功产生功能性 BCR 的概率。
B 细胞的激活:两条路径
T 细胞依赖的激活(TD 抗原)
大多数蛋白质抗原的激活需要 T 细胞辅助。这是产生高亲和力抗体和免疫记忆的关键路径:
- B 细胞通过 BCR 特异性结合抗原,将抗原内吞
- 抗原被加工处理,通过 MHC II 分子呈递在 B 细胞表面
- 特异性 Th 细胞识别 B 细胞表面的抗原肽-MHC II 复合物
- Th 细胞与 B 细胞形成"联结"——TCR-MHC 提供信号 1,CD40-CD40L 和细胞因子提供信号 2
- 激活的 B 细胞进入淋巴结的生发中心,开始克隆扩增和分化
💡 关键点:B 细胞不仅是抗体生产者,它同时也是抗原呈递细胞。B 细胞的 BCR 能高亲和力地捕获特异性抗原,这比一般的 APC(如树突状细胞)更高效。Th 细胞正是通过识别 B 细胞呈递的抗原来"确认"这个 B 细胞正在应对正确的威胁。
T 细胞非依赖的激活(TI 抗原)
某些抗原不需要 T 细胞辅助就能激活 B 细胞,主要分为两类:
- TI-1 抗原:如细菌脂多糖(LPS),本身具有有丝分裂原活性,能通过 BCR 和 TLR 双重信号激活 B 细胞
- TI-2 抗原:如细菌荚膜多糖,具有高度重复的表位结构,能交联大量 BCR,提供足够的激活信号
TI 应答的特点:主要产生 IgM,很少发生类别转换和亲和力成熟,不形成记忆 B 细胞。这意味着对多糖抗原的应答是"短效"的——虽然初次应答能产生一定水平的保护性 IgM,但没有免疫记忆意味着每次遇到同一病原体都需要重新启动应答。这也是为什么老年人(免疫功能随年龄下降)特别需要肺炎球菌多糖疫苗的加强免疫。
🔬 临床关联:婴幼儿对 TI-2 抗原的应答较弱,这是为什么肺炎球菌多糖疫苗对 2 岁以下儿童效果不佳。结合疫苗通过将多糖与蛋白载体连接,将 TI-2 应答转化为 TD 应答,解决了这个问题。
生发中心反应:抗体的"升级改造"
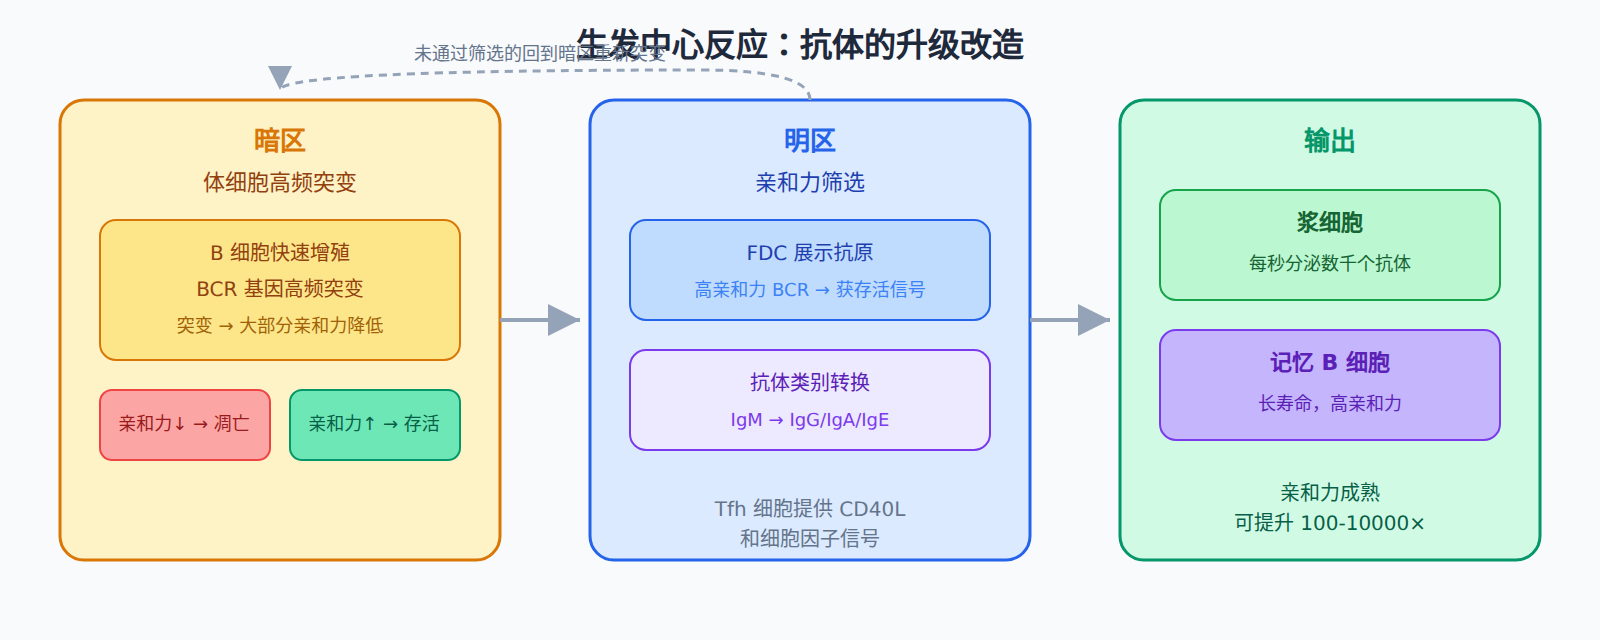
被激活的 B 细胞在淋巴结滤泡中形成生发中心(Germinal Center, GC),这里是抗体"升级改造"的核心工厂。
体细胞高频突变(SHM)
在生发中心的暗区,B 细胞快速增殖,同时其 BCR 基因的可变区发生高频点突变(频率约为每千碱基对每代 10⁻³,远高于正常体细胞突变率的 10⁶ 倍)。
这些突变是随机的,大多数会导致 BCR 亲和力下降或完全丧失——这些细胞会凋亡。少数突变恰好提高了对抗原的亲和力,这些"优胜者"在生发中心的明区被滤泡树突状细胞(FDC)表面的抗原筛选出来,获得存活信号。
这个过程反复进行数轮,就像"进化"的加速版——突变 + 选择 + 扩增,最终产生对抗原亲和力极高的 B 细胞克隆。从初始 BCR 到最终的高亲和力抗体,亲和力可以提升 100-10000 倍。
介导 SHM 的关键酶是活化诱导的胞嘧啶脱氨酶(AID)。AID 将 DNA 中的胞嘧啶(C)脱氨为尿嘧啶(U),在后续的 DNA 修复过程中产生点突变。AID 同时介导了 CSR,因此 AID 缺陷会导致既无法进行 SHM 也无法进行 CSR——表现为血清中只有 IgM、高亲和力抗体缺失、反复感染的免疫缺陷综合征。需要注意的是,AID 的作用机制本质上是一种"受控的基因损伤",如果调控不当,AID 介导的脱氨也可能导致 B 细胞淋巴瘤中的致癌性基因突变——这是为什么慢性炎症和持续的免疫刺激会增加淋巴瘤风险的一个分子解释。
抗体类别转换
生发中心的另一项关键任务是抗体类别转换(Class Switch Recombination, CSR)。在类别转换之前,B 细胞主要表达 IgM。通过 CSR,B 细胞可以"切换"其重链恒定区,从 IgM 切换到 IgG、IgA 或 IgE,同时保留相同的抗原特异性(可变区不变)。
类别转换方向(可逆性低,一般单向): IgM → IgG1/IgG3 (Th1 细胞因子 IL-21, IFN-γ 驱动) IgM → IgG2/IgG4 (Th2 细胞因子 IL-4 驱动) IgM → IgE (Th2 细胞因子 IL-4, IL-13 驱动) IgM → IgA (TGF-β, IL-10 驱动,尤其黏膜部位)
类别转换在 DNA 水平通过切除恒定区基因间的序列来实现——切除 μ 和 δ 恒定区基因之间的序列后,下游的 γ(IgG)、α(IgA)或 ε(IgE)恒定区被"拉近"到可变区后面。
💡 为什么需要类别转换?因为不同抗体类别适合不同的战场。IgG 在血液和组织液中巡逻,适合全身性感染;IgA 在黏膜表面抗蛋白酶降解,适合呼吸道和消化道;IgE 触发肥大细胞脱颗粒,适合抗寄生虫。通过类别转换,同一种特异性抗体可以被部署到最需要它的位置。
抗体效应的四种核心机制
浆细胞产生的大量抗体进入血液循环和组织液,通过多种方式清除病原体:
1. 中和作用
抗体直接结合病原体或毒素的"功能位点",阻止其与宿主细胞结合。比如抗流感抗体结合病毒 HA 蛋白的受体结合位点,阻止病毒侵入呼吸道上皮细胞;抗破伤风毒素抗体结合毒素的活性区域,使其无法干扰神经信号传导。
中和抗体是疫苗保护效果的核心指标——COVID-19 疫苗有效性评估中,中和抗体滴度是最常用的免疫学终点。临床检测中,中和抗体试验通常在 BSL-2 或 BSL-3 实验室中进行:将系列稀释的血清样本与固定量的病毒混合后加入易感细胞,检测哪些稀释度能阻止病毒感染(通过观察细胞病变或检测病毒蛋白表达)。中和抗体滴度越高,说明血清中具有保护性抗体的浓度越大。
2. 调理作用(Opsonization)
抗体(主要是 IgG)的 Fc 段被吞噬细胞表面的 Fc 受体(FcγR)识别。抗体如同"抓手",一端抓住病原体,另一端让吞噬细胞"拉住"。这种标记作用极大增强了吞噬效率——被抗体调理的细菌,被吞噬的速率可以提高数百倍。
C3b(补体裂解产物)也具有类似的调理功能。抗体和 C3b 可以协同作用,形成"双标记"进一步增强吞噬。
3. 补体激活
IgM 和 IgG(特别是 IgG1 和 IgG3)与抗原结合后,其 Fc 段暴露出补体结合位点,激活补体经典途径。最终形成膜攻击复合物(MAC)在病原体膜上打孔,导致病原体裂解。
IgM 是最有效的补体激活剂——它的五聚体结构包含 10 个抗原结合位点,与抗原表面结合后能非常高效地启动补体级联。
4. ADCC(抗体依赖性细胞介导的细胞毒性)
抗体(IgG)的 Fc 段结合 NK 细胞表面的 FcγRIII(CD16),引导 NK 细胞识别并杀伤被抗体标记的靶细胞。NK 细胞释放穿孔素和颗粒酶杀伤靶细胞。
ADCC 在抗病毒感染(如 HIV、流感)和抗肿瘤中起重要作用。治疗性单抗(如利妥昔单抗)的抗肿瘤效果很大一部分就是通过 ADCC 实现的。有研究试图通过改造抗体 Fc 段来增强其与 FcγRIIIa 的结合亲和力,从而增强 ADCC 效应——这正是"抗体工程"(见第5章)的一个重要方向。此外,巨噬细胞和嗜酸性粒细胞也能通过 Fc 受体介导 ADCC,不限于 NK 细胞。NK 细胞表面的 CD16(FcγRIIIa)存在基因多态性,高亲和力变异体(V158)携带者在接受抗体治疗时往往有更好的临床反应,这个发现对个体化用药具有指导意义。
五类免疫球蛋白速查
| 类型 | 血清浓度 | 半衰期 | 主要分布 | 核心功能 |
|---|---|---|---|---|
| IgG | 最高(75-80%) | ~21 天 | 血液、组织液 | 中和、调理、补体激活、ADCC、通过胎盘 |
| IgM | 第三个高 | ~5 天 | 血液 | 早期应答、高效补体激活(五聚体) |
| IgA | 第二个高 | ~6 天 | 黏膜分泌物、初乳 | 黏膜免疫屏障(分泌型二聚体) |
| IgE | 极低 | ~2 天 | 结合于肥大细胞表面 | I 型超敏反应、抗寄生虫 |
| IgD | 极低 | ~3 天 | B 细胞表面 | B 细胞受体组分,参与活化 |
💡 记忆技巧:IgG 是"万能选手",什么都能干;IgM 是"先锋",第一批到场;IgA 是"守门员",看住黏膜;IgE 是"过敏专家",也是"抗寄生虫专家";IgD 是"实习生",主要待在 B 细胞表面学习。
下一章预告:第 3 章将聚焦免疫分子——抗原与抗体、细胞因子、补体系统,这些"武器"和"通信工具"的精细结构和工作原理。