2.3 T细胞发育与功能
2.3 T 细胞发育与功能
本节摘要:T 细胞是适应性免疫的"指挥官"和"杀手"。本节追踪 T 细胞从骨髓出发、在胸腺中经历阳性选择和阴性选择的完整发育过程,解析 CD4+ 辅助性 T 细胞和 CD8+ 细胞毒性 T 细胞的分化路径与效应功能,以及 T 细胞活化的双信号机制。
上手前先明确
阅读完本节,你应当能够:
- 描述 T 细胞从骨髓前体到胸腺成熟的发育阶段
- 区分阳性选择和阴性选择的机制和意义
- 列出 CD4+ T 细胞的主要亚群(Th1/Th2/Th17/Treg)及其功能
- 解释 CD8+ CTL 的两种杀伤机制(穿孔素/颗粒酶和 FasL/Fas)
- 阐述 T 细胞活化的双信号要求及其免疫学意义
T 细胞的生命旅程
T 细胞的故事从骨髓开始,但核心"教育"发生在胸腺。这段旅程可以概括为四个字:出发、选拔、上岗、战斗。
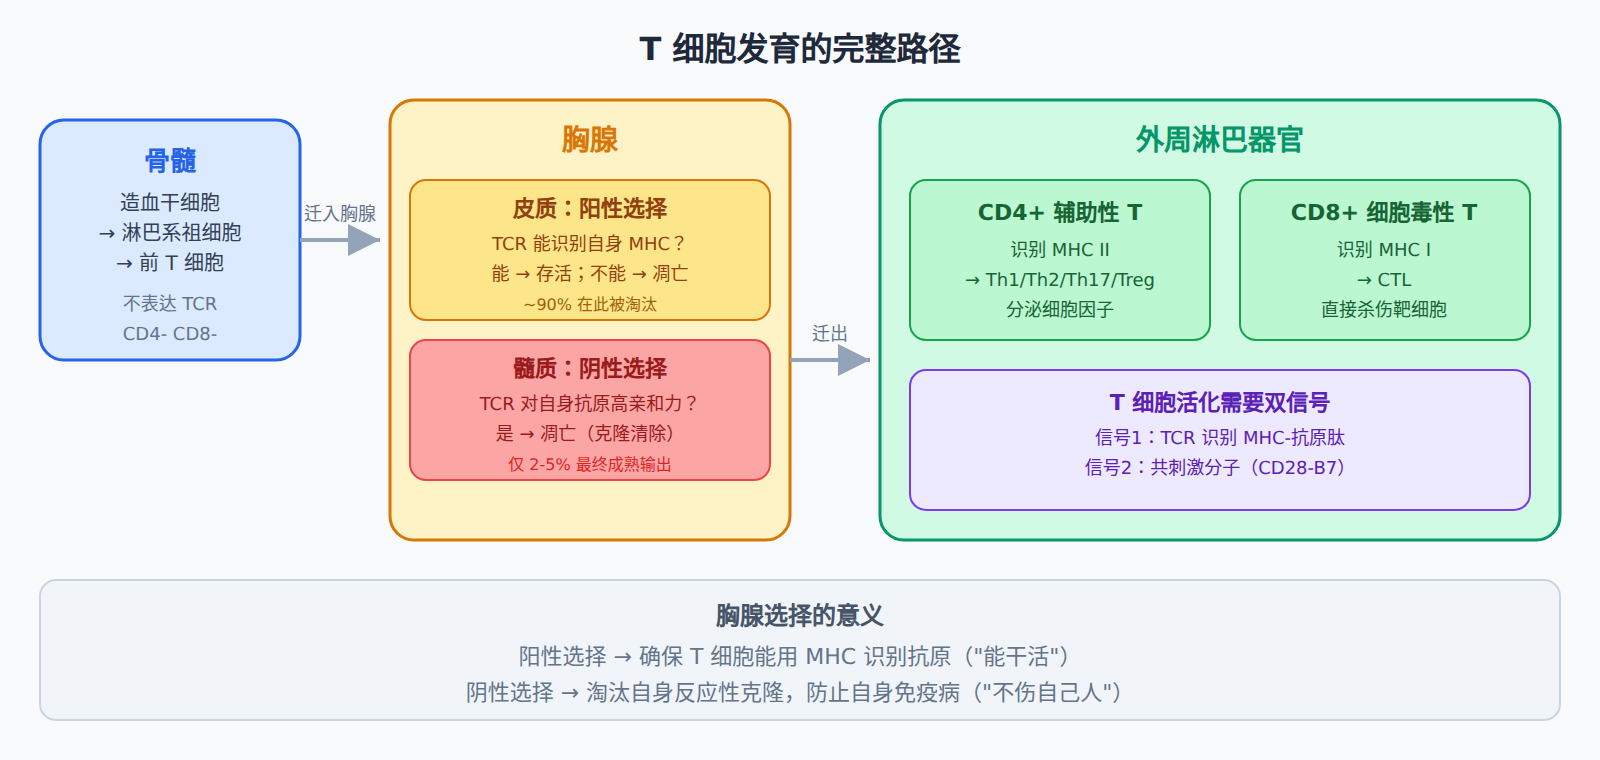
胸腺中的"严酷训练"
阳性选择:学会使用 MHC
前 T 细胞进入胸腺皮质后,首先开始 TCR 基因的重排(先是 β 链,成功后再重排 α 链)。成功表达功能性 TCR 的细胞进入阳性选择阶段。
皮质上皮细胞表面表达 MHC I 和 MHC II 分子。发育中的 T 细胞用其 TCR 去尝试结合这些 MHC 分子:
- 如果 TCR 能以中等亲和力与 MHC I 结合 → 该细胞保留 CD8,丢失 CD4,成为 CD8+ 单阳性 T 细胞
- 如果 TCR 能以中等亲和力与 MHC II 结合 → 该细胞保留 CD4,丢失 CD8,成为 CD4+ 单阳性 T 细胞
- 如果 TCR 完全不能结合任何 MHC → 细胞凋亡(约 90% 的胸腺细胞在此阶段死亡)
阳性选择的意义很直观:一个 T 细胞如果不能识别 MHC 分子,那它在身体任何地方都无法"看到"抗原——因为所有抗原都是通过 MHC 呈递的。这类细胞毫无用处,直接淘汰。
阴性选择:清除"内鬼"
通过阳性选择的 T 细胞进入胸腺髓质,面临更严格的考验。髓质上皮细胞(mTEC)和树突状细胞表达大量自身抗原——AIRE 基因使得 mTEC 能"模拟"全身几乎所有组织的基因表达,给 T 细胞提供全面的"自我识别考试"。
- 如果 TCR 对自身抗原-MHC 复合物表现出高亲和力 → 认定为自身反应性,诱导凋亡
- 如果亲和力适中或低 → 通过筛选,被允许离开胸腺
💡 AIRE 基因突变会导致自身免疫性多内分泌病-念珠菌病-外胚层营养不良(APECED),患者会出现多种自身免疫病。这直观地证明了阴性选择在防止自身免疫中的核心作用。
最终,只有大约 2-5% 进入胸腺的前 T 细胞能通过双重选择,成为成熟的初始 T 细胞离开胸腺。其余 95% 以上的细胞在各个阶段因 TCR 重排失败、阳性选择不合格或阴性选择淘汰而凋亡。这些死亡细胞的碎片被胸腺巨噬细胞迅速清除——胸腺的日常运作伴随着大量的细胞死亡,这是一个看似"浪费"但实际上必要的质量控制过程。
一个值得关注的临床现象是胸腺萎缩。胸腺在青春期达到最大体积(约30-40克),之后逐渐被脂肪组织替代。到50岁时,功能性胸腺组织已不足青春期的10%。这意味着成年后新产生的初始 T 细胞越来越少,免疫系统越来越依赖已有的 T 细胞库和胸腺外途径(如肠道的 T 细胞发育)。这也是老年人免疫功能下降、对疫苗应答减弱的一个重要原因。近期研究发现,通过生长因子(如 IL-7)或激素调节,有可能在一定程度上恢复胸腺功能,但这仍是研究中的方向。
CD4+ 辅助性 T 细胞:免疫应答的"指挥官"
CD4+ T 细胞通过 TCR 识别 MHC II 类分子呈递的外源性抗原肽(如被吞噬的细菌蛋白)。一旦被激活,它们通过分泌细胞因子来"指挥"其他免疫细胞。
Th 细胞亚群的分化
初始 CD4+ T 细胞被激活后,根据局部细胞因子环境的不同,分化为功能各异的效应亚群:
| 亚群 | 关键细胞因子(诱导) | 产生的主要细胞因子 | 主要功能 | 相关疾病 |
|---|---|---|---|---|
| Th1 | IL-12, IFN-γ | IFN-γ, TNF-β | 激活巨噬细胞,清除细胞内病原体 | 迟发型超敏反应 |
| Th2 | IL-4 | IL-4, IL-5, IL-13 | 促进 B 细胞产生 IgE,抗寄生虫 | 过敏、哮喘 |
| Th17 | IL-6, TGF-β, IL-23 | IL-17, IL-22 | 招募中性粒细胞,黏膜防御 | 银屑病、自身免疫病 |
| Treg | TGF-β, IL-2 | IL-10, TGF-β | 抑制免疫反应,维持耐受 | Treg 缺陷→自身免疫病 |
| Tfh | IL-21 | IL-21, IL-4 | 辅助 B 细胞在生发中心成熟 | 体液免疫缺陷 |
亚群分化由转录因子驱动:Th1 由 T-bet,Th2 由 GATA3,Th17 由 RORγt,Treg 由 Foxp3 控制。这些转录因子不仅是"身份标签",还能通过正反馈巩固各自的亚群特征。
Th1/Th2 的平衡在临床中非常重要。在结核病中,Th1 应答(IFN-γ)对于激活巨噬细胞杀灭胞内结核分枝杆菌至关重要。IFN-γ 通路缺陷的患者(如 IL-12 或 IL-12R 基因突变)极易发生播散性非结核分枝杆菌感染。相反,在过敏性哮喘中,Th2 应答过度活跃(IL-4、IL-5、IL-13)导致嗜酸性粒细胞浸润气道、IgE 介导的过敏反应和黏液过度分泌。临床上,针对 IL-4Rα 的单克隆抗体(dupilumab)已经被批准用于治疗重症哮喘,原理就是阻断 Th2 通路。
Th17 细胞的发现相对较晚(2005年左右),但迅速成为研究热点。IL-17 的主要功能是招募中性粒细胞到黏膜表面,在抵御胞外细菌和真菌(尤其是念珠菌)中起重要作用。IL-17 通路缺陷的患者容易发生慢性黏膜皮肤念珠菌病。然而,Th17 过度活跃与多种自身免疫病有关——银屑病(牛皮癣)患者的皮损中 Th17 和 IL-17 水平显著升高,针对 IL-17A 的单克隆抗体(如 secukinumab)已被批准用于银屑病治疗。
Treg 细胞是免疫耐受的关键执行者。Foxp3 基因突变导致 IPEX 综合征(免疫失调、多内分泌病、肠病、X 连锁),患者表现为严重的自身免疫病、食物过敏和湿疹。这个疾病模型有力地证明了 Treg 在维持外周耐受中的核心作用。Treg 的抑制机制包括分泌抑制性细胞因子(IL-10、TGF-β)、消耗 IL-2(通过高亲和力 IL-2R CD25 竞争性结合 IL-2 使效应 T 细胞缺乏生长信号)、以及通过 CTLA-4 下调 APC 的 B7 表达。
⚠️ 注意:Th 细胞亚群的划分是简化模型。在体内,很多 Th 细胞表现出"混合"表型,能同时产生多种细胞因子。不要把亚群当作固定不变的"类型",而应理解为功能偏向。
CD8+ 细胞毒性 T 细胞:精准的"杀手"
CD8+ T 细胞(CTL)识别 MHC I 类分子呈递的内源性抗原肽。MHC I 存在于几乎所有有核细胞表面,所以 CTL 能监控全身每个细胞——如果某个细胞的 MHC I 上展示了"异常"肽段(比如病毒蛋白或肿瘤突变蛋白),CTL 就会出手。
CTL 的杀伤机制
CTL 有两套"行刑工具":
穿孔素-颗粒酶途径:
CTL 与靶细胞形成紧密接触(免疫突触),释放穿孔素和颗粒酶。穿孔素在靶细胞膜上打孔(像"开瓶器"),颗粒酶通过孔道进入靶细胞内,激活 caspase 通路,诱导靶细胞凋亡。整个过程高效而精准——CTL 杀完一个靶细胞后可以脱离,继续寻找下一个目标。
FasL-Fas 途径:
CTL 表面表达 Fas 配体(FasL),靶细胞表面表达 Fas 受体。FasL 与 Fas 结合后,直接激活靶细胞内的 caspase-8,启动凋亡程序。这条途径相对较慢,但不需要 CTL 颗粒的释放。
两条途径殊途同归——都是诱导靶细胞凋亡(程序性死亡),而非坏死。这很重要:凋亡的细胞会被巨噬细胞安静地吞噬清除,不会引发剧烈的炎症反应。如果靶细胞坏死,释放大量细胞内容物反而会造成组织损伤。
CTL 活化的过程也值得了解。初始 CD8+ T 细胞的活化通常需要辅助性 T 细胞的帮助("交叉致敏"模型):树突状细胞交叉呈递外源性抗原(通过 MHC I),然后 CD4+ T 细胞通过 CD40L-CD40 信号"授权" DC 激活 CD8+ T 细胞。然而,在强烈的病毒感染中,DC 表达的细胞因子(如 IL-12)可以提供足够的信号直接激活 CD8+ T 细胞而不需要 Th 细胞的帮助("辅助独立"活化)。
CTL 的战场效率
一个 CTL 可以连续杀伤多个靶细胞,因为它不会被"消耗掉"。研究表明,单个 CTL 在体外实验中可以连续杀死数十个靶细胞。在体内,CTL 主要在感染局部和淋巴结中执行杀伤任务,被病毒感染的细胞通常在 CTL 到达之前就已经被 NK 细胞"临时处理"了——CTL 的精确打击是后续的"精准清除"。
CTL 在体内的杀伤效率可以通过体外铬释放实验(chromium release assay)或更现代的流式细胞术方法来评估。在肿瘤免疫中,肿瘤浸润淋巴细胞(TIL)中的 CD8+ T 细胞比例和功能状态是预测免疫检查点抑制剂疗效的重要生物标志物——肿瘤中 TIL 越多、CTL 功能越活跃,免疫治疗的效果通常越好。
T 细胞活化的双信号机制
T 细胞活化不是 TCR 一碰到抗原就能触发的。它需要两个信号的同时存在:
- 信号 1(抗原信号):TCR 识别 APC 表面的 MHC-抗原肽复合物
- 信号 2(共刺激信号):APC 表面的 B7 分子(CD80/CD86)与 T 细胞表面的 CD28 结合
为什么需要双信号
如果只有信号 1 没有信号 2,T 细胞不会活化,反而进入**失能(anergy)**状态——一种长期的、不可逆的无反应状态。这个设计极其巧妙:
- 专业的 APC(如树突状细胞)在捕获病原体后会上调 B7 表达 → 能提供信号 2 → 正常激活 T 细胞
- 正常组织细胞即使因为某种原因表达了自身抗原-MHC 复合物,也不会表达 B7 → 只有信号 1 → T 细胞失能,不会攻击自身组织
这就是外周耐受的重要机制之一。肿瘤细胞也常常利用这一点——它们表达抗原但不表达 B7,使得 T 细胞对肿瘤抗原失能。免疫检查点抑制剂的策略之一就是人为提供或模拟信号 2,打破这种免疫逃逸。
🔬 延伸阅读:CTLA-4 是 CD28 的"竞争者",它与 B7 的亲和力远高于 CD28,但不传递激活信号反而传递抑制信号。活化的 T 细胞会上调 CTLA-4 表达,作为一种负反馈机制"自我刹车"。ipilimumab(抗 CTLA-4 抗体)通过阻断这种刹车来增强抗肿瘤免疫应答。
T 细胞的效应与记忆阶段
活化的效应 T 细胞并不是一直在"战斗"。它们有一个明确的"生命周期":被抗原激活后经历克隆扩增(2-3天),然后分化为效应细胞执行功能(约1-2周),最后绝大多数效应细胞凋亡,只有一小部分转化为记忆 T 细胞长期存活。
这个"先扩张后收缩"的动态非常重要。如果没有收缩期,大量效应 T 细胞持续存在会导致严重的免疫病理损伤——这在某些病毒感染中可以看到,比如登革病毒的二次感染中,预先存在的 T 细胞记忆可能导致过度活跃的免疫应答,造成毛细血管渗漏和休克。
效应 T 细胞向感染部位的迁移依赖于趋化因子受体和黏附分子的协同。活化的 T 细胞会上调特定趋化因子受体(如 CXCR3、CCR5),这些受体与感染部位炎症细胞产生的趋化因子(如 CXCL9、CXCL10)匹配,引导 T 细胞"归巢"到感染部位。
下一节:2.4 B 细胞发育与体液免疫——我们将追踪 B 细胞在骨髓中的发育、激活后的生发中心反应(亲和力成熟和类别转换),以及抗体发挥效应的四种主要机制。