3.1 抗原与抗体的结构与功能
3.1 抗原与抗体的结构与功能
本节摘要:抗原是免疫应答的起点,抗体是体液免疫的效应分子。本节深入解析抗原的表位分类(线性与构象)、免疫原性与抗原性的区别、半抗原现象,以及抗体 Y 形结构的功能分区和五类免疫球蛋白在分布与功能上的差异。
读前必看
阅读完本节,你应当能够:
- 区分抗原性和免疫原性,解释半抗原-载体效应
- 描述线性表位和构象表位的特征及识别差异
- 绘制抗体 Y 形结构并标注可变区、恒定区、CDR 和 Fc 段
- 比较五类免疫球蛋白在结构、分布和功能上的差异
- 解释抗体效应功能(中和、调理、补体激活、ADCC)的结构基础
抗原:免疫应答的"身份证"
免疫原性 vs 抗原性
这是免疫学中最容易混淆的一对概念。用一个类比来区分:
- 免疫原性 = 既能被识别,又能激发免疫反应的能力。相当于一张"通缉令",不仅描述了嫌疑人的特征,还动员了警力
- 抗原性 = 只能被识别和结合的能力。相当于一张"照片",能认出嫌疑人,但不会自动动员警力
所有免疫原都是抗原,但并非所有抗原都是免疫原。
半抗原(Hapten) 是只有抗原性而没有免疫原性的经典例子。青霉素(分子量约 300 Da)太小了,无法单独引发免疫应答。但当它与体内的蛋白质结合后,这个"半抗原-载体"复合物就获得了免疫原性,可以诱导针对青霉素特异性抗体的产生。这就是青霉素过敏的分子机制。类似的半抗原还包括镍(接触性皮炎)、某些化妆品成分和药物代谢产物。
半抗原-载体效应揭示了一个重要原理:T 细胞和 B 细胞识别的是同一个抗原分子的不同部分——T 细胞识别载体蛋白的肽段(MHC II 呈递),B 细胞识别半抗原的小分子表位。这种"分工"使得针对半抗原的抗体应答仍然需要 T 细胞辅助(TD 应答),尽管 T 细胞并不直接识别半抗原本身。
🔬 临床启示:药物过敏测试的本质就是检测患者体内是否已有针对药物(半抗原)的抗体。皮肤点刺试验用的是完整药物,如果患者体内有特异性 IgE 结合在肥大细胞上,药物加入后会引发局部脱颗粒反应(红肿)。
表位:免疫系统识别的"最小单位"
抗原分子通常很大,但免疫系统并不识别整个分子,而是聚焦于其表面的微小区域——表位(epitope)。
线性表位由连续的氨基酸序列构成,一段 8-12 个氨基酸的短肽就足以被 TCR 识别。线性表位的优点是即使蛋白质变性(展开),表位仍然存在。
构象表位由蛋白质折叠后在三维空间中凑到一起的不连续氨基酸残基构成。B 细胞抗体主要识别构象表位——这意味着抗体的结合依赖于蛋白质的天然构象。
这对疫苗设计有直接影响:如果目标抗体的保护表位是构象表位,那么疫苗抗原必须保持正确的三维折叠。这也是为什么很多亚单位疫苗需要精密的蛋白质工程技术来确保抗原构象的正确性。mRNA 疫苗的一个优势是,抗原在宿主细胞内翻译后可以正确折叠并经历翻译后修饰(如糖基化),因此产生的抗原构象更接近天然状态。
超抗原:打破常规识别的特殊抗原
有一类特殊的抗原称为超抗原(Superantigen, SAg),如金黄色葡萄球菌的肠毒素(SE)和中毒性休克综合征毒素-1(TSST-1)。超抗原能绕过正常的抗原加工和呈递过程,直接与 TCR 的 Vβ 区域和 MHC II 分子的外侧结合,同时交联大量 T 细胞——最多可激活体内 5-20% 的 T 细胞(正常抗原只能激活 0.01% 以下)。
这种大规模的 T 细胞激活导致细胞因子风暴——大量 IFN-γ、TNF-α 和 IL-2 的释放引起高热、低血压和多器官功能衰竭。这就是中毒性休克综合征的发病机制。超抗原不经过正常加工就能激活 T 细胞,因此其效应极其剧烈但缺乏特异性。
抗原的分类维度
抗原可以从多个维度分类:
- 按来源:外源性(病原体、过敏原)、内源性(自身蛋白、肿瘤突变蛋白)、自身抗原(正常自身成分)
- 按 T 细胞依赖性:TD 抗原(蛋白质,需要 T 细胞辅助)、TI-1(LPS 等有丝分裂原)、TI-2(多糖等重复结构抗原)
- 按化学本质:蛋白质(最强免疫原)、多糖、脂类、核酸
蛋白质之所以是最强免疫原,是因为它们具有最复杂的化学结构和最多样化的表位。核酸免疫原性较弱,但在某些情况下(如系统性红斑狼疮中针对 DNA 的自身抗体),核酸可以成为免疫靶标。脂类和糖脂(如神经节苷脂)通常需要与蛋白质结合才能有效激发免疫应答,但它们是 NKT 细胞通过 CD1 分子识别的重要靶标。
影响免疫原性的因素
决定一个物质免疫原性强弱的因素包括:
- 分子量:通常大于 10 kDa 才有较好的免疫原性。分子越大,表位越多,被 B 细胞和 T 细胞同时识别的概率越高
- 化学复杂性:由多种氨基酸组成的蛋白质比简单重复的多糖免疫原性强
- 异物性:与宿主差异越大,免疫原性越强。种属差异越大(如鸡蛋白对人的免疫原性 > 猪蛋白对人的免疫原性)
- 剂量和给药途径:皮下注射通常比口服免疫原性强(口服抗原容易被诱导耐受),适当的抗原剂量能激发有效应答但过高剂量可能导致耐受
抗体:Y 形的精确制导武器
基本结构
每个抗体分子由四条肽链组成:两条相同的重链(H chain)和两条相同的轻链(L chain),通过二硫键连接成经典的 Y 形结构。
抗体结构速记: Fab Fab / \ / \ VL---CL VH---CH1 VL---CL VH---CH1 \ | / \ | / 铰链区 \ | / CH2---CH2 ← Fc 段(效应功能) CH3---CH3
Fab 段(抗原结合段):包含完整的轻链 + 重链的可变区和恒定区 1(CH1)。每个 Fab 段末端有一个抗原结合位点。IgG 有 2 个结合位点,IgM 有 10 个。
Fc 段(可结晶段):由重链的 CH2 和 CH3(IgG/IgA/IgD)或 CH3 和 CH4(IgM/IgE)组成。Fc 段不参与抗原结合,而是介导效应功能——与 Fc 受体结合(调理、ADCC)、与补体 C1q 结合(激活经典途径)、通过胎盘(IgG)等。同一类 IgG 的 Fc 段在不同个体间是完全相同的(因为不经过 V(D)J 重排),因此不同特异性抗体之间的差异仅在于 Fab 段的可变区。
互补决定区(CDR):在可变区内部,有三个高变区(CDR1、CDR2、CDR3),直接构成抗原结合面。CDR3 变异最大,是抗原特异性的主要决定因素。TCR 的 CDR3 长度和序列是评价 T 细胞克隆多样性的常用指标——通过高通量测序分析外周血 TCR 的 CDR3 谱,可以评估一个人的免疫多样性(T 细胞库谱分析,T cell receptor repertoire profiling),这在造血干细胞移植后的免疫重建评估和肿瘤免疫监测中有重要应用。
五类免疫球蛋白
五类 Ig 的重链恒定区不同,导致它们在结构、分布和功能上各有特色:
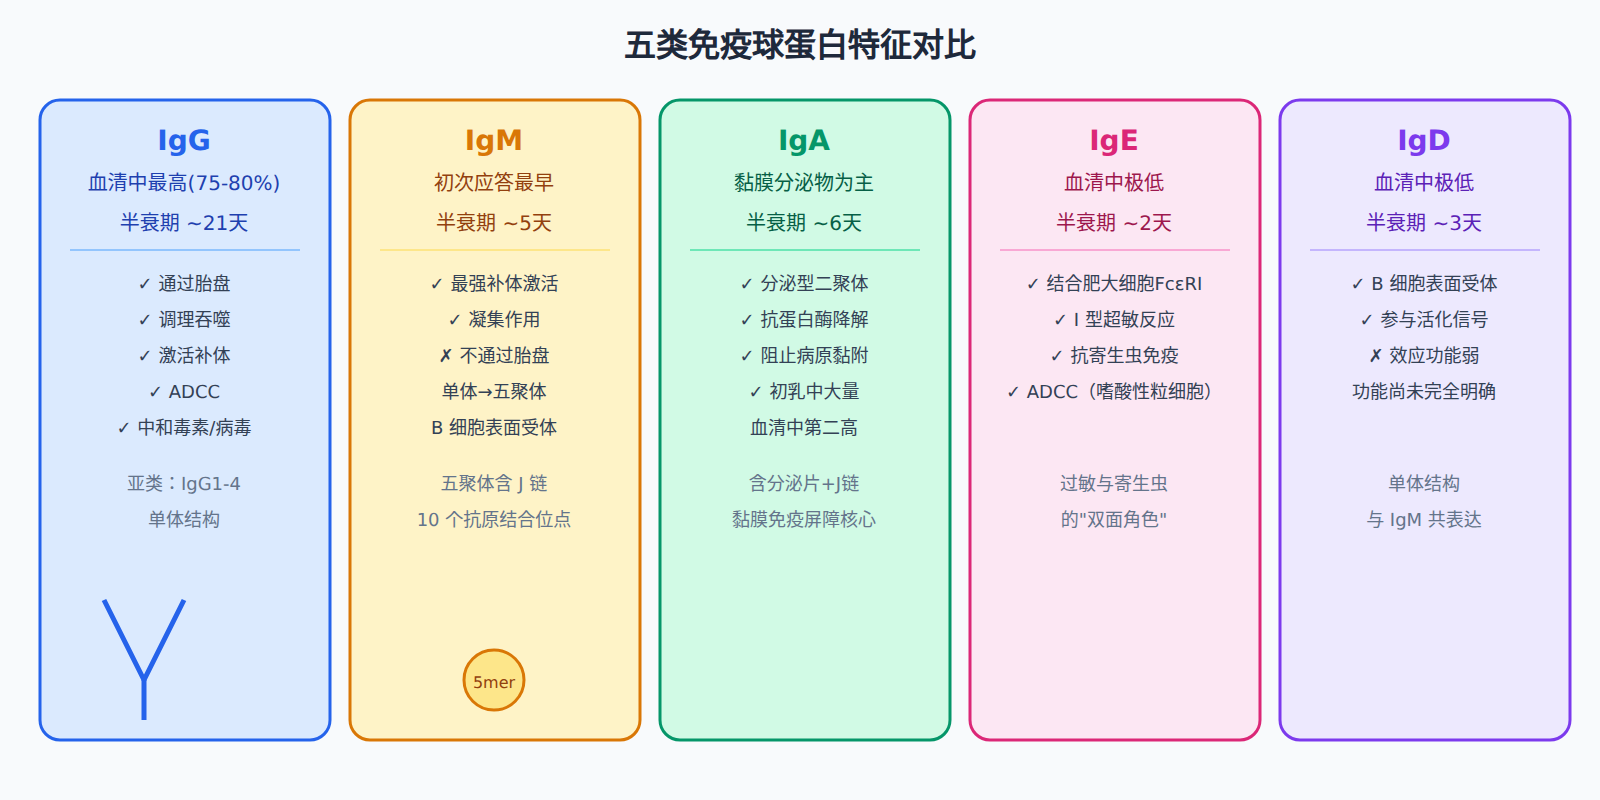
抗体的效应功能与结构基础
抗体不仅能结合抗原,其 Fc 段还能"召集"其他免疫分子和细胞来共同清除威胁。不同 Ig 类别的 Fc 段差异直接决定了它们的效应功能:
- 补体结合位点:IgG(IgG1、IgG3)和 IgM 的 CH2/CH3 区有 C1q 结合位点。IgM 的五聚体结构使得它成为最有效的补体激活剂——一个 IgM 分子结合抗原后,其 5 个 Fc 段能高效排列,为 C1q 提供最佳的结合构象
- Fc 受体结合:不同 Ig 类别结合不同的 Fc 受体。IgG 结合 FcγR(表达于巨噬细胞、NK 细胞),IgE 结合 FcεRI(表达于肥大细胞、嗜碱性粒细胞),IgA 结合 FcαR
- 胎盘转运:只有 IgG 能通过胎盘。这是通过胎盘滋养层细胞上的 FcRn(neonatal Fc receptor)实现的——FcRn 在酸性 pH 条件下结合 IgG,在中性 pH 条件下释放,完成了 IgG 从母体到胎儿的"转运接力"
💡 FcRn 不仅负责 IgG 的胎盘转运,还负责延长 IgG 在血液中的半衰期。IgG 被内吞后,如果通过 FcRn 回收(而非进入溶酶体降解),就能"续命"。这就是为什么 IgG 的半衰期长达 21 天。工程化抗体延长半衰期的策略之一就是增强 Fc 与 FcRn 的结合。
单克隆抗体与多克隆抗体
理解了抗体的结构基础后,有必要区分两个重要概念。多克隆抗体是多个 B 细胞克隆针对同一抗原的不同表位产生的抗体混合物。天然免疫应答和传统抗血清都是多克隆的——它们能识别抗原的多个表位,提供更全面的保护,但批次间一致性差,不适合作为标准化药物。
单克隆抗体(mAb)是由单个 B 细胞克隆产生的、针对单一表位的均一抗体。1975年 Köhler 和 Milstein 发明的杂交瘤技术使单克隆抗体的规模化生产成为可能,他们因此获得了1984年诺贝尔奖。现代抗体药物几乎全部是单克隆抗体。
单克隆抗体的发展经历了几个技术代际:鼠源抗体→嵌合抗体(鼠可变区+人恒定区)→人源化抗体(CDR 移植)→全人源抗体(噬菌体展示或转基因小鼠)。每一步进化都降低了抗体药物在人体内的免疫原性(即减少患者产生抗药物抗体),提高了治疗的安全性和有效性。
抗体工程的临床应用
基于对抗体结构的深入理解,科学家已经发展出多种抗体工程技术:
- 双特异性抗体:一个抗体分子同时结合两种不同的抗原。例如 blinatumomab 同时结合 T 细胞的 CD3 和肿瘤细胞的 CD19,将 T 细胞"拉到"肿瘤细胞旁边进行杀伤
- 抗体-药物偶联物(ADC):抗体作为"导航器"携带细胞毒药物到达肿瘤细胞表面,被内吞后释放药物杀死肿瘤细胞。这是目前抗体药物研发的热门方向
- Fc 工程化:通过改变 Fc 段的氨基酸序列来增强或减弱效应功能。增强型 Fc 能提高 ADCC 和补体激活效率,沉默型 Fc 则消除效应功能(只保留中和作用)
这些技术的共同基础都是对抗体 Y 形结构的精确理解——Fab 负责靶向,Fc 负责效应,通过分别改造这两个区域来满足不同的临床需求。
免疫球蛋白的基因结构
从遗传学角度看,免疫球蛋白重链基因座位于 14 号染色体,κ 轻链位于 2 号染色体,λ 轻链位于 22 号染色体。重链恒定区基因按 μ-δ-γ3-γ1-α1-γ2-γ4-ε-α2 的顺序排列在染色体上,每个恒定区基因对应一类或一个亚类的重链。抗体类别转换的本质就是通过 DNA 重组跳过上游的恒定区基因,直接使用下游的恒定区基因——这也解释了为什么类别转换通常是"单向"的(从 IgM 向下游"切换")。
理解基因结构有助于理解 B 细胞 malignancies 的分类。多发性骨髓瘤患者的恶性浆细胞通常分泌单一类型的免疫球蛋白(M 蛋白),检测血清蛋白电泳和免疫固定电泳可以发现这种单克隆峰。重链和轻链的不平衡生产(如游离轻链过多)可以通过血清游离轻链检测来评估,这对多发性骨髓瘤的诊断和疗效监测意义重大。
下一节:3.2 细胞因子与信号转导——我们将解析免疫细胞之间的"语言系统"和 JAK-STAT 信号通路。