4.2 T细胞介导的细胞免疫
4.2 T 细胞介导的细胞免疫
本节摘要:细胞免疫是 T 淋巴细胞介导的适应性免疫应答,核心在于 TCR 识别 MHC 呈递的抗原肽。本节从 T 细胞活化的双信号机制出发,展开 CD4+ Th 细胞的分化指挥体系,以及 CD8+ CTL 的克隆扩增和杀伤执行。
先说结论
阅读完本节,你应当能够:
- 描述 T 细胞活化的双信号机制(TCR 信号 + 共刺激信号)
- 解释 naive T 细胞活化、克隆扩增和效应分化的三个阶段
- 分析 Th1/Th2/Th17/Treg 亚群的诱导条件和功能差异
- 描述 CTL 的体外杀伤实验原理(铬释放实验)
- 阐述记忆 T 细胞的维持机制和 tissue-resident memory
T 细胞活化:双信号的门控机制
初始 T 细胞在次级淋巴器官(淋巴结、脾脏)中与抗原呈递细胞相遇。活化需要严格的双信号:
信号 1:TCR 识别 APC 表面的 MHC-抗原肽复合物。这是特异性识别,决定了"哪个 T 细胞被激活"。
信号 2:APC 表面的 B7 分子(CD80/CD86)与 T 细胞表面的 CD28 结合。这是共刺激信号,决定了"是否允许激活"。
如果只有信号 1 而没有信号 2,T 细胞不仅不会活化,还会进入失能状态。这个"安全锁"设计防止了 T 细胞对无害抗原或自身抗原的不当反应。
APC 的激活状态决定信号 2 的提供
- 未被感染的 DC:B7 低表达 → 不能提供信号 2 → T 细胞失能
- 被病原体激活的 DC:通过 PRR 识别 PAMPs 后上调 B7 → 提供信号 2 → T 细胞正常活化
- 肿瘤细胞:表达抗原但缺乏 B7 → T 细胞失能 → 肿瘤免疫逃逸
💡 这就是免疫检查点抑制剂(抗 CTLA-4、抗 PD-1)的核心逻辑:通过人为阻断抑制信号(相当于增强信号 2),来恢复 T 细胞对肿瘤抗原的应答能力。
CD4+ Th 细胞:分化与指挥
初始 CD4+ T 细胞活化后首先大量增殖(克隆扩增),然后在局部细胞因子环境的引导下分化为不同效应亚群。
细胞因子环境决定分化方向
Th 细胞分化不是随机过程,而是由 APC 和固有免疫细胞提供的细胞因子环境"指导"的:
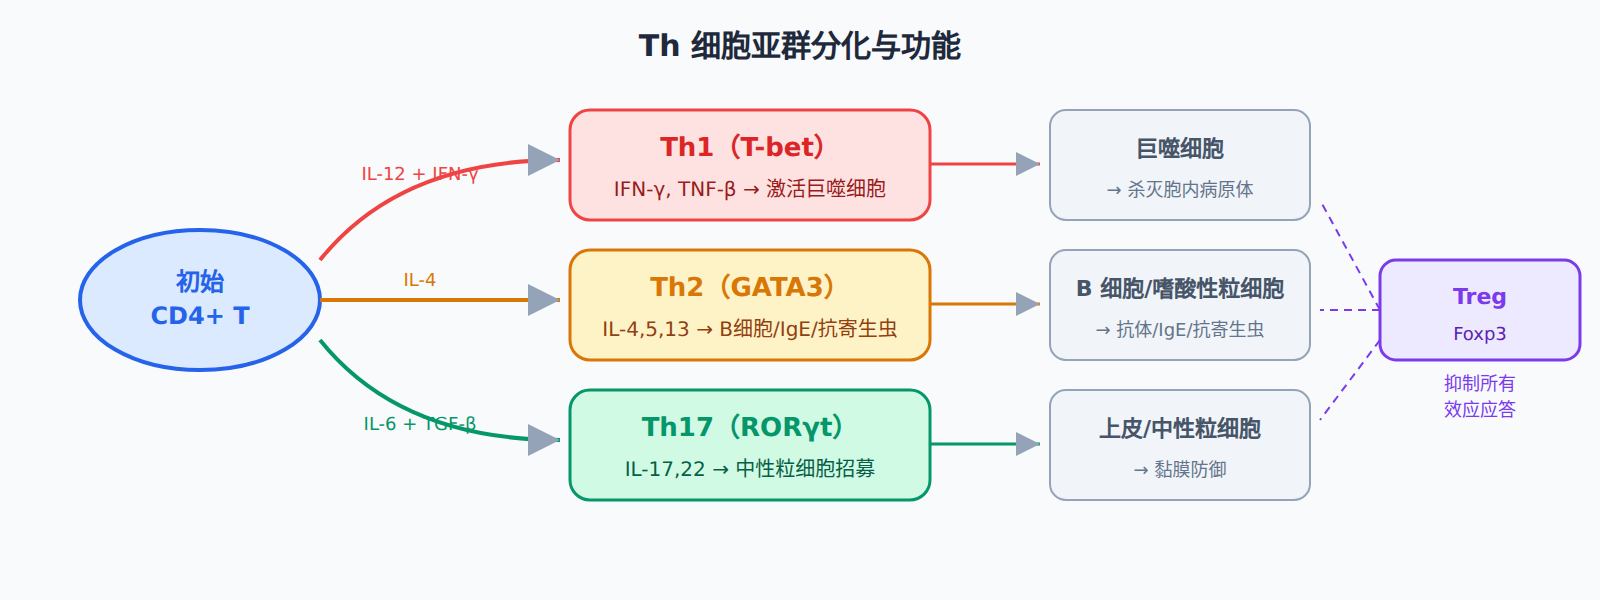
- 病原体类型→ 固有免疫反应模式 → 特定细胞因子组合 → Th 细胞向相应亚群分化
比如细胞内病原体(病毒、胞内菌)会诱导固有免疫产生 IL-12,IL-12 驱动 Th1 分化;寄生虫会诱导 IL-4,IL-4 驱动 Th2 分化。这个设计确保了 Th 应答的"类型"与威胁的性质匹配。
Th 亚群的功能执行
分化完成后,各亚群通过分泌特异性细胞因子来执行"指挥"功能:
Th1:分泌 IFN-γ 和 TNF-β。IFN-γ 激活巨噬细胞——将巨噬细胞从"静息的吞噬者"变成"活化的杀菌机器",上调其产生活性氧和 NO 的能力,增强对胞内病原体的清除。Th1 还能帮助 CTL 的活化。
Th2:分泌 IL-4、IL-5、IL-13。IL-4 促进 B 细胞增殖和类别转换(IgE),IL-5 招募嗜酸性粒细胞,IL-13 促进黏液分泌和肠道蠕动——这套"武器"专门对付大型寄生虫(如蠕虫)。
Th17:分泌 IL-17 和 IL-22。IL-17 强力招募中性粒细胞到黏膜部位,在抵御细胞外细菌和真菌感染中起核心作用。但 Th17 的过度活化也与银屑病、多发性硬化等自身免疫病密切相关。
Treg:表达转录因子 Foxp3,分泌 IL-10 和 TGF-β,通过多种机制抑制效应 T 细胞的活化和功能。Treg 是维持免疫耐受和防止自身免疫的"维和部队"。
CD8+ CTL:克隆扩增与杀伤执行
从激活到杀伤
CD8+ T 细胞的活化需要两个条件:识别 MHC I-抗原肽(信号 1)和共刺激信号(信号 2)。但 CTL 通常还需要 Th1 细胞的"授权"——CD4+ Th 细胞通过 CD40-CD40L 信号帮助 DC "成熟",使其能更有效地激活 CD8+ T 细胞。
活化的 CTL 进入快速克隆扩增期,在数天内从少量特异性克隆扩增到数百万个效应细胞。扩增的同时获得杀伤能力:
- 穿孔素和颗粒酶的预存颗粒大量合成
- FasL 表达上调
- 分泌 IFN-γ 和 TNF-α 增强局部免疫应答
CTL 的战斗效率
CTL 通过免疫突触与靶细胞形成紧密接触(距离约 15 nm),在突触处定向释放穿孔素和颗粒酶。穿孔素在靶细胞膜上形成孔道,颗粒酶通过孔道进入靶细胞激活 caspase 级联。
关键特征:CTL 本身不受穿孔素-颗粒酶的影响。杀伤过程迅速(几分钟内),CTL 脱离后可继续攻击下一个靶细胞。这种"游击战"式的杀伤策略极其高效。
T 细胞免疫应答的时空动态
T 细胞免疫应答在空间上涉及多个解剖部位:外周组织(抗原捕获和效应执行)、淋巴管(DC 迁移通道)、淋巴结(T 细胞活化)和血液循环(效应 T 细胞归巢)。
在病毒感染中,CTL 是清除感染细胞的核心力量。以流感为例:呼吸道上皮细胞被感染后,cDC 将病毒抗原携带到咽后淋巴结,激活 CD8+ T 细胞。活化的 CTL 到达肺部,识别 MHC I 呈递的病毒肽段杀伤感染细胞。这个过程需要 5-7 天——也就是症状最严重的时期。清除感染细胞后,上皮开始再生修复。
在胞内细菌感染中,Th1 应答是关键。结核分枝杆菌在巨噬细胞内存活,逃避溶酶体杀伤。Th1 分泌的 IFN-γ 激活巨噬细胞增强杀菌能力。如果 Th1 应答不足(如 HIV 导致 CD4+ T 细胞耗竭),结核就从潜伏转为活动。临床上,IFN-γ 释放试验(IGRA)通过检测结核特异性 T 细胞在体外接触结核抗原后释放 IFN-γ 的能力来辅助诊断结核感染——比传统的结核菌素皮试(PPD)具有更高的特异性。
免疫记忆方面,效应 T 细胞在清除病原体后大部分凋亡,少数转化为 T_CM、T_EM 和 T_RM 三个记忆亚群。组织驻留记忆 T 细胞(T_RM)是近年来最受关注的记忆亚群——它们不参与血液循环,而是长期定居在先前感染过的组织(如皮肤、肺、肠道),在病原体再次入侵的入口处第一时间做出反应。黏膜疫苗接种(如鼻喷流感疫苗)的一个重要优势就是能诱导大量 T_RM,在病原体入侵的门户处建立"局部预警系统"。
T 细胞免疫的实验检测方法
T 细胞免疫功能的评估是免疫学临床和研究中常见的需求。主要方法包括:
流式细胞术分析:通过多色抗体组合(如 CD3、CD4、CD8、CD45RA、CCR7)区分初始、效应和记忆 T 细胞亚群。CD4/CD8 比值正常约为 1.5-2.0,HIV 感染时倒置(<1.0)。活化标志物(CD38、HLA-DR)的检测可以评估 T 细胞的免疫活化程度——在急性病毒感染中升高,在有效抗病毒治疗后下降。
ELISPOT 和细胞内细胞因子染色(ICS):通过检测抗原特异性 T 细胞分泌的细胞因子(IFN-γ、IL-2、TNF-α)来评估 T 细胞的功能。ELISPOT 可以定量每百万 PBMC 中抗原特异性 T 细胞的频率,灵敏度约为 1/10^4-1/10^5。ICS 通过流式细胞术同时检测多个细胞因子,可以评估 T 细胞的多功能性(同时分泌多种细胞因子的能力越强,免疫功能越好)。
混合淋巴细胞反应(MLR):将供体和受体的淋巴细胞共培养,通过 3H-胸腺嘧啶掺入或 CFSE 稀释来评估 T 细胞的同种异体反应性。MLR 是评估移植配型兼容性和免疫抑制效果的体外方法,虽然临床使用已减少,但在移植免疫研究中仍有价值。
T 细胞活化信号的分子细节:T 细胞的 TCR 信号转导是一个极其精密的过程。TCR 识别 MHC-抗原肽后,CD3 复合体(包含 CD3γ、CD3δ、CD3ε 和 ζ 链)的 ITAM(免疫受体酪氨酸活化基序)被 Lck 磷酸化。磷酸化的 ITAM 募集 ZAP-70 激酶,ZAP-70 激活 LAT 和 SLP-76 信号体,最终激活 PLCγ1、Ras-MAPK 和 NF-κB 三条信号分支。这个"信号级联"确保了 T 细胞活化的精确性和强度可调性。
T 细胞与抗原呈递的 MHC 限制性
T 细胞的 TCR 不是直接识别游离抗原,而是识别 APC 表面 MHC 分子呈递的抗原肽。CD4+ T 细胞识别 MHC II 类分子呈递的外源性抗原(被 APC 吞噬加工的抗原),CD8+ T 细胞识别 MHC I 类分子呈递的内源性抗原(细胞自身合成的蛋白,如病毒蛋白或肿瘤突变蛋白)。
这种 MHC 限制性的发现(Doherty 和 Zinkernagel,1996 年诺贝尔奖)是免疫学的里程碑。在实验中验证 MHC 限制性的经典方法是:只有当靶细胞与效应 T 细胞共享至少一个 MHC 等位基因时,CTL 才能识别并杀伤靶细胞。
交叉呈递:DC 有一项特殊能力——将外源性抗原通过 MHC I 途径呈递给 CD8+ T 细胞,这就是交叉呈递。这一机制使得 CD8+ T 细胞能识别被 APC 吞噬的细胞外病原体(如被吞噬的肿瘤细胞碎片或病毒颗粒),不需要病原体直接感染 APC。交叉呈递在抗肿瘤免疫中尤为重要——DC 可以吞噬死亡肿瘤细胞的碎片,通过 MHC I 将肿瘤抗原呈递给 CTL,激活抗肿瘤 T 细胞应答。
T 细胞免疫的实验检测方法
T 细胞免疫功能的评估是免疫学临床和研究中常见的需求。主要方法包括:
TCR 库谱分析:通过高通量测序分析 TCR β 链 CDR3 区域的多样性。免疫多样性指数(如 Shannon 指数、Simpson 指数)可以量化 TCR 库的多样性和克隆扩增程度。在造血干细胞移植后,T 细胞库的重建是一个渐进过程——早期以寡克隆为主,数月到数年后逐渐恢复多克隆性。
下一节:4.3 B 细胞介导的体液免疫应答——从 B 细胞激活到生发中心反应的完整过程。