6.2 基因工程与技术
6.2 基因工程与技术
本节摘要:基因工程是把遗传物质当材料来加工的技术,核心动作就是"剪、拼、搬、选"。它从 1970 年代重组 DNA 的剪刀加浆糊起步,到今天 CRISPR 已经能像文字编辑器一样精准改字母。这条演进之路,也是人类从"读懂生命"走向"改写生命"的缩影。本节按时间顺序讲三条主线:重组 DNA 怎么奠基、转基因怎么把基因搬进别的物种、CRISPR 怎么把"搬基因"升级成"改基因",最后说说编辑之后要做的筛选、验证与脱靶检修。
读前必看(上)
阅读完本节,你应当能够:
- 复述重组 DNA 技术的关键步骤:获取、连接、导入、筛选。
- 说清限制性内切酶和 DNA 连接酶在"剪拼"里各扮演什么角色。
- 解释 CRISPR 的识别—切割—修复三部曲,以及 NHEJ 和 HDR 两条修复通路的差别。
- 区分"转基因"与"基因编辑"在改动方式上的不同。
- 列举基因工程在医药和农业中的一到两个真实应用,并说出脱靶与安全的关切。
一、从剪刀和浆糊开始:重组 DNA 的诞生
基因工程的故事,是从一把剪刀和一管浆糊开始的。1970 年代,博耶和科恩做了一件当时看起来很冒失的事:把一段外源 DNA 塞进质粒,再把这个质粒送进大肠杆菌,让它稳定复制、表达。这就是重组 DNA 技术,它第一次把"生物体是可编程的、DNA 是可编辑的材料"这个念头变成了可操作的手艺。
这套手艺靠两件工具干活。限制性内切酶是剪刀,它认得特定的回文序列,在固定位置切开 DNA,留下粘性末端或平末端;DNA 连接酶是浆糊,把不同来源的片段共价接起来。载体则像个搬运工,它得有自主复制起点,让自己在宿主里能复制;得有抗生素抗性基因当选择标记,方便后面把"装对了"的细胞挑出来;还得有一段多克隆位点,塞满了各种酶切位点,让外源片段能定向插进去。有了这三样,一个外源基因就能被剪下来、拼进载体、搬进细胞、再被挑出来。今天几乎所有重组蛋白药物——人胰岛素、生长激素、乙肝疫苗——都还站在这个平台上。它笨,但可靠,四十年了还没被淘汰。限制性内切酶的名字有讲究,通常取自它来源的细菌,比如 EcoRI 里的 Eco 来自大肠杆菌。它切出的末端有两种:粘性末端像拉链一样互补、容易再配对,平末端则齐刷刷的、连接效率低一些但更通用。1970 年代这批技术刚冒头时,科学界自己先紧张了——把外源基因塞进细菌,会不会造出什么收不住的东西?1975 年的阿西洛马会议就是为此开的,定下了最早的一套生物安全自律规则。这个细节提醒我们,基因工程的伦理焦虑不是今天 CRISPR 才有的,从第一把剪刀落地那天就跟着来了。
二、把基因搬进别的物种:转基因
重组 DNA 的下一步,是把基因真正搬进一个活生生的动植物里,让它成为这个物种性状的一部分,这就是转基因。思路上它和重组 DNA 一脉相承,区别在于目标从"让一个细胞表达"升级到"让一个多细胞生物稳定携带"。
最经典的案例是人胰岛素。过去糖尿病人的胰岛素从猪、牛的胰腺里提,产量有限、还容易引起免疫反应。科学家把人胰岛素的编码序列接上合适的启动子,塞进大肠杆菌或酵母,让微生物当工厂批量生产。这头一步看似简单,实际要处理不少工程细节:原核生物不会给真核信使 RNA 加帽加尾,也没有内含子剪接,所以得用反向转录得到的 cDNA 而不是基因组序列;密码子偏好也不一样,一个在人里常见的密码子,在细菌里可能对应稀少的转运 RNA,导致翻译卡壳。这些都要在设计时想清楚。
在农业上,转基因作物把抗虫、抗除草剂的基因搬进大豆、玉米、棉花,改变了全球的种植格局。转基因和后面要讲的基因编辑,最大的区别就在这:转基因往往"加进去"一段外源 DNA,而基因编辑更偏向"改原位"——只动生物体自己已有的序列,不一定要引入外来片段。这个区别在监管上影响很大,后面会再回来。农业上还有个常被提起的例子是黄金大米——科学家把合成胡萝卜素前体的基因搬进水稻胚乳,让大米呈现淡黄色,试图缓解以大米为主食地区维生素 A 缺乏的问题。它把"用转基因解决营养问题"这个念头推到了台前,也顺带引爆了持续多年的安全与伦理争论。争论未必有标准答案,但它提醒我们:一项基因工程能不能落地,常常不取决于技术上做不做得成,而取决于社会愿不愿意接受。
把基因搬进真核生物,手段就更多样了。做转基因小鼠常用原核注射,把外源 DNA 直接打进受精卵的前核,让它随机整合进基因组;做转基因植物则常借农杆菌当"搬运工",它天生会把一段 DNA 送进植物细胞,科学家就把要转移的基因装进它那套递送系统里。表达系统本身也要挑:大肠杆菌便宜、长得快,但不会做糖基化这类修饰,复杂的真核蛋白常常得换到酵母、昆虫细胞甚至哺乳动物细胞里才肯正确折叠。同样是"生产一个蛋白",选错宿主,产物可能是一坨没活性的沉淀。
三、从"搬基因"到"改字母":CRISPR 与精准编辑
如果重组 DNA 是搬家具,CRISPR 就是改墙上的字。这套系统的身世很有意思:1987 年日本学者在大肠杆菌基因组里看到一串奇怪的重复序列,中间夹着来历不明的间隔片段,当时没人知道它干嘛。后来才搞明白,这些间隔片段是细菌抄下来的"通缉令"——记录着它遇到过的噬菌体的 DNA 片段。细菌靠它认出来犯之敌,再用 Cas 核酸酶把敌人剪掉。这本质上是细菌的适应性免疫系统。
2012 年,杜德纳和沙尔庞捷把这套系统简化了:把两条 RNA 合并成一条单链向导 RNA,用它把 Cas9 领到任意目标位点。从那以后,编辑基因只需要改向导 RNA 上那二十来个碱基,Cas9 就会像导航一样精准落位,切开双链。切完之后,细胞自己的修复机器接管:如果走易错的 NHEJ 通路,往往补出几个碱基的插入缺失,造成移码,基因就此报废;如果旁边正好供着一段模板,就走高保真的 HDR 通路,实现定点替换或插入。这两条路的分叉,决定了你是敲除还是敲入。2020 年,这项发现拿了诺贝尔化学奖。中间还有几个关键节点值得记住:2007 年一家酸奶公司遇上噬菌体污染,科学家证实细菌确实会偷一段噬菌体序列当免疫记忆,这一下把 CRISPR 的假说坐实了。Cas9 也不是随便切,它要求目标序列旁边紧跟着一小段叫 PAM 的短序列,最常见的是 NGG,没有 PAM,Cas9 不认账。这个约束既是安全阀,也是设计向导 RNA 时必须绕开的硬条件。
四、编辑之后:筛选、验证与脱靶检修
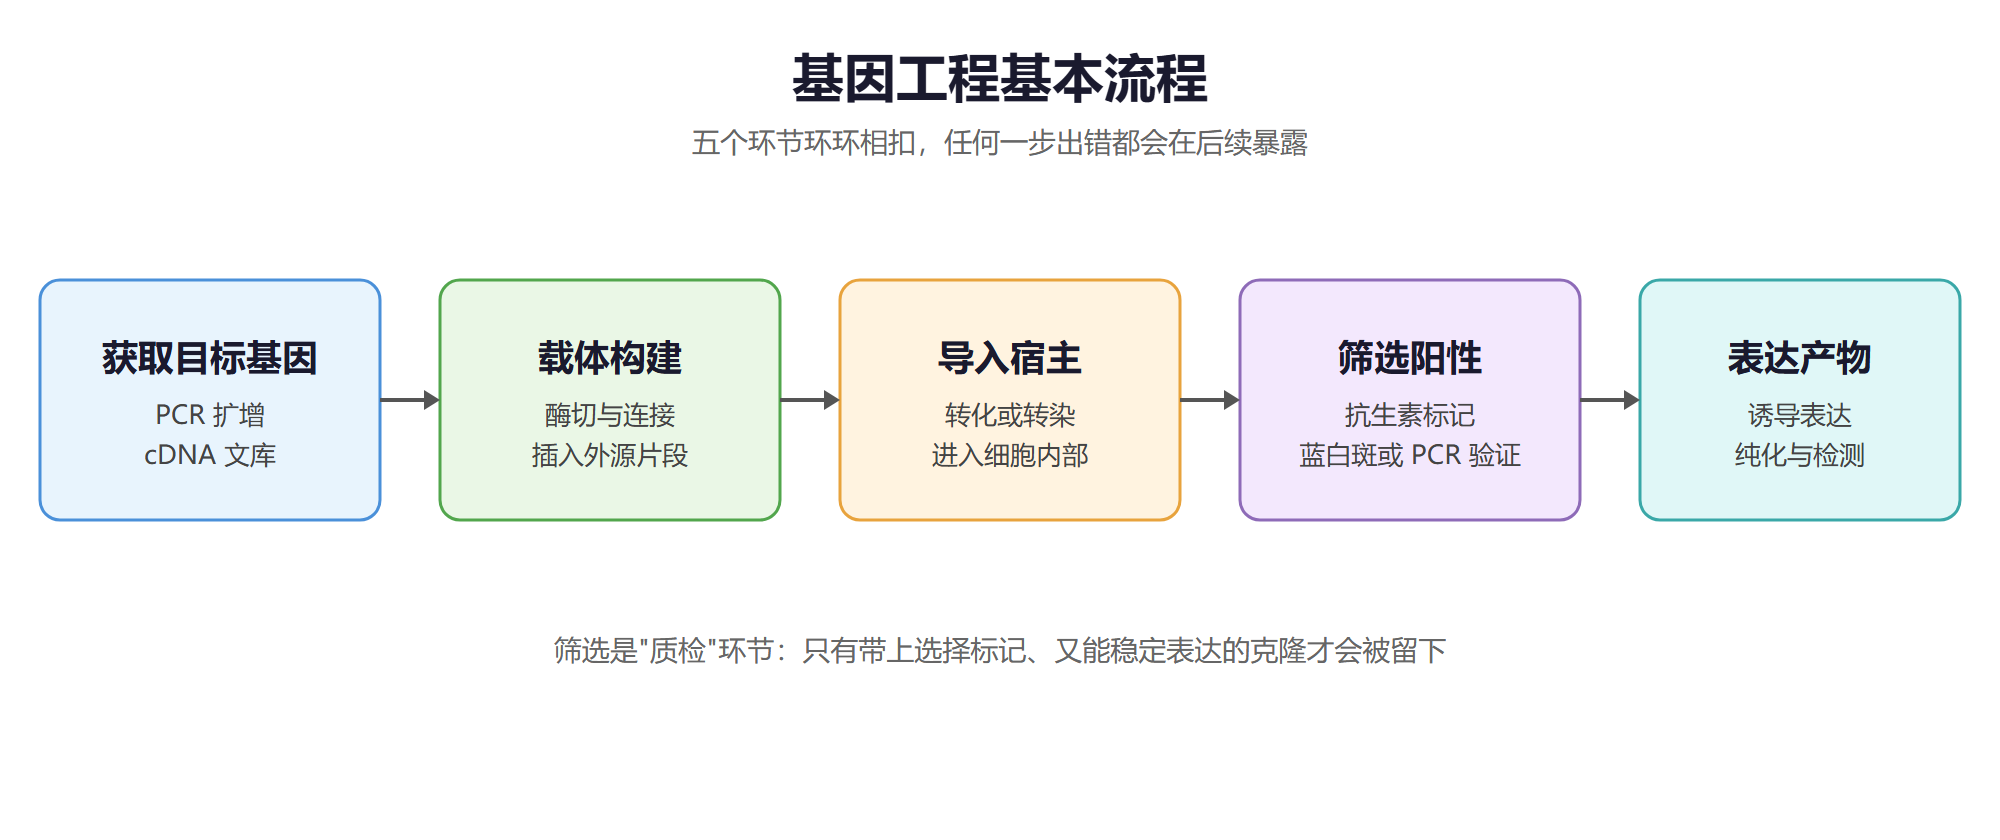
切割只是第一步,真正的功夫在后面的筛选和验证。就像盖房子,框架起来之后,真正磨人的是验收。基因工程里,筛选靠的是选择标记——带上抗性基因的细胞在抗生素里活下来,没带上的死掉,一筛一大片;再配合 PCR、测序或蓝白斑,把"确实改对位置"的克隆单独挑出来。
验证分两头。一头是看目标位点改得对不对,另一头是看别的地方有没有被误伤,也就是脱靶。脱靶不是"有或没有",而是"多少":向导 RNA 可能和基因组里相似但不完全一样的序列错配,导致 Cas9 在别处也切一刀。为了压住脱靶,人们开发了高保真 Cas9 变体、截短的向导 RNA,还发展出碱基编辑和先导编辑这类不切双链就能改碱基的新工具。碱基编辑直接把一种碱基换成另一种,先导编辑则用一段"写好的模板"引导修改,二者都不太依赖 HDR,副作用更小。不过它们也有自己的边界——能改的碱基类型有限,不是万能。验证脱靶这件事,方法也在一路升级:早期只能靠生物信息学预测"哪些地方长得像目标位点",再一个个去测;后来出现了全基因组测序、GUIDE-seq 这类更系统的手段,能把 Cas9 在基因组上留下的痕迹全局扫一遍。工程的下游也不只有实验室——CAR-T 疗法把嵌合抗原受体基因装进病人自己的 T 细胞,再输回去追杀肿瘤,这是基因工程在肿瘤治疗里最出圈的一次落地。而基因驱动这种能让一个编辑在野生种群中自我扩散的设计,则把安全问题从"一间实验室"放大到了"整个生态系统",这也是它至今被管得最严的原因。
| 工具 | 年代 | 核心动作 | 优点 | 局限 |
|---|---|---|---|---|
| 限制性内切酶 | 1970 年代 | 识别特定序列并切断 DNA | 定点、可靠 | 只能剪已知位点 |
| 重组 DNA | 1970 年代 | 剪贴外源片段进载体 | 可大量复制表达 | 不能改原位基因组 |
| CRISPR-Cas9 | 2012 年 | 向导 RNA 引导精准切割 | 可编程、高效 | 可能脱靶 |
| 碱基编辑 | 2016 年后 | 不切双链直接换碱基 | 少依赖修复通路 | 能改的碱基类型有限 |
基因工程基本流程
⚠️ 常见坑:脱靶不是"有或没有",而是"多少"。验证时别只看目标位点,还要主动去查预测的潜在脱靶位点,否则一个隐蔽的误伤会在后面翻出来。
💡 关键直觉:基因工程"改得动"容易,"改得对"难。切割只是第一步,真正决定成败的是细胞自己的修复机器愿不愿意按你给的方向走——所以 HDR 常比 NHEJ 难,就是这个道理。
回到工程本身,我自己的体会是:基因工程里最容易被低估的环节是筛选。很多人以为难点在"切得准",其实在"挑得对"——文库里的克隆成千上万,怎么高效、可靠地把那一个改对的挑出来,往往比动手切割更花时间。这也是为什么好的选择标记和自动化筛选平台,对效率的贡献一点都不比一把新剪刀小。
本章回顾
- 重组 DNA:限制性内切酶当剪刀、连接酶当浆糊,把外源片段拼进载体再导入宿主。
- 载体三件套:复制起点、选择标记、多克隆位点,是载体能复制、能筛选、能插片段的前提。
- 转基因:把基因搬进另一个物种稳定表达,人胰岛素和转基因作物是代表。
- CRISPR 身世:源自细菌的适应性免疫,间隔序列是抄下的"通缉令"。
- 两条修复路:NHEJ 易错、多用于敲除;HDR 精准、需要模板、用于敲入。
- 筛选与脱靶:改完要验收,脱靶是量的问题,靠高保真变体和碱基编辑来压。
工具到手之后,下一个问题是拿它去治什么。下一节我们进入疾病基因学,看这些研究方法和编辑技术如何在病床前落地。