2.2 衣壳:蛋白质的几何护甲
2.2 衣壳:蛋白质的几何护甲
一句话结论:衣壳是"用最少的基因编码、围出最大容积"的几何解——绝大多数病毒收敛到二十面体或螺旋两种对称方案;理解了准等价构象与 T 数,就理解了衣壳的稳定性、装配路径和脱壳触发方式。
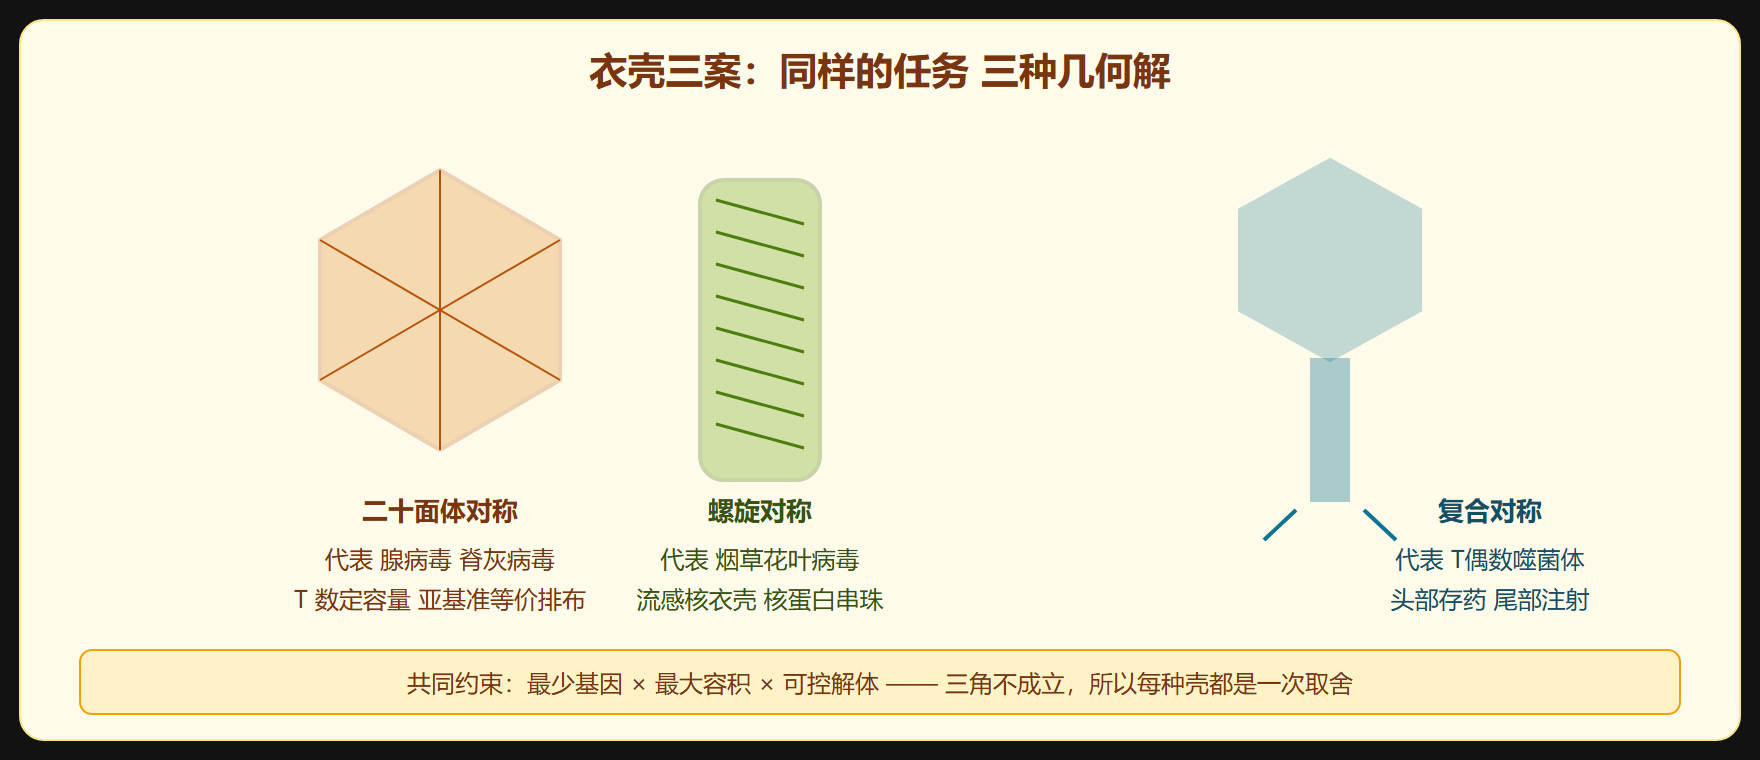
想象你是基因组,要在纳米尺度给自己造一个壳。预算极紧:壳的每种蛋白亚基都要写进你本就寸土寸金的基因组。最优策略显而易见——用同一种亚基、反复使用、按对称排列。数学上,把相同单元铺满球面的方式只有有限几种(正二十面体是其中容积效率最高的),于是二十面体对称成了无包膜病毒的主流选择;如果基因组是杆状或需要缠绕刚性,螺旋对称则是另一条路。这不是巧合的趋同,是约束条件下的收敛。
二十面体:T 数的语言
标准二十面体有 20 个三角面、30 条边、12 个顶点。病毒学里描述衣壳不用这些数字,而用三角剖分数 T:把每个面再细分成 T 个小三角形。T=1 的微小病毒(如细小病毒)衣壳由 60 个亚基构成,每个亚基处在完全等价的位置;T=3 的戊型肝炎病毒样颗粒是 180 个亚基;腺病毒 T=25,多达 240 个亚基的六邻体加上 12 个五邻体占据顶点。亚基数目越多,容积越大,能装的基因组越大——T 数就是衣壳的"容量档位"。
问题来了:T=3 时,180 个亚基并非处在严格等价的位置(有 A、B、C 三种微环境)。同一个蛋白链如何在化学上相同、几何上不同?答案由 Caspar 与 Klug 在 1962 年给出:亚基发生轻微形变,以"准等价"方式适应不同曲率——蛋白是个有弹性的积木,不是刚性砖块。这个概念后来被冷冻电镜在原子尺度上逐例证实。
螺旋与复合:另外两条路
螺旋对称的代表作是烟草花叶病毒:每圈 16 又三分之一 个亚基,亚基首尾相接形成刚性杆,RNA 嵌在亚基内侧的螺旋槽里。流感病毒的核衣壳也是螺旋形,但更柔软,八段基因组各自盘绕在一串核蛋白上——柔软有好处,能适应出芽时包膜的不定形状。复合对称的极端例子是 T 偶数噬菌体:二十面体头部存基因组,螺旋尾鞘是注射器,尾丝负责识别细菌表面——头尾分工把"装货"与"投递"做成了两套机构,第 3 章讲穿入时它的尾部收缩机制会是主角之一。
稳定性的交易账本
衣壳设计是一场三方交易:足够稳,才能在细胞外熬过蛋白酶、干燥与酸碱;足够松,才能在正确信号到来的瞬间解体释放基因组;足够省,不超预算编码。不同病毒的解法截然不同。诺如病毒、腺病毒选择"超稳壳"——没有脂膜,靠蛋白—蛋白氢键与二硫键网络扛住胃酸与污水,代价是必须等受体结合或内体环境的特定信号才发生构象变化脱壳,时序控制复杂。流感、HIV 选择"脂膜软壳"——衣壳不承担环境防御(交给包膜),于是可以做得松散多变,HIV 的锥形衣壳甚至在入侵后保持部分组装状态护送基因组到细胞核。这张交易账本解释了一个临床现象:无包膜病毒在物体表面存活普遍更久,医院的院感防控等级因此完全不同。
装配:自组装与脚手架
衣壳怎么造出来?多数小病毒走自组装路线:亚基浓度足够高时,正确折叠加上弱相互作用自发聚合成壳,不需要额外指令——体外实验把纯化的烟草花叶病毒衣壳蛋白和 RNA 混在一起,能重建出有感染性的颗粒。大病毒则需要帮助:腺病毒用支架蛋白充当临时脚手架,壳搭好后支架蛋白被蛋白酶切除;疱疹病毒先在核内装配出前衣壳,再塞入基因组、通过核孔出核。这条装配流水线是第 4 章的内容,这里先记一句:装配的顺序和"脚手架"往往是抗病毒药物的目标(例如 HIV 蛋白酶抑制剂实际阻断的是"装配后成熟"这一步)。
易错点与延伸
三个易错点。第一,"衣壳"与"核衣壳"不同:核衣壳指衣壳加核酸的复合体,对有包膜病毒,核衣壳之外还有脂膜。第二,二十面体的"12 个顶点"常有特殊构件——腺病毒顶点是五邻体加纤维突起(负责受体结合),所以"顶点"常常是功能热点而不只是几何装饰。第三,别把 T 数当严格进化距离:T 数可变,同科病毒可有不同 T 数的成员,比较时以序列与结构同源为准。
观察训练:下次看到任何病毒电镜图,先判断它有没有包膜(边缘光滑还是毛糙),再判断二十面体还是螺旋(轮廓规则多边形还是杆状丝状)。两个问题答完,这粒陌生病毒的装备清单就已读出一半。
从衣壳结构读出行为特征:三个推断案例
案例一:脊灰病毒是小二十面体(约三十纳米)无包膜病毒。推断:耐环境(肠道旅途扛得住胃酸)、粪口传播、消毒需氧化剂而非醇类、脱壳由受体结合触发——三条推断全部命中其流行病学与院感规范。案例二:流感病毒核衣壳是柔软螺旋、外有包膜。推断:怕干燥怕脂溶剂、飞沫传播、脱壳依赖 M2 酸化、装配时核蛋白串珠需逐段包装——同样全部命中。案例三:T 偶数噬菌体是复合对称、带尾鞘注射器。推断:不脱壳于膜系统而是"注射式"把基因组压入细菌、衣壳留在细菌外、双链 DNA 基因组可大——也全部命中。三个案例的共性说明:衣壳形态不是装饰信息,而是"行为预告片",从结构到流行病学的推理链在病毒学里高度可靠。
一个补充的技术视角:衣壳也是"分子考古对象"。HK97 折叠类型横跨有尾噬菌体与疱疹病毒,暗示两者远缘的结构同源——这类"折叠指纹"比序列比对看得更深,是当前划分病毒域级分类(如双链 DNA 的 Duplodnaviria)的主要证据。也就是说,看壳不仅知行为,还能读家谱,本章的结构知识直接服务第 6 章的族谱。
再补一个工程视角:衣壳的"可重构性"使它成为纳米材料的热门模板——Crick 与 Watson 时代就预言"重复亚基自组装"会成为材料学范式,今天的病毒样颗粒(空衣壳)被用作疫苗展示平台(HPV 疫苗即 L1 蛋白自组装颗粒)与药物递送载体。基础结构研究与应用之间的这条通道,比多数人想象的更短。
最后给一组数字锚点:T=1 的六十亚基、T=3 的一百八十亚基、腺病毒 T=25 的二百四十个六邻体加十二个五邻体——亚基数是六十乘以 T,这个简单公式能让你从电镜报告的亚基计数直接读出衣壳档位,也能反过来从 T 数预估颗粒尺寸(大致从二十几纳米到上百纳米)。
补一个易被忽略的考点:衣壳蛋白的翻译量调控与亚基计量比必须精确匹配——一种亚基造太多会自发成空壳浪费资源,造太少则包装不全;小 RNA 病毒靠翻译起始效率与蛋白切割时序控制配比,大 DNA 病毒靠晚期启动子强度分级。这种"分子计量学"视角把结构问题与表达调控问题(上一节)重新连成一体。