2.1 代谢物的化学分类与性质
2.1 代谢物的化学分类与性质
代谢物按化学骨架大致分为糖与糖酵解产物、氨基酸与胺类、有机酸、脂质、核苷酸、胆汁酸、类固醇、维生素与辅因子八大类。它们的极性、挥发性、稳定性差异悬殊——这个差异是代谢组学所有提取方案和色谱条件分歧的源头。
八大类速览
| 类别 | 代表分子 | 极性 | 首选平台 | 已知陷阱 |
|---|---|---|---|---|
| 糖类 | 葡萄糖、蔗糖 | 强亲水 | GC-MS(衍生化)、HILIC | 结构异构体极多,碎裂谱雷同 |
| 氨基酸/胺 | 谷氨酸、色氨酸、多胺 | 两性 | LC-MS(HILIC/衍生) | 色氨酸见光分解 |
| 有机酸 | 乳酸、柠檬酸、TMAO | 中强亲水 | IC-MS、GC-MS | 磷酸化糖酸在源内不稳定 |
| 脂质 | 磷脂、甘油三酯、神经酰胺 | 强疏水 | 反相 LC-MS | 同一母离子对应多个位置异构体 |
| 核苷酸 | ATP、AMP、烟酰胺 | 强亲水、带电 | HILIC-MS | 采样后几分钟内被磷酸酶降解 |
| 胆汁酸 | 胆酸、甘氨胆酸 | 两性 | 反相 LC-MS | 存在甘氨酸/牛磺酸结合型 |
| 类固醇 | 皮质醇、雌激素 | 弱疏水 | LC-MS/MS | 浓度极低,需高灵敏 |
| 辅因子 | CoA、NAD、FAD | 强亲水 | 离子对 LC-MS | 极不稳定,需酸淬灭 |
极性谱:方法的分水岭
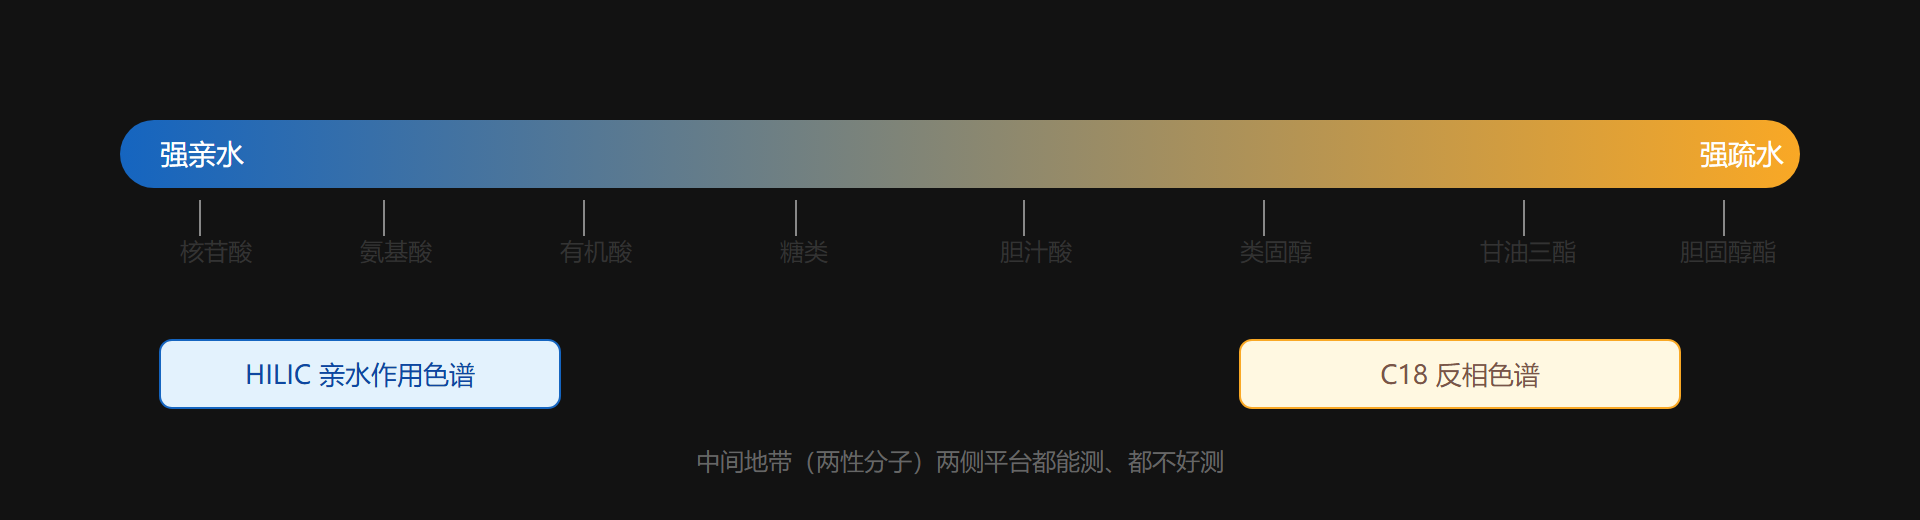
一个实际推论:做血浆非靶向时,常见"蛋白沉淀后 HILIC 打一针、MTBE 提取后反相再打一针"的双平台方案,就是因为单柱覆盖不了整条极性谱。
稳定性:采样后的倒计时
核苷酸类是最好的例子。ATP 在采血后如果不用高氯酸立刻淬灭,几分钟内就被血细胞里的酶降解成 ADP、AMP——你测到的不是体内状态,而是采样后的降解产物。类似地:
⚠️ 常见坑列表(每条都有真实翻车案例):
- 色氨酸:强光下半小时损失明显,样品须避光操作
- 谷胱甘肽(GSH):采血不酸化,氧化成 GSSG,"氧化应激指标"变成假象
- 溶血:红细胞破裂释放大量磷酸糖与嘌呤,一个轻微溶血的样品能带偏整组均值
类似地看待结构异构
葡萄糖与半乳糖分子量相同、碎片相似;亮氨酸与异亮氨酸只差一个甲基的位置。质谱说"这个峰分子量 182.08,像是亮氨酸",位置异构它分不出来——需要色谱分离或专门的诊断碎片。这是第 5 章鉴定分级里"MSI 二级暂定"与"一级确证"的分界根源。
本节要点回顾
- 八类代谢物、三种命运:亲水走 HILIC、疏水走反相、挥发或可衍生化走 GC
- 没有万能提取法:极性谱决定了多平台组合是常态
- 稳定性决定采样纪律:淬灭、避光、控温不是仪式而是化学必需
- 异构体是质谱的盲区:鉴定置信度分级的化学根源在这里
下一节把这些分子连成网络。
分类不是背清单:化学性质决定检测行为
代谢物的八大类(氨基酸、有机酸、脂质、糖类、核苷酸、胺类、固醇、胆汁酸)之所以重要,是因为每一类的极性、挥发度、电离行为直接决定它被哪个平台捕获。氨基酸与有机酸极性高,反相 C18 上几乎不保留,需要 HILIC 或衍生化;脂质极性低但跨度大(TAG 到溶血磷脂差 3 个数量级),需要专门的脂类组学梯度;糖类不电离,LC-MS 上是盲区,要用衍生化或 GC-MS。这一节给出把"分类表"变成"方法选择器"的桥。
| 类别 | 代表物 | 极性 | 首选平台 | 关键化学性质 |
|---|---|---|---|---|
| 氨基酸 | 谷氨酰胺 | 高 | HILIC-LC-MS | 两性离子,等电点差异大 |
| 有机酸 | 琥珀酸 | 高 | IC-MS/GC-MS | 羧基易丢失 CO₂ |
| 脂质 | 磷脂酰胆碱 | 低 | RP-LC-MS | 长链疏水,碎裂头基特异性 |
| 糖类 | 葡萄糖 | 高 | GC-MS(衍生) | 醇羟基不电离 |
| 核苷酸 | ATP | 高 | HILIC | 多磷酸基,负离子模式强 |
| 胆汁酸 | 牛磺胆酸 | 中 | RP-LC-MS | 兼具甾核与磺酸基 |
| 胺类 | 腐胺 | 高 | 衍生化 LC | 挥发强,需稳定化 |
用 LogP 和 pKa 预测保留行为:一个可复现的估算
# 粗略估算反相保留:logD (pH 7) 越大越晚出峰 metabs = [("谷氨酸", -3.7, 3.2), ("苯丙氨酸", -1.4, 5.5), ("色氨酸", -1.0, 5.9), ("磷脂酰胆碱 16:0", 5.5, 7.0), ("胆固醇", 8.7, 7.0)] # (名称, logD@7 估算, pKa) print(f"{'代谢物':<12}{'logD@7':>8}{'预测保留':>10}") for name, logd, pka in metabs: ret = "早(死体积)" if logd < -1 else ("中" if logd < 3 else "晚") print(f"{name:<12}{logd:>8.1f}{ret:>12}") # 谷氨酸 logD<-3 在纯反相体系几乎不保留,必须换 HILIC —— 分类表的方法学含义
不稳定代谢物:分类表的隐藏栏
同类代谢物的稳定性差异常被忽视:氧化型谷胱甘肽 GSSG 稳定而还原型 GSH 在采血后数分钟内被氧化,NADH 在酸性提取液中降解而 NAD⁺ 反之,胞内 cAMP 在制样升温时被磷酸二酯酶水解。处理这类"活泼成员"要么加稳定剂(N-乙基马来酰亚胺封 GSH 的巯基),要么用超低温速冻一步到位。方法学文献里"测不到"有时不是浓度低,而是分类表里没标注它的化学惰性栏——建立自己的不稳定代谢物清单,是实验室 SOP 的第一页。
同分异构体:化学分类的最后一关
同分异构是注释错误的头号来源:亮氨酸与异亮氨酸同质量同碎片,葡萄糖与果糖在低分辨质谱上无法区分,鞘磷脂与磷脂酰胆碱的某些种共用精确质量。区分手段按成本递增:色谱保留时间差异(最便宜,但依赖方法开发)、离子淌度 CCS(见 4.3 节)、衍生化后 GC 分离(糖类与有机酸的立体异构专用)、标准品共进样(金标准)。写方法学时注明"亮/异亮按合并值报告"是可接受的诚实做法,而含糊地只报"亮氨酸"则是埋雷。
# 检查一对代谢物是否撞精确质量( ppm 级) def mass_ppm(m_obs, m_theo): return abs(m_obs - m_theo) / m_theo * 1e6 pairs = [("Leu", 132.1019, 132.1020), ("Ile", 132.1019, 132.1023), ("PC 34:1", 760.5851, 760.5856)] for name, obs, theo in pairs: ppm = mass_ppm(obs, theo) print(f"{name}: Δ = {ppm:.2f} ppm → " f"{'同一质量无法区分' if ppm < 2 else '可按质量区分'}")